Cytoskeleton: F-actin and intermediate filaments - kap 17 - uge 3
 Call Kai
 Learn
 Practice Test
 Spaced Repetition
 Match
 Flashcards
 Knowt Play
1/27

There's no tags or description
Looks like no tags are added yet.
28 Terms
Hvad er cytoskelettets hovedfunktioner i cellen?
Cytoskelettet opretholder cellens form og polaritet, forankrer cellen til andre celler og den ekstracellulære matrix, organiserer organeller, muliggør cellebevægelse og intracellulær transport samt medvirker ved celledeling, endocytose, exocytose.
Hvad kendetegner intermediære filamenter, mikrotubuli og aktinfilamenter med hensyn til lokalisering og funktion?
Intermediære filamenter danner et stærkt netværk gennem cytoplasmaet og giver mekanisk styrke ved, at forankre til desmosomer, som forbinder naboceller via cadheriner, og til hemidesmosomer, som forbinder cellen til den ekstracellulære matrix via integriner. mikrotubuli udgår fra mTOC, fx centrosomet nær kernen og strækker sig mod celleperiferien, hvor de er vigtige for intracellulær transport, organelplacering og celledeling; Aktinfilamenter findes især i cellecortex, blandt andet i mikrovilli, som er små udløbere, der øger cellens overfladeareal, og adherens junctions, som forbinder naboceller via cadheriner, og er vigtige for celleform, cellebevægelse og kontraktion.
Hvad kendetegner intermediære filamenter, og hvad er deres funktion?
Intermediære filamenter er de mest stabile dele af cytoskelettet og giver mekanisk styrke til cellen og cellekernen; de indgår i celle-celle-forbindelser i epitelvæv ved at være forankret til desmosomer, som binder naboceller sammen via cadheriner, og adskilles under celledeling. De er også forankret til hemidesmosomer, som via integriner binder cellen til den ekstracellulære matrix.
Hvordan dannes intermediære filamenter?
Intermediære filamenter dannes ved, at α-helikale monomerer danner parallelle coiled-coil-dimere, hvorefter to dimere samles antiparallelt til en tetramer; otte tetramerer samles side om side, og disse enheder danner tilsammen et reblignende intermediært filament, med en diameter på 10 nn.
Hvilke fire undertyper af intermediære filamenter findes der, og hvad kendetegner dem?
Keratinfilamenter – findes i epitelceller.
Vimentin og vimentin-relaterede filamenter – findes i bindevævs-, muskel- og gliaceller.
Neurofilamenter – findes i nerveceller.
Nukleære laminer – findes i cellekernen i alle dyreceller.
alle fire typer har en lignende central α-helikal dele, men forskellige hoved- og haleregioner.
Hvilken funktion har keratinfilamenter i epitelvæv, og hvordan indgår de i desmosomer og hemidesmosomer?
Keratinfilamenter giver epitelvæv mekanisk styrke ved at fordele mekanisk stress gennem cellerne. Keratinfilamenterne er koblet til desmosomer, som via cadheriner binder naboceller sammen, og til hemidesmosomer, som via integriner binder cellen til den ekstracellulære matrix (basallamina).
Hvad er funktionen af vimentin- og neurofilamenter?
Vimentin giver mekanisk styrke i cytoplasmaet i bindevævsceller, muskelceller og gliaceller, mens neurofilamenter giver mekanisk styrke i nerveceller, især i deres axoner.
Hvad er nuclear laminer, og hvad er deres funktion?
Nukleære laminer er intermediære filamenter, der danner et støttende netværk på indersiden af kernemembranen, hvor de interagerer med membranproteiner og giver cellekernen mekanisk styrke og stabilitet.
Hvordan interagerer intermediære filamenter med andre cytoskeletelementer?
Intermediære filamenter forbindes via det accessoriske protein plectin til både mikrotubuli og aktinfilamenter, hvilket kobler de forskellige dele af cytoskelettet sammen og bidrager til cellens mekaniske styrke og stabilitet.
Hvordan er det cytoplasmatiske og nukleære cytoskelet forbundet, og hvad er betydningen af denne kobling?
Det cytoplasmatiske og nukleære cytoskelet er mekanisk forbundet via SUN- og KASH-proteiner. På den måde kan mekaniske signaler og stress overføres til cellekernen og påvirke genekspressionen.
Hvad kendetegner aktin-cytoskelettet, og hvor findes aktinfilamenter især?
Aktin-cytoskelettet består af dynamiske, ca. 7 nm tykke aktinfilamenter (F-actin), som findes i mange cellulære strukturer, men især er koncentreret i cellecortex lige under plasmamembranen. Omkring 5 % af protein i en celle er aktin.
Hvordan er aktinfilamenter opbygget og hvordan vokser de?
Aktinfilamenter (F-aktin) består af to kæder af globulære aktinmonomerer (G-aktin), der er snoet om hinanden til en helix med en diameter på ca. 7 nm og har en plusende og en minusende; filamenterne vokser hurtigst ved plusenden ved tilføjelse af ATP-bundet G-aktin, mens monomerer primært fraspaltes ved minusenden ved hydrolysering af ATP.
Hvordan indgår aktinfilamenter i celle–celle- og celle–matrix-kontakter?
Adherens junctions forbinder aktinfilamenterne i naboceller via cadheriner, så cellerne holdes sammen og mekaniske kræfter kan fordeles mellem dem. Fokale adhæsioner forbinder aktinfilamenterne til den ekstracellulære matrix via integriner, så cellen kan forankres til sine omgivelser og skabe kraft ved fx cellebevægelse.
Hvad er treadmilling i aktinfilamenter, og hvordan foregår det?
Treadmilling er en proces, hvor hastigheden, af ATP-bundne aktinmonomerer tilføjes ved plusenden, hvorefter ATP hydrolyseres til ADP, så bindingen mellem monomererne svækkes og ADP-bundne aktinmonomerer fraspaltes ved minusenden, er den samme; når tilføjelse og fraspaltning sker med samme hastighed, bevarer aktinfilamentet sin samlede længde og dette kaldes treadmilling
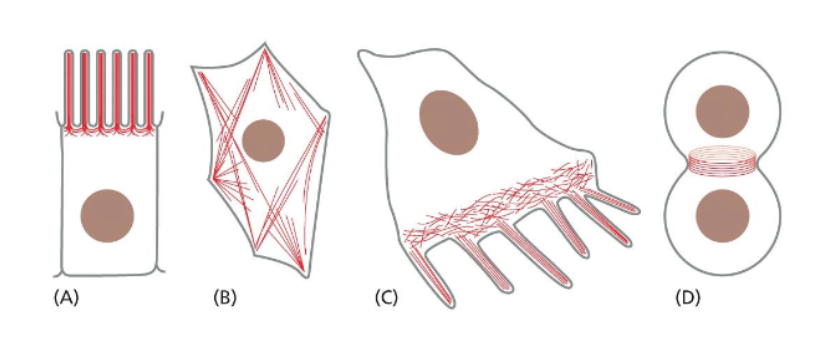
Hvilke aktinbaserede strukturer ses i celler, og hvad bruges de til?
(A) Mikrovilli indeholder tætte bundter af aktinfilamenter og øger cellens overfladeareal, (B) stressfibre består af aktinfilamenter og myosin og skaber kontraktil kraft, (C) Lamellipodier og filopodier er aktinrige udløbere, der hjælper cellen med at bevæge sig og finde den rigtige bevægelsesretning, og (D) den kontraktile ring består af aktin og myosin og snører cellen over i to under cytokinesen.
Hvilken rolle spiller aktinbindende proteiner i reguleringen af aktin-cytoskelettet?
Aktinbindende proteiner regulerer aktin-cytoskelettet ved bla. at styre dannelse, vækst, capping og kløvning af aktinfilamenter samt organisere filamenterne i bundter og netværk, hvilket gør det muligt hurtigt at opbygge og omorganisere aktin-cytoskelettet.
Hvad er cellemotilitet, og hvorfor er det vigtigt?
Cellemotilitet er cellers evne til aktivt at bevæge sig og er vigtig for cellers migration i kroppen, fx når hvide blodlegemer bevæger sig mod en infektion.
Hvilke tre hovedtrin indgår i cellemigration, og hvilken rolle spiller aktin?
Cellemigration foregår i tre hovedtrin: først polymeriserer aktin ved cellens forreste kant og danner lamellipodier og filopodier, som skubber membranen fremad; derefter dannes fokale kontakter, hvor integriner forbinder det nydannede aktin til den ekstracellulære matrix og forankrer cellen; til sidst trækker aktin–myosin-kontraktion cellens bageste del fremad, så hele cellen bevæger sig fremad.
Hvad er lamellipodier, og hvordan er de opbygget?
Lamellipodier er brede, pladeformede udløbere ved cellens forreste kant, som bruges til cellebevægelse; de består af et tæt, forgrenet netværk af aktinfilamenter, hvor Arp-proteinkomplekset danner nye forgreninger på eksisterende filamenter, og aktinpolymerisering ved plusenderne skubber plasmamembranen fremad.
Hvad er filopodier, og hvordan er de opbygget?
Filopodier er lange, fingerformede udløbere ved cellens forreste kant, som bruges til at udforske omgivelserne og styre cellens bevægelse; de består af lange, parallelle aktinfilamenter samlet i tætte bundter, hvis vækst fremmes af proteinet formin.
Hvilken rolle spiller Rho-familiens små GTPaser i reguleringen af aktin-cytoskelettet?
Rho-familiens små GTPaser regulerer dannelsen af forskellige aktinstrukturer; Rac fremmer dannelsen af lamellipodier via arc, Cdc42 fremmer dannelsen af filopodier via forminer, og Rho fremmer dannelsen af kontraktile aktinbundter ved blandt andet at regulere myosin.
Hvad er myosiner, og hvordan adskiller myosin I og myosin II sig?
Myosiner er aktinbindende motorproteiner, der bruger ATP til at bevæge sig langs aktinfilamenter mod plusenden; myosin I har ét hoveddomæne og bruges blandt andet til transport af vesikler langs aktinfilamenter og bevægelse af aktin langs plasmamembranen, mens myosin II har to hoveddomæner, kan samles i myosin II-filamenter og trækker aktinfilamenter mod hinanden, så der skabes kontraktion, blandt andet i muskelceller.
Hvorfor er aktinfilamenterne i sarkomerer stabile, og hvorfor sker der ikke treadmilling?
Et sarkomer strækker sig fra Z-skive til Z-skive, hvor aktinfilamenternes plusender er forankret, mens filamenterne strækker sig ind mod midten og er bundet sammen af myosin-2-filamenterne. Aktinfilamenterne stabiliseres desuden af proteiner, der capper deres ender og forhindrer polymerisering og depolymerisering, så der ikke sker treadmilling; muskelkontraktion sker i stedet ved, myosin-2-filamenterne trækker aktinfilamenterne mod hinanden.
Hvordan er myofibriller og sarkomerer organiseret i muskelceller?
En muskelcelle indeholder mange myofibriller og hver myofibril består af mange sarkomerer arrangeret ende mod ende.
Hvordan initieres muskelkontraktion ved frigivelse af Ca²⁺?
Ca² frigives⁺ fra det sarcoplasmatiske retikulum til cytosolen. Ca²⁺ binder til troponin, hvilket får tropomyosin til at flytte sig og blotlægge myosinbindingsstederne på aktin, så myosin kan binde til aktin.
Hvordan foregår myosin–aktin-kontraktionscyklussen?
ATP hydrolyseres til ADP og fosfat på myosinhovedet, hvilket får myosinhovedet til at ændre position, så det er klar til at binde til aktin. Myosin binder til aktin, hvorefter fosfat frigives og får myosinhovedet til at bevæge sig, så aktinfilamentet trækkes. Derefter frigives ADP, og et nyt ATP binder til myosinhovedet, så det slipper aktin, hvorefter cyklussen kan gentages.
Hvad er de vigtigste kendetegn ved intermediære filamenter?
Intermediære filamenter dannes af α-helikale monomerer, som først danner dimere, derefter antiparallelle tetramerer, der samles i protofilamenter og til sidst i lange, reblignende filamenter med en diameter på ca. 10 nm. De er ikke polariserede og er de mest stabile komponenter i cytoskelettet, men kan nedbrydes midlertidigt, fx under celledeling. De forbindes både indbyrdes og med andre cytoskeletelementer via koblingsproteiner som plectin. Der findes fire hovedklasser: keratiner, vimentiner, neurofilamenter og nukleære laminer. Intermediære filamenter har primært strukturelle funktioner og bidrager til mekanisk styrke samt celle–celle- og celle–matrix-adhæsion.
Hvad er de vigtigste kendetegn og funktioner ved aktin og aktinfilamenter?
Aktinfilamenter består af to protofilamenter af globulært G-aktin, der er snoet i en coiled helix og danner F-aktin. De har en diameter på ca. 7 nm og er polariserede med en plus- og en minus-ende. Polymerisering sker ved tilføjelse af ATP-bundet G-aktin til plus-enden, mens depolymerisering forekommer efter ATP-hydrolyse, når aktin får lavere affinitet for filamentet. Aktinstrukturen i celler bestemmes af aktinbindende proteiner, som regulerer filamenternes længde, organisering og dynamik. Aktinfilamenter findes især i cellecortex, stressfibre, mikrovilli, filopodier og lamellipodier samt i celle–celle- og celle–matrix-kontakter. Aktins fysiologiske roller omfatter mekanisk stabilitet, regulering af celleform, intracellulær transport, cellemotilitet, celledeling og muskelkontraktion