EME II - Tema 11: Estructura secundaria del DNA
 Call Kai
 Learn
 Practice Test
 Spaced Repetition
 Match
 Flashcards
 Knowt Play
1/178

There's no tags or description
Looks like no tags are added yet.
179 Terms
¿Cuál era la hipótesis de Phoebus Levene para la estructura del DNA?
La hipótesis del tetranucleótido, estableció la fórmula empírica C38H50O29N15P
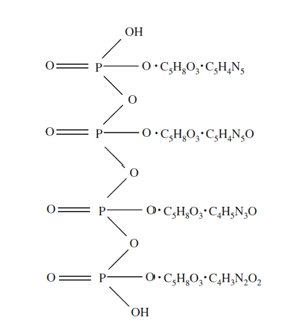
¿Qué azúcares identificó Levene en los ácidos nucleicos y en qué año descubrió el del DNA?
Identificó que el azúcar de los ácidos nucleicos es una pentosa.
Primero describió la ribosa (denominando a los que la contenían ácido ribonucleico o RNA).
En 1929, demostró que el DNA contenía otro azúcar de 5 carbonos: la desoxirribosa, la cual difería levemente de la ribosa
¿Qué componentes químicos principales determinó Levene en los ácidos nucleicos?
El azúcar pentosa (ribosa o desoxirribosa)
El ácido ortofosfórico
Las 4 bases nitrogenadas (adenina, guanina, citosina y uracilo) en igual proporción aproximadamente
¿En qué consistía la «hipótesis del tetranucleótido» de Phoebus Levene?
Postulaba que las 4 bases nitrogenadas estaban en proporciones idénticas en todas las muestras analizadas y agrupadas en ramilletes fijos de cuatro unidades repetitivas (tetranucleótido) a lo largo de toda la molécula

¿Cuál era el error fundamental de la hipótesis del tetranucleótido de Levene respecto a la función del DNA?
Levene buscaba un monómero repetitivo simple de soporte estructural y no consideraba que el DNA pudiera albergar la enorme carga de información genética necesaria para la herencia. A pesar de ser incorrecta, esta deducción dominó el pensamiento biológico durante más de una década
¿A qué conclusión llegó Erwin Chargaff en 1950 tras analizar DNAs de diferentes especies?
Demostró que en el DNA de diversas especies el contenido total de purinas es exactamente igual al de pirimidinas
¿Cuáles son las relaciones cuantitativas que definen las reglas de Chargaff?
La cantidad de adenina es igual a la de timina y la de guanina a la de citosina: A/T = G/C = 1
La suma de purinas equivale a la suma de pirimidinas:
T+CA+G=1

¿Cuál fue el impacto histórico de las reglas de Chargaff en el modelo de Watson y Crick?
Fueron de vital trascendencia para deducir el apareamiento complementario de bases en la estructura secundaria de la doble hélice desarrollada por Watson y Crick, a pesar de que el propio Chargaff no supo interpretar el significado estructural de dichas proporciones en su momento
¿Cómo se puede someter el DNA a difracción de rayos X?
En disolución muy concentrada se puede recoger el DNA precipitado como una fibra. En ciertas condiciones de humedad relativa la fibra tiene características similares a las de un cristal y puede ser sometida a difracción de rayos X dando un patrón de manchas interpretable
¿Qué condición deben cumplir los átomos de una molécula para obtener una imagen mediante cristalografía de rayos X y qué indican las manchas más separadas en el patrón?
Los átomos deben estar dispuestos de forma regular y ordenada para que las difracciones generen interferencias constructivas que se registran como manchas
Las manchas más separadas indican que los motivos estructurales correspondientes están más cerca entre sí en el espacio real
Las rayas oscuras son las interferencias constructivas

¿Dónde trabajaba Rosalind Franklin, con quién colaboraba y cuál fue su logro técnico para lograr difracción en el DNA?
Trabajaba en el King's College junto a Maurice Wilkins aplicando difracción de rayos X al DNA.
Al ser el DNA una molécula difícil de cristalizar, manipuló con precisión la hidratación crítica de las muestras para obtener una disolución viscosa muy concentrada de la cual precipitó el DNA en forma de fibra con propiedades cristalinas bajo una humedad relativa controlada
¿Qué característica estructural revela el patrón o distribución de manchas «en cruz» en la fotografía de difracción de rayos X?
Indica de forma inequívoca la presencia de un arrollamiento helicoidal en la estructura de la molécula
¿Cuál es la causa física de la ausencia de la «cuarta mancha» en el patrón de difracción del DNA?
Se debe a la existencia de dos hélices arrolladas simultáneamente, lo que genera una interferencia destructiva de las ondas que cancela y elimina la cuarta mancha de la serie
¿Qué parámetro estructural del DNA se deduce a partir del espaciado entre las líneas horizontales (layer lines o reflexiones axiales) contiguas?
Proporciona la repetición global de la hélice (el paso de vuelta completa), con un valor de 34Å (3.4 nm)

¿Qué dimensión estructural del DNA revela el espaciado entre las bandas fuertes (reflexiones axiales)?
Determina el espaciado entre los elementos individuales de la hélice (la distancia entre pares de bases contiguos), que equivale a 3.4Å (0.34 nm)

¿Qué inclinación o pendiente de la hélice revela el ángulo del patrón cruzado en la imagen de difracción?
Sugiere que la hélice presenta una pendiente inclinada de aproximadamente 45º

¿Qué dimensión de la molécula de DNA determinan las reflexiones radiales en la fotografía de Franklin?
Señalan la anchura o diámetro total de la fibra de DNA, que es de 20 Å (2 nm)
¿Quiénes presentaron el modelo de la estructura secundaria del DNA, en qué año y en qué revista se publicó?
Fue presentado por James D. Watson y Francis Crick en el año 1953 en la revista Nature
¿En qué fuentes clave se basaron Watson y Crick para deducir su modelo?
Realizaron una investigación bibliográfica basada en la fotografía de difracción de rayos X de Rosalind Franklin (a quien injustamente no reconocieron su trabajo) y en la interpretación de las reglas de Chargaff
¿Cuál es la disposición de las cadenas en la doble hélice descrita por Watson y Crick y cómo se relaciona con las reglas de Chargaff?
El DNA es una doble hélice a derechas formada por dos cadenas antiparalelas y complementarias. Los cálculos de Chargaff se cumplen siempre gracias a que el apareamiento se da entre dos hebras complementarias
¿Qué pares de bases aparecen en el modelo y mediante qué tipo de interacciones estabilizan la doble hélice?
Aparecen los pares A·T y G·C, estabilizados mediante enlaces de hidrógeno
¿Dónde se localizan las bases nitrogenadas y los grupos azúcar-fosfato respecto al eje de la hélice?
Las bases nitrogenadas se sitúan en el interior, con sus planos perpendiculares al eje helicoidal
Los grupos azúcar-fosfato se orientan hacia el exterior formando el esqueleto
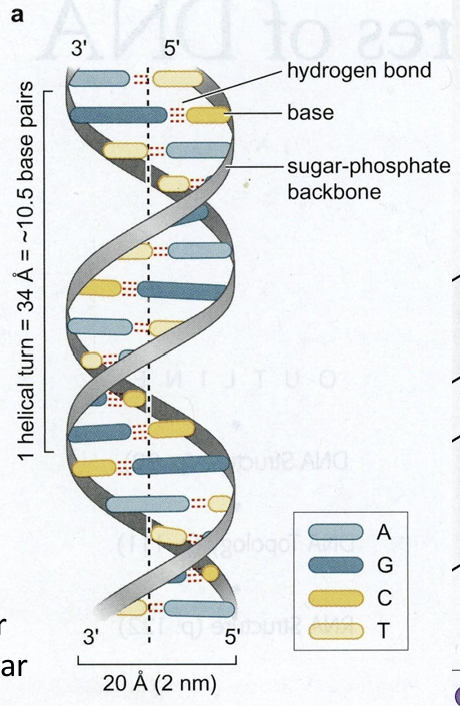
¿Cuáles son los parámetros geométricos constantes de la estructura monótona del modelo de Watson y Crick?
Pares de bases por vuelta: 10 pares de bases
Distancia entre pares de bases contiguos: 0.34 nm (3.4 Å)
Paso de rosca (distancia por vuelta completa): 3.4 nm (34 Å)
Ángulo de giro entre pares de bases consecutivos: 36º (360º / 10)
Diámetro de la doble hélice: 2nm (20 Å)
Surco mayor ancho y de profundidad media y surco menor estrecho y poco profundo

Según el modelo de llenado de espacio molecular, ¿qué tipo de microambiente se genera entre las bases apiladas y qué separación presentan?
La orientación de las bases nitrogenadas al interior genera una zona hidrofóbica por encima y por debajo de cada par de bases, las cuales se encuentran apiladas con un espacio de separación de 0.1 nm entre ellas
¿A qué conformación de DNA actual corresponde el modelo original propuesto por Watson y Crick y cuál es su consideración moderna?
Se corresponde con la forma DNA-B. Actualmente se considera una descripción muy idealizada ("demasiado bella y perfecta"), ya que descubrimientos posteriores demostraron que existen variaciones y corrigieron varios de sus parámetros iniciales
¿Cuáles son las fuerzas/factores estructurales principales que mantienen y estabilizan la doble hélice del DNA?
Las interacciones por enlace de hidrógeno entre las bases complementarias
Apilamiento de bases nitrogenadas (stacking)
Interacciones de cargas negativas de los fosfatos con cationes como Mg2+
Hidratación de grupos polares del esqueleto azúcar-fosfato del surco menor
¿Aparte de los enlaces de hidrógeno, qué otro factor contribuye a la estabilización de la doble hélice?
La regularidad geométrica de los apareamientos definida por:
Longitud de los enlaces de H: distancia entre las bases prácticamente idéntica
Separación entre las pentosas de ambos nucleótidos (distancia entre C1’ y C1’)
Ángulo entre los enlaces glicosídicos y la línea C1’-C1’ (en torno a 51º-54º)

¿Por qué los apareamientos Watson-Crick (WC) son los más frecuentes o «canónicos» en la doble hélice del DNA?
Porque son los apareamientos que presentan las energías de interacción más altas (mayor estabilidad termodinámica)

Según los cálculos de mecánica cuántica de la tabla, ¿cuáles son las energías totales de interacción (Etotal) de los pares Watson-Crick G-C y A-T?
G-C: -16.79kcal/mol (desglosada en -14.10 electrostática, -1.90 polarización y -0.79 dispersión)
A-T: -7.00 kcal/mol (desglosada en -5.70 electrostática, -0.57 polarización y -0.73 dispersión)
¿Por qué la energía de interacción del par G-C (-16.79 kcal/mol) es más del doble que la del par A-T (-7.00 kcal/mol) si solo tiene un puente de hidrógeno más?
Por el efecto cooperativo: al aumentar el número de puentes de hidrógeno contiguos (3 en G-C frente a 2 en A-T), la energía de enlace no se incrementa de forma lineal o proporcional al número de enlaces, sino que aumenta exponencialmente
Si el par A-T de Watson-Crick no es mucho más estable que sus variantes (WC reverso o Hoogsteen), ¿por qué en el DNA solo se permite el apareamiento tipo Watson-Crick?
Porque el par G-C es con diferencia el más estable de todos y es el que «marca la pauta»; para mantener la regularidad geométrica idéntica en toda la doble hélice, el par A-T debe adoptar forzosamente la misma conformación geométrica que G-C (la geometría Watson-Crick)
En los modelos tridimensionales del par de nucleótidos, ¿qué orientación espacial adoptan los anillos de desoxirribosa respecto al plano de la base?
La desoxirribosa se sitúa casi perpendicular a la base (el oxígeno anular queda hacia atrás y el carbono 5' fosfato hacia adelante respecto al plano, o viceversa según la hebra)

¿En qué consisten las interacciones de apilamiento de bases (base stacking) y cómo estabilizan la doble hélice de DNA?
Son interacciones hidrofóbicas entre las nubes pi de los anillos de las bases nitrogenadas apiladas a lo largo de la hebra. Estabilizan la molécula evitando activamente la entrada de agua (H2O) en el interior hidrofóbico del DNA
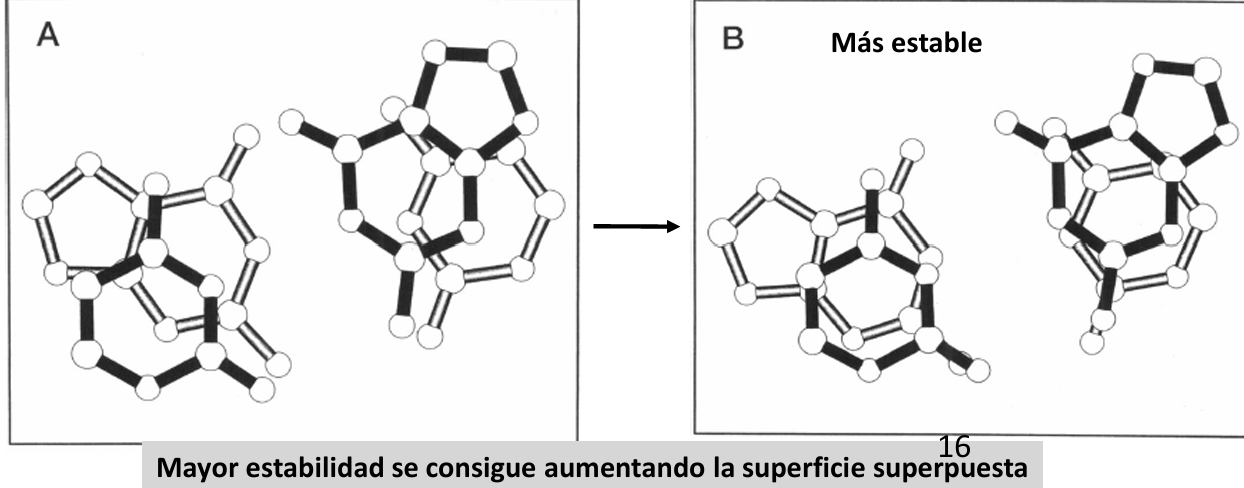
¿Cuál es la magnitud energética de las interacciones hidrofóbicas por apilamiento y por qué su importancia se equipara a la de los puentes de hidrógeno?
Tienen un valor de 4 a 14 kcal/mol por cada interacción entre 2 pares de bases apilados. Aunque individualmente se consideran fuerzas débiles, presentan un efecto cooperativo a lo largo de toda la cadena que iguala su relevancia a la del propio apareamiento por puentes de hidrógeno entre bases
¿Cómo influye la superficie superpuesta en la energía de apilamiento y por qué existe un giro de unos 30º entre pares de bases?
Cuanto mayor es el área de solapamiento entre las superficies de las bases, mayor es la caída de energía (mayor estabilidad). Por este motivo no se produce un empaquetamiento completamente plano y directo, sino un giro helicoidal de aproximadamente 30º entre pares consecutivos para optimizar el solapamiento de las nubes pi
Según los valores de energía de apilamiento, ¿cuál es la combinación de pares de bases más estable frente al resto?
La combinación de guaninas y citosinas alternadas. Sumada a los 3 puentes de hidrógeno de los pares GC, explica la elevadísima estabilidad térmica y estructural de las secuencias ricas en GC
A diferencia de la energía mediada por los puentes de H la de apilamiento depende de la secuencia no solo del % de G+C

¿Cómo se produce la hidratación del surco menor de la doble hélice?
Las moléculas de agua forman redes de puentes de hidrógeno directos con los grupos polares de las bases nitrogenadas que se encuentran expuestos en el surco menor
En el surco mayor no hay H2O porque al ser más ancho es menos estable
Estas contribuciones energéticas son bastante independientes de la secuencia

¿Cuál es el mecanismo molecular por el cual el etanol actúa como agente precipitante del DNA?
El etanol deshidrata la molécula porque compite directamente con el agua (H2O) por la formación de puentes de hidrógeno con los grupos polares expuestos en el surco menor
¿Qué función desempeñan los contraiones (como el Mg2+) en la estabilidad de la doble hélice del DNA?
Estabilizan la doble hélice al interaccionar y apantallar las cargas negativas de los grupos fosfato del esqueleto de la hebra (forman puentes salinos)
¿Cuántos fosfatos puede coordinar un catión bivalente como el Mg2+ y qué sucede si se retira totalmente de una solución de DNA?
Como catión bivalente, el Mg2+ es capaz de formar 2 estructuras de coordinación simultáneamente con 2 grupos fosfato negativos. Si se elimina el Mg2+ de la disolución, la repulsión electrostática desestabiliza la molécula y el DNA precipita
En la estructura secundaria del DNA-B, ¿cómo son los surcos en cuanto a su profundidad y tamaño, y cómo se disponen a lo largo de la hélice?
Tienen la misma profundidad, pero distinto tamaño (uno es el surco mayor y el otro el surco menor). A lo largo de la doble hélice, ambos surcos se van alternando sucesivamente
¿Cuál es la causa fisicoquímica y conformacional de la existencia del surco mayor y del surco menor en el DNA-B?
Se debe a la forma asimétrica en la que se emparejan los nucleótidos (los enlaces glucosídicos no parten en un ángulo de 180°, dejando un arco más amplio que otro) junto con el apilamiento helicoidal de los pares de bases a lo largo de la molécula

¿Por qué la gran mayoría de las proteínas de unión al DNA interaccionan preferentemente a través del surco mayor?
Porque las secuencias expuestas en el surco mayor presentan «mayor personalidad»; es decir, contienen significativamente más información inequívoca sobre la secuencia real de pares de bases de esa región
En el reconocimiento de secuencias por proteínas, ¿por qué es crítico distinguir el sentido de la interacción (por ejemplo, A·T frente a T·A)?
Porque una proteína reconoce una diana en una orientación específica de la hebra. Por tanto, para una proteína lectora no es químicamente lo mismo encontrar colocado un residuo de adenina que uno de timina en la cadena principal que explora

¿Qué cuatro clases de grupos químicos quedan expuestos en los bordes de los pares de bases para establecer fuerzas débiles con proteínas?
Aceptores de enlaces de hidrógeno (A)
Donadores de enlaces de hidrógeno (D)
Otros hidrógenos / hidrógenos no polares (H)
Grupos metilo (M)
¿Por qué el surco menor se considera poco informativo en la discriminación de secuencias?
Porque la combinación de grupos expuestos es simétrica o idéntica para pares invertidos:
Expone el mismo patrón de aceptores y dadores para TA y AT, y lo mismo sucede para GC y CG
Solo permite discernir a grandes rasgos si el par es AT o GC, pero sin poder determinar el sentido de las bases en la hebra
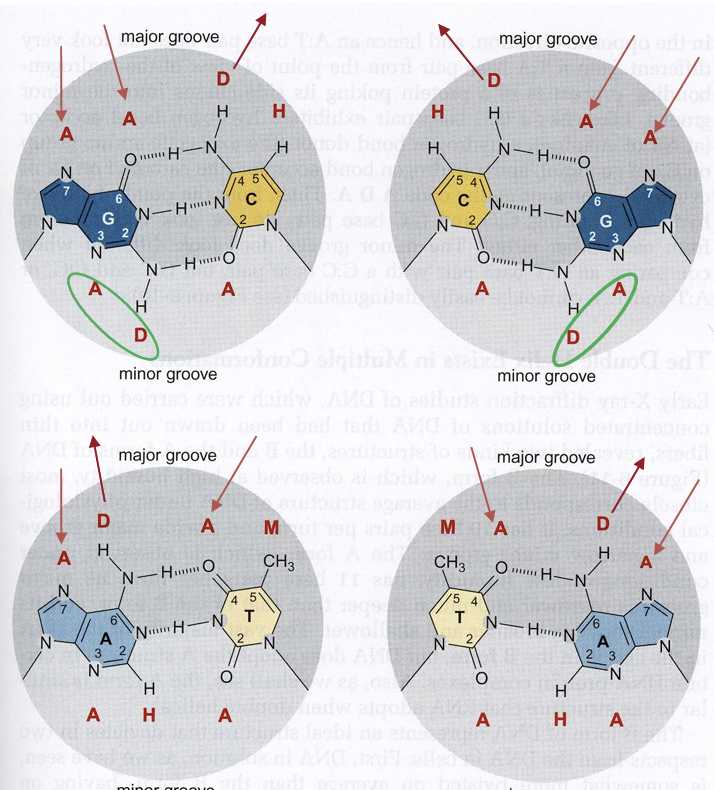
¿Cuáles son los patrones repetitivos del surco menor y qué base nitrogenada es la única reconocible individualmente en él?
Repite patrones simplificados como ADA (Aceptor-Dador-Aceptor) o AHA (Aceptor-Hidrógeno-Aceptor).
Tanto A, como C y T se muestran equivalentes por el surco menor (como aceptores); por ello, únicamente la guanina (G) es distinguible
¿Cuáles son los patrones químicos precisos que expone el surco mayor para cada apareamiento y qué consecuencia molecular directa derivan?
Par G·C: AADH
Par C·G: HDAA
Par A·T: ADAM
Par T·A: MADA
Consecuencia: Al exhibir un patrón diferente y asimétrico para cada base y par, la secuencia del DNA puede leerse de forma unívoca a través del surco mayor
¿Cómo se puede determinar visualmente si una doble hélice de DNA es dextrógira (a derechas) o levógira (a izquierdas)?
Fijándose en la dirección en la que sube la hebra en el sentido 5’ —Z 3’: si sube inclinándose hacia la derecha, la hélice es dextrógira. Además, una hélice dextrógira tiene como imagen especular una hélice levógira
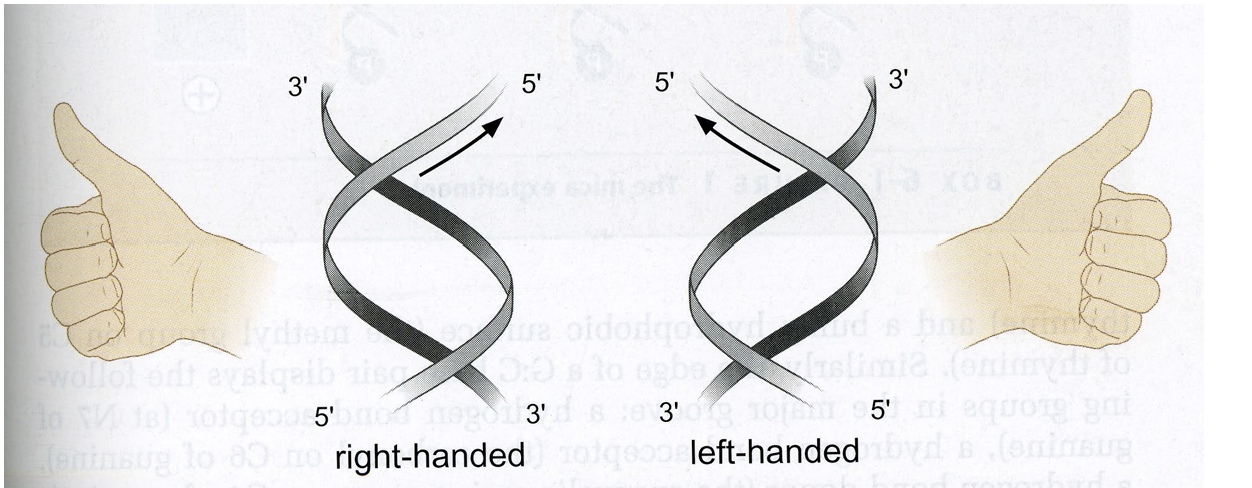
¿Cuál es la organización geométrica «natural» de los polinucleótidos en lugar de una escalera lineal y cuántas unidades por vuelta suelen poseer las moléculas de DNA?
Por la propia estructura química y espacial de la molécula, la naturaleza adopta una escalera helicoidal que de forma intrínseca tiende a unas 11 unidades por vuelta
Prácticamente todas las moléculas de DNA presentan entre 10 y 12 nucleótidos por vuelta de hélice
Físicamente, ¿por qué los polinucleótidos forman una estructura en hélice y qué problema resuelve respecto al agua?
La hélice es el mecanismo para reducir la separación entre las bases apiladas e impedir la entrada de agua al interior hidrofóbico. Permite inclinar los enlaces fosfodiéster de manera óptima para disminuir el espacio vacío entre pares de bases consecutivas mientras mantiene estables los apareamientos

Según el esquema geométrico de la «escalera inclinada» (skewed ladder), ¿qué conflicto estérico surge al intentar cerrar los huecos de agua y cómo lo soluciona la torsión helicoidal?
Si la escalera simplemente se inclina de forma lineal, los huecos de agua (0.24 nm) se reducen a apenas 0.01 nm, pero los átomos vecinos chocan entre sí por impedimento estérico (atoms bump into each other).
Para evitar estos choques atómicos, la escalera se ve obligada a retorcerse ligeramente sobre su eje, convirtiendo la estructura en una escalera de caracol helicoidal

¿Cuáles son las fuerzas que mantienen la máxima estabilidad de la hélice de DNA y qué consecuencia topológica comporta para la célula?
Se mantiene por la suma de las fuerzas de apilamiento hidrofóbico entre bases y los puentes de hidrógeno entre apareamientos complementarios
Consecuencia: Al estar las dos hebras íntimamente entrelazadas y enlazadas de manera topológica, la célula requiere una maquinaria enzimática compleja y enrevesada para poder abrirlas y leerlas (transcripción y replicación)
¿Por qué la doble hélice natural de DNA gira a derechas (dextrógira) y no a izquierdas?
Es una consecuencia directa de la quiralidad de los azúcares. Una hélice levógira requeriría la pentosa beta-L-(desoxi)ribofuranosa, la cual no existe en los seres vivos; biológicamente se seleccionaron las beta-D-ribofuranosas
Termodinámicamente, ¿por qué una hélice construida con D-azúcares no adopta un giro levógiro?
Porque para una doble hélice construida con azúcares de la serie D, el giro levógiro posee una energía mayor (es menos estable) que el giro dextrógiro
¿Por qué las hebras del DNA son antiparalelas?
Porque la orientación paralela, que usaría emparejamientos WC reversos, no tiene un par G≡C, que es el más estable (esta es la diferencia de estabilidad principal de una hélice paralela, que puede existir in vitro)
¿Qué cambio metodológico ocurrió en los años 70 respecto al estudio cristalográfico del DNA y qué reveló sobre el modelo de Watson y Crick?
Se pasó de usar pseudocristales (no perfectos) a sintetizar DNA de longitud consistente y obtener cristales reales de secuencias cortas y definidas
Reveló que el modelo original era demasiado perfecto e idealizado: existían variaciones continuas sobre los parámetros "ideales" y promedios, obligando a definir parámetros de cambio conformacional geométrico
Además de las formas A y B, ¿qué forma inesperada del DNA se descubrió con estos estudios de alta resolución?
Se identificó la forma Z, una conformación de hélice a izquierdas (levógira)
¿Cuáles son las desviaciones de la idealidad del modelo W-C del DNA B?
W-C proponían 10 residuos por vuelta. Se sabe que son 10.4 o 10.5 (variable con la secuencia)
W-C proponían 3.4 nm por rosca de la hélice. Se sabe que son 3.54 nm (0.34 × 10.4) (variable con la secuencia)
W-C proponían 2 nm para su diámetro. Se sabe que son 2.37 nm
W-C proponían 36º para rotación por residuos (twist). Se sabe que son 34.6º (360º / 10.4) (variable con la secuencia)
W-C proponían 0º para la inclinación entre pb (tilt). Se sabe que es máximo 6º (variable con la secuencia)

¿Cuáles son los tipos de variaciones de las posiciones de las bases en relación a la idealidad, y a qué puede afectar estas variaciones?
Tipos de variaciones: traslaciones (desplazamientos respecto a los ejes en nm) y rotaciones (variaciones en los ángulos respecto a los ejes en grados)
Las variaciones pueden afectar a:
Un par de bases como una unidad (variación de la posición del par respecto a los ejes)
Dentro del par (variación de la posición de una base respecto a la otra del par)
Dos pares de bases (variación de la posición de un par respecto a otro)

Según la matriz de parámetros conformacionales del DNA, ¿qué movimientos de traslación y rotación se definen en cada uno de los tres niveles jerárquicos?
Un par de bases:
Traslaciones: marco de coordenadas (coordinate frame), desplazamiento en y, desplazamiento en x
Rotaciones: cabeceo/punta (tip), inclinación (inclination)
Dentro de un par de bases:
Traslaciones: escalonamiento (stagger), estiramiento (stretch), cizallamiento (shear)
Rotaciones: apertura (opening), alabeo o torsión de hélice (propeller twist), combado (buckle)
Dos pares de bases consecutivos:
Traslaciones: elevación (rise), deslizamiento (slide), desplazamiento lateral (shift)
Rotaciones: enrollamiento (twist), balanceo (roll), inclinación (tilt)
¿Cuáles son los movimientos principales entre pares de bases consecutivos, qué signo pueden tomar?
Son el enrollamiento (twist), el balanceo (roll), inclinación por pb (tilt), el desplazamiento (slide) y el alabeo (propellor twist)
Pueden producirse en sentido positivo o negativo

¿Cómo se define geométricamente la inclinación por par de bases (tilt)?
Es el ángulo entre los planos de dos pares de bases que se abre o se cierra hacia el esqueleto de azúcar-fosfato; es decir, medido en la dirección de los enlaces de hidrógeno del propio par (es de máximo 6º)
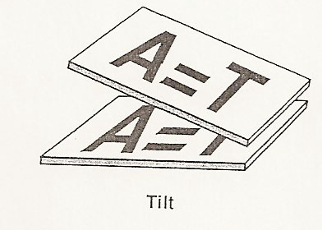
¿Qué es el balanceo (roll) entre pares de bases contiguos?
Es el ángulo que se forma entre los planos de dos pares de bases consecutivos medido en dirección perpendicular a la de los puentes de hidrógeno

¿Qué es el enrollamiento (twist) y qué problema de exposición al agua genera por sí solo?
Es la rotación en el plano de un par de bases respecto al par consecutivo (promedio de 34.6º)
Al producirse una rotación helicoidal, menos superficie total escapa al contacto con el agua: solo quedan protegidas las porciones centrales superpuestas, dejando al descubierto cuatro porciones triangulares exteriores expuestas desfavorablemente al solvente acuoso

¿Qué es el alabeo (propeller twist) y cómo soluciona el problema de desestabilización por agua del twist?
Es el movimiento de rotación o torsión de una base con respecto a su complementaria dentro del mismo par de bases (girando en sentidos opuestos como las aspas de la hélice de un avión)
Permite un mayor solapamiento e interacción hidrofóbica entre bases consecutivas de la misma hebra y reduce significativamente la superficie expuesta al agua
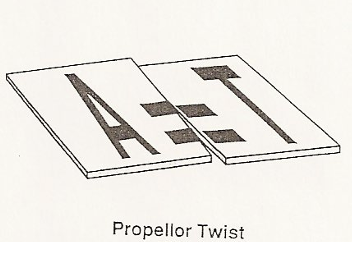
¿Por qué se dice que el alabeo (propeller twist) genera un peraltado opuesto y cuál es su convención de signo en el DNA real?
En una hebra las bases se alabean todas en el mismo sentido, pero como la hebra complementaria avanza en dirección opuesta, esta última adquiere un peraltado/inclinación en sentido contrario para sincronizar el apilamiento.
Por convención geométrica, el alabeo de las bases se considera siempre positivo en el DNA

¿Qué efecto tiene el alabeo sobre los enlaces de hidrógeno entre bases y cómo compensa la doble hélice este fenómeno?
Distorsiona los puentes de hidrógeno haciéndolos más largos, con menos energía y más débiles
Este «defecto de energía» queda ampliamente compensado por la optimización del apilamiento de las bases (las bases alabeadas aumentan su superficie de solapamiento hidrofóbico y reducen el contacto con el agua)
¿Qué ocasionaría el alabeo (propellor twist) y que deben hacer las bases para evitarlo?
Ocasiona “tropiezos” entre purinas que están en diferentes hebras. Para evitarlo las bases deben desplazarse (slide) y/o balancearse (roll)
El tropiezo causado por el alabeo depende de la naturaleza de la base (las purinas al ser más grandes tendrás mas tropiezo). Todas estas variaciones del modelo ideal del DNA al final depende de la secuencia de bases
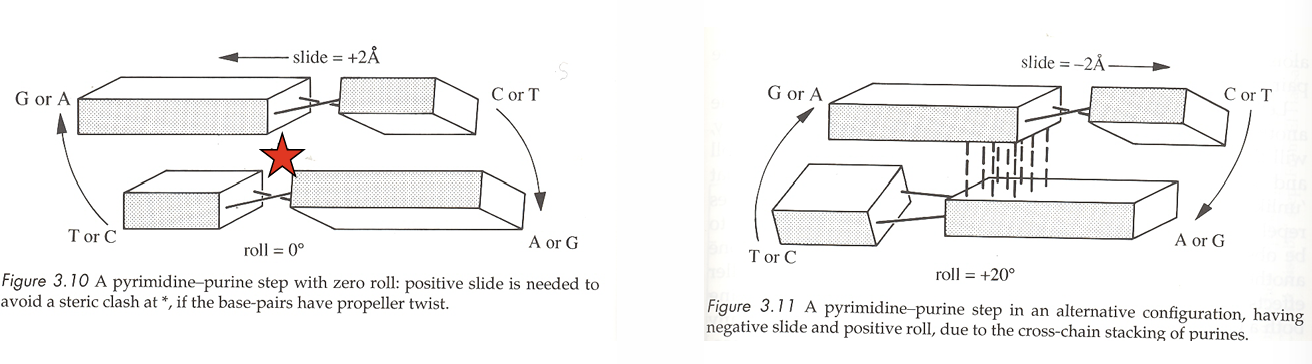
¿En qué se diferencia la concepción del modelo clásico de Watson y Crick frente a los hallazgos cristalográficos respecto a la secuencia de bases?
Modelo clásico: Planteaba que todos los apareamientos eran geométricamente equivalentes e independientes de los pares vecinos superiores o inferiores (estructura uniforme independiente de la secuencia)
Cristalografía real: Demostró que los parámetros locales de la doble hélice dependen directamente de la sucesión concreta de pares de bases
¿Por qué ΔG para los emparejamientos entre bases en forma de diferentes nucleótidos en RNA varían en función de las bases que intervienen?
Número de puentes de hidrógeno: G·C tiene 3 y A·U tiene 2. Por eso los pasos ricos en G·C son más estables que los de A·U
Apilamiento de bases (stacking): gran parte de la estabilidad viene de las interacciones de van der Waals y las interacciones hidrofóbicas entre los planos de las bases apiladas. El solapamiento depende de qué bases se apilan (purina/pirimidina) y de su orientación. Por eso CG/GC y GC/CG, que tienen las mismas parejas pero en distinto orden, tienen energías distintas
Pares G·U (wobble): son más débiles y distorsionan la geometría, así que aportan poco o nada (-0,3 o 0)
¿Por qué una protuberancia con una base desapareada tiene un ΔG mayor que un desapareamiento interior entre dos bases?
El ΔG mide el coste energético desfavorable (penalización) para mantener esa conformación:
En un desapareamiento interno de dos bases (un mismatch), ambas hebras mantienen el esqueleto en la hélice. Las bases desapareadas pueden quedarse dentro de la hélice y seguir apilándose con las parejas vecinas. Se pierde solo la energía de los puentes de H
En una protuberancia de 1 base, la base extra no tiene pareja y se sale de la hélice. Esto rompe el apilamiento entre las dos parejas que la flanquean y deforma el esqueleto, creando un “codo”. Además, la hebra que forma la protuberancia pierde libertad conformacional, lo que supone un coste entrópico
Por tanto, la protuberancia pierde más interacciones estabilizadoras y distorsiona más la hélice, y su ΔG positivo es mayor
¿Qué es la «estructura fina» del DNA y qué capacidad predictiva permite?
Es la variación conformacional local específica dependiente de los pasos de dinucleótidos adyacentes. Al conocer la secuencia de bases, es posible predecir con precisión la estructura fina tridimensional de esa doble hélice
¿Cuál es la conclusión biológica fundamental derivada de la «microheterogeneidad estructural» del DNA?
Que la secuencia del DNA no solo se lee mediante los grupos químicos expuestos en los surcos, sino que también se puede leer y reconocer a través de sus propias variaciones e irregularidades estructurales locales
¿Es el eje de la doble hélice de DNA siempre recto y de qué factor depende su curvatura?
No, el eje de la hélice no es necesariamente recto y puede presentar áreas de curvatura que alteran las dimensiones de ángulos y giros locales. Esta curvatura depende directamente de la secuencia de bases en dicha región de la molécula (y de los ángulos relativos entre bases consecutivas)

¿Qué movimiento entre pares de bases consecutivos equivale al ángulo entre losas en la curvatura tridimensional del DNA?
Equivale al movimiento de balanceo (roll) entre pares de bases contiguos
En estudios cristalográficos, ¿qué preferencias de balanceo (roll) muestran los pasos AA/TT frente a los pasos GC/GC?
Pasos AA/TT: prefieren valores de balanceo bajo (adecuados donde se requiere un giro más suave)
Pasos GC/GC: prefieren valores de balanceo alto (adecuados donde se requiere un giro más brusco)
¿Cómo se organiza el DNA en los nucleosomas cromosómicos respecto a la curvatura?
La mayor parte del DNA cromosómico se encuentra fuertemente curvado alrededor del octámero de histonas formando los nucleosomas (esto es energéticamente desfavorable, pero se ve compensado por las cargas positivas de los aminoácidos de las histonas)
¿Por qué no todos los pasos AA/TT o GC del DNA nucleosomal encajan estrictamente en su valor de balanceo preferente?
Porque las preferencias individuales de los aproximadamente 160 pasos de pares de bases del DNA del nucleosoma deben equilibrarse y compensarse globalmente entre sí para alcanzar un posicionamiento energético óptimo de conjunto (para que el DNA adopte globalmente la forma más estable alrededor del nucleosoma)
Además del empaquetamiento nucleosomal, ¿qué otro fenómeno biológico provoca cambios estructurales y curvatura en la doble hélice?
La unión específica de proteínas al DNA (como aquellas que reconocen secuencias reguladoras en regiones promotoras), lo cual induce una deformación conformacional y curva la doble hélice para ejercer su función

¿Qué formas de dobles hélices de DNA se han descrito y de cuáles existen evidencias de su existencia natural?
Se han descrito las formas: DNA-A, DNA-B, DNA-C, DNA-D, DNA-E, DNA-H, DNA-L y DNA-Z
Existen evidencias de existencia natural para: DNA-A (en condiciones de deshidratación y en RNA bicatenario), DNA-B (forma fisiológica, muy estable y la más abundante) y DNA-Z (inestable y en zonas con superenrollamiento negativo en exceso)
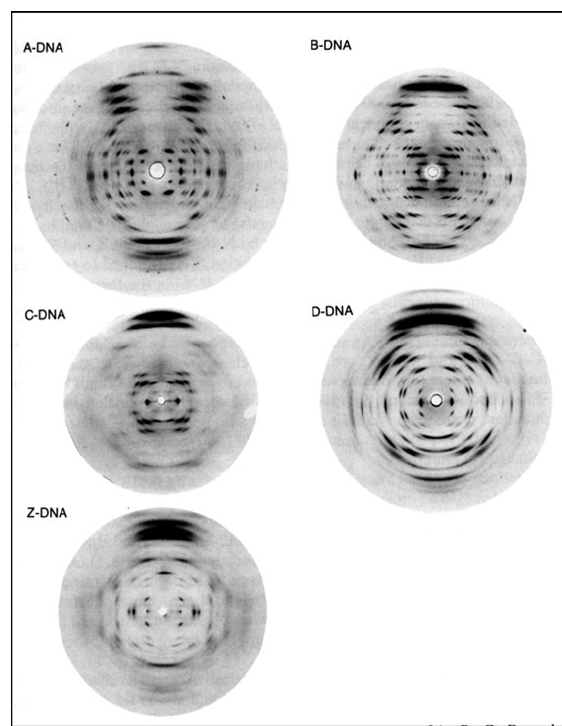
¿De qué factores depende la forma o conformación secundaria que adopta el DNA?
Depende de 3 factores fundamentales:
La secuencia de nucleótidos
La modificación química de las bases
La composición del solvente (por ejemplo, concentración de iones metálicos o presencia de poliaminas)
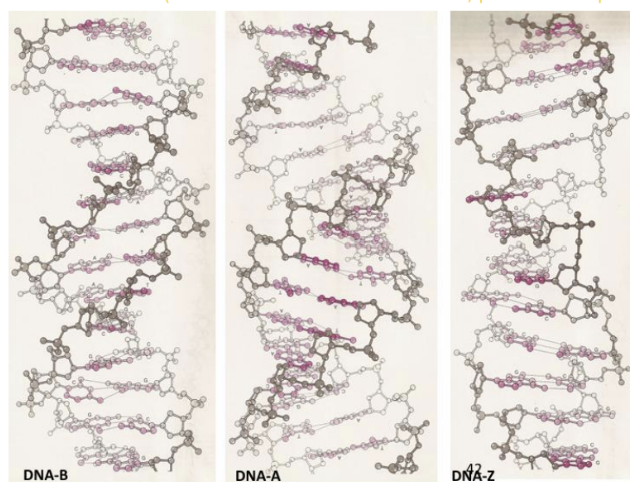
¿Qué tipo de apareamiento de bases se conserva en todos los tipos de DNA (DNA-A, DNA-B y DNA-Z)?
En todos los tipos de DNA los apareamientos entre bases siguen siendo de tipo Watson-Crick
¿Cómo se comparan la forma global, diámetro y sentido de giro de DNA-A, DNA-B y DNA-Z?
DNA-A: Ancha y corta; diámetro de 2.55 nm; sentido de giro dextrógiro.
DNA-B: Intermedia; diámetro de 2.37 nm; sentido de giro dextrógiro.
DNA-Z: La más estrecha y larga; diámetro de 1.84 nm; sentido de giro levógiro

¿Cómo son el surco mayor y el surco menor en las formas A, B y Z del DNA?
DNA-A: Surco mayor estrecho y profundo; surco menor ancho y superficial
DNA-B: Surco mayor ancho y de profundidad media; surco menor estrecho y poco profundo
DNA-Z: Surco mayor plano, sin profundidad; surco menor estrecho y profundo
¿Cómo varía el plegamiento del anillo de ribosa (sugar pucker) entre las tres formas de DNA?
DNA-A: C3’ endo (C2’ exo)
DNA-B: C2’ endo (esto no es posible en RNA)
DNA-Z: Alternante según la base: C2’ endo para pirimidinas (Py) y C3’ endo para purinas (Pu)

¿Qué conformación adopta el enlace glucosídico en DNA-A, DNA-B y DNA-Z?
DNA-A: Anti
DNA-B: Anti
DNA-Z: Alternante: Anti en pirimidinas (Py) y Syn en purinas (Pu)
¿Cuál es la conformación del enlace C4’-C5’ y qué restricción de secuencia tiene cada forma de DNA?
DNA-A: Conformación C4’-C5’: +sc; Secuencia: Cualquiera.
DNA-B: Conformación C4’-C5’: +sc; Secuencia: Cualquiera.
DNA-Z: Conformación C4’-C5’: +sc en Py y ap en Pu; Secuencia: Solo secuencias alternantes de purinas y pirimidinas (Pu-Py alternante)

¿Cómo es la calidad del apilamiento de bases en DNA-A, DNA-B y DNA-Z?
DNA-A: Bases mal apiladas
DNA-B: Bases muy bien apiladas
DNA-Z: Bases bien apiladas
¿Bajo qué condiciones se adopta la forma de DNA-A y qué aspecto global presenta en comparación con el DNA-B?
Se adopta en condiciones de deshidratación o en híbridos DNA-RNA. Su forma global es más ancha y más corta (más "chata") que la del DNA-B
La misma secuencia de DNA puede tener diferentes tamaños según el tipo de hélice que adopte
¿Cuál es la conformación del anillo de furanosa (sugar pucker) en el DNA-A frente al DNA-B y qué efecto tiene en el esqueleto?
En el DNA-A, el carbono C3' de la furanosa se sitúa en posición endo (mientras C1’, C2’, C4’ y el O son coplanares)
En el DNA-B, la conformación es C2' endo
Esta diferencia altera la distancia entre fosfatos contiguos y delimita el recorrido que sigue el esqueleto de la hélice en la polimerización

¿Por qué el RNA de doble cadena no puede adoptar la conformación B y solo forma estructuras tipo A?
Debido al impedimento estérico que genera su grupo 2'-OH. En una doble hélice tipo B con conformación C2'-endo, el grupo 2'-OH chocaría con átomos vecinos; por ello, el RNA en bicapa (o en híbridos con DNA) se ve forzado a adoptar la conformación tipo A. En cadena sencilla el 2'-OH no estorba porque la estructura es mucho más flexible
¿Por qué los pares de bases del DNA-A no son perpendiculares al eje helicoidal?
Presentan una inclinación que resulta clave para alojar el átomo de oxígeno en posición 2' presente en las cadenas de RNA

¿Tiene el DNA-A un canal o cavidad central?
Sí, a diferencia del DNA-B, el empaquetamiento y desplazamiento de los pares de bases en el DNA-A deja un agujero central a lo largo del eje de la hélice

¿Por qué se afirma que la definición de surco mayor y menor en el DNA-A no tiene fundamento físico estricto?
Porque se denominan así por analogía a la orientación relativa de las caras de las bases en el DNA-B. De hecho, físicamente en el DNA-A el surco más grande/amplio es el surco menor (que es ancho y superficial), mientras que el surco mayor es estrecho y profundo

¿Cómo son el apareamiento, la distancia vertical entre bases y el número de pares por vuelta en el DNA-A?
Los pares de bases son canónicos de tipo Watson-Crick (WC)
Están más juntos verticalmente: 0.255 nm (2.55 Å) de separación
Contiene 11 pares de bases por vuelta siendo la vuelta de 28 Å en vez de 34 Å
¿Por qué el DNA-A es menos estable que el DNA-B?
Puentes de H más separados horizontalmente (menor estabilidad)
Fosfatos más cercanos verticalmente (cargas eléctricas de repulsión) → Por eso se dan en concentraciones salinas altas, para que los iones salinos positivos compensen las cargas negativas de los fosfatos
¿Por qué es importante la anchura y profundiad del DNA?
Porque determina si una proteína puede interactuar con las bases o no. En el DNA-A aunque tengan más dificultad para acceder y llegar a las bases, es el surco mayor el que proporciona la información sobre las bases

¿En qué casos biológicos naturales se almacena o encuentra el DNA en conformación A?
En las esporas de bacterias, donde la baja concentración de agua y polímeros que secuestran agua mantienen el DNA en forma A en estado latente hasta su rehidratación
En el empaquetamiento del genoma de ciertos virus, como el virión del virus SIRV2 que infecta a arqueas termófilas extremas
¿Cómo se define el DNA-Z a nivel conformacional y qué secuencia nucleotídica requiere de forma exclusiva para originarse?
Se define como una doble hélice levógira (giro a izquierdas) con un esqueleto en zig-zag. Se produce únicamente en secuencias específicas que alternan purinas (Pu) y pirimidinas (Py), en concreto guaninas y citosinas (por ejemplo, secuencias repetitivas GCGCGC... lo que está relacionado con las C metiladas en las islas CpG). Es más estrecha y larga que el DNA-B con 12 pb por vuelta
