Protein sorting - kap 15
 Call Kai
 Learn
 Practice Test
 Spaced Repetition
 Match
 Flashcards
 Knowt Play
1/29

There's no tags or description
Looks like no tags are added yet.
30 Terms
Hvor transporteres proteiner hen, når de er dannet på henholdsvis frie ribosomer og ER-bundne ribosomer?
Frie ribosomer: mitokondrier, kloroplast, peroxisomer, nukleus eller blive cytoslen. ER-bundne ribosomer - endomembransystemet: Endosomer, lysosomer, golgi-apparatet, Plasmamembranen, kernenmembranen, ER
Hvilke tre overordnede mekanismer bruges til transport af proteiner mellem forskellige rum i en celle?
Proteiner transporteres ved gated transport gennem kerneporer mellem cytosolen og cellekernen, ved transmembran transport gennem organellers membraner eller ved vesikulær transport mellem organeller.
Hvad er en signalsekvens, og hvilken betydning har den for et proteins destination?
En signalsekvens er en bestemt polypetidkæde på et protein, der fungerer som en adresse og genkendes af specifikke transportmekanismer, som leder proteinet til den rette destination, mens proteiner dannet på frie-ribosomer uden en signalsekvens bliver i cytosolen.
Hvordan kan man vise, at en signalsekvens bestemmer et proteins destination?
Hvis ER-signalsekvensen fjernes fra et ER-protein, bliver proteinet i cytosolen, mens et normalt cytosolisk protein transporteres til ER, hvis det får tilføjet en ER-signalsekvens.
Hvordan kan man undersøge, om et protein er blevet transporteret ind i en organel?
Et radioaktivt mærket protein blandes med isolerede organeller; hvis proteinet transporteres ind i organellen, vil det findes sammen med organellen efter centrifugering og være beskyttet mod protease. Detergenter kan tilsættes som kontrol for at opløse membranen og vise, at proteinet derefter kan nedbrydes af proteasen, hvilket bekræfter, at det befandt sig inde i organellen.
Hvad er GFP, og hvordan kan det bruges til at undersøge et protein i levende celler?
GFP (green fluorescent protein) er et protein, der udsender grønt fluorescerende lys, når det belyses med blåt lys; GFP kan kobles til et protein, hvis placering og bevægelse kan følges i levende celler.
Hvad er et nuclear localization signal (NLS), og hvordan kan man vise dets konsekvens?
Et nuclear localization signal (NLS) er en signalsekvens i et protein, der fungerer som en adresse for et protein, som skal ind i nukleus; man kan vise, at NLS er nødvendigt ved at ændre eller fjerne det og se, at proteinet ikke længere transporteres ind i nukleus.
Hvilke tre mekanismer kan transportere proteiner mellem cellens forskellige rum?
1. Proteiner kan transporteres intakte gennem kerneporer i kernemembranen.
2. De kan transporteres gennem membranen via transportproteiner kaldet translokatorer, hvor de udfoldes før transport og foldes igen bagefter.
3. Transporteres via vesikler.
Hvordan er kerneporekomplekset overordnet opbygget?
Kerneporekomplekset er et stort proteinkompleks, der går gennem den indre og ydre kernemembran og består af en ringformet pore med fibriller, samt uordnede polypeptidkæder i poren, som forhindrer store molekyler i at passere frit.
Hvordan transporteres et protein med et NLS fra cytosolen ind i cellekernen?
En nukleær importreceptor genkender og binder proteinets NLS. Leder proteinet til kerneporen ved at interagere med de cytosoliske fibriller. Fører det gennem poren ved at forstyrre interaktionerne mellem bestemte proteiner i kerneporen. Proteinet og importreceptoren adskilles inde i kernen.
Hvordan bidrager små GTPaser til aktiv transport ind i cellekernen?
Inde i kernen binder Ran-GTP til importreceptoren, så det importerede protein frigives. Herefter transporteres receptor–Ran-GTP tilbage til cytosolen. Hvor Ran-GAP stimulerer hydrolyse af GTP til GDP, så Ran-GDP slipper fra importreceptoren. Ran-GDP transporteres tilbage til kernen, hvor Ran-GEF udskifter GDP med GTP. Dette sikrer retningsbestemt transport af proteiner ind i kernen.
Hvilke funktioner har kernemembranen?
Kernemembranen adskiller kernens indhold fra cytosolen, regulerer transporten af molekyler ind og ud af kernen gennem kerneporerne og bidrager via den nukleære lamina til at give kernen struktur og organisere kromatinet.
Hvor kommer mitokondriernes proteiner fra?
Mitokondrier har eget DNA og ribosomer og kan derfor danne nogle af deres egne proteiner. De fleste mitokondrieproteiner er dog kodet af gener i cellekernen, syntetiseres på ribosomer i cytosolen og importeres derefter til mitokondrierne.
Hvad kendetegner signalsekvensen, der leder et protein til mitokondriet?
Den mitokondrielle signalsekvens findes i proteinets N-terminale ende og danner en amfipatisk α-helix med positivt ladede aminosyrer på den ene side og upolære aminosyrer på den anden side.
Hvad er TOM og TIM, og hvilken funktion har de ved import af proteiner til mitokondriet?
TOM er en translokator i den ydre mitokondriemembran, og TIM er en translokator i den indre mitokondriemembran, som tilsammen danner transportvejen, så proteiner kan transporteres gennem begge membraner og ind i mitokondriet.
Hvordan importeres et protein fra cytosolen til mitokondriets matrix?
Proteinets signalsekvens genkendes og bindes af en receptor ved TOM i den ydre membran, hvorefter proteinet foldes ud og transporteres gennem TOM og TIM over begge membraner; i det mitokondrielle matrix kløves signalsekvensen af, og proteinet foldes igen ved hjælp af chaperoneproteiner.
Hvad er molekylære chaperoner, og hvad er deres funktion?
Molekylære chaperoner er proteiner, der hjælper andre proteiner med at folde korrekt ved bl.a. at binde til eksponerede hydrofobe områder og dermed forhindre fejlfoldning.
Hvad er peroxisomers vigtigste funktioner?
Peroxisomer indeholder enzymer, der medvirker til nedbrydning af bl.a. fedtsyrer og toksiske stoffer, hvor der dannes H₂O₂, som derefter nedbrydes af katalase; de medvirker også til dannelse af fosfolipider.
Hvordan importeres proteiner fra cytosolen til peroxisomer?
Proteiner med en PTS-signalsekvens genkendes og bindes af en importreceptor i cytosolen, hvorefter de transporteres gennem et translokon i peroxisomets membran. Proteinerne kan importeres i foldet form.
Hvad bestemmer, om proteinsyntesen foregår på frie ribosomer eller på ribosomer bundet til ru ER?
Ribosomer kommer fra den samme fælles pulje og starter translationen frit i cytosolen. Hvis den voksende polypeptidkæde har en ER-signalsekvens, ledes ribosomet med mRNA'et til ER-membranen, hvor translationen fortsætter. Dannes der ingen ER - signalsekvens fortsætter translationen i cytosolen.
Hvordan bindes ribosomer til ru ER?
SRP (signal-recognition particle) binder til ER-signalsekvensen på den voksende polypeptidkæde og til ribosomet. SRP binder til SRP-receptoren i ER-membranen og kobler ribosomet til et translokon på Rough ER
Hvordan transporteres et opløseligt protein ind i ER-lumen?
SRP binder til ER-signalsekvensen og ribosomet og fører dem til SRP-receptoren i ER-membranen, hvorefter ribosomet bindes til en translokationskanal, SRP frigives, og den fortsatte proteinsyntese fører polypeptidkæden gennem translokonet ind i ER-lumen, hvor signalpeptidase kløver ER-signalsekvensen af, så det færdige opløselige protein frigives i ER-lumen.
Hvorfor fjernes NLS-signalsekvensen ikke fra kerneproteiner, og hvilken betydning har det under mitosen?
Signalsekvensen på proteiner til nukleus fjernes ikke. Hvis signalsekvensen (NLS) blev fjernet fra et nukleært protein, ville proteinet ikke kunne importeres tilbage i kernen efter mitose.
Hvordan foregår syntesen af transmembranproteiner i ER?
En hydrofob start-transfer-sekvens binder i translokationskanalen og starter transporten af den voksende polypeptidkæde ind i ER-lumen. Når den hydrofobe stop-transfer-sekvens når translokationskanalen, stopper transporten. Start-transfer-sekvensen kløves af, af signalpeptidase under processen. Stop-transfer-sekvensen frigives sidelæns ind i ER-membranen, hvor den bliver siddende gennem membranen som proteinets transmembrane domæne og forbinder den cytosoliske del af proteinet med delen i ER-lumen.
Hvordan indsættes multi-pass transmembranproteiner i ER-membranen?
Et multi-pass transmembranprotein indeholder flere hydrofobe start- og stop-transfer-sekvenser. En start-transfer-sekvens starter transporten af den efterfølgende polypeptidkæde gennem translokationskanalen ind i ER-lumen, mens en stop-transfer-sekvens stopper transporten, hvorefter begge hydrofobe sekvenser frigives sidelæns fra translokationskanalen og bliver siddende i ER-membranen som transmembrane domæner, og ved gentagelse af skiftende start- og stop-transfer-sekvenser kommer proteinet til at krydse membranen flere gange.
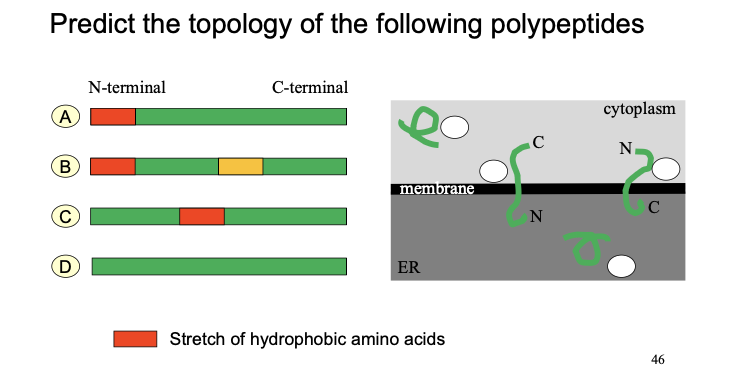
Forudsig topologien af følgende polypeptider.
Reglern: Skal aflæses fra N-teminalen.
Hvis den sidder helt i starten (som i A og B), fungerer den som en ER-signalsekvens, der starter transporten gennem translokationskanalen. Hvis der ikke kommer en stop-transfer-sekvens, fortsætter hele proteinet ind i ER-lumen.
Hvis proteinet først har en N-terminal signalsekvens og derefter en stop-transfer-sekvens, stopper transporten, når stop-transfer-sekvensen når translokationskanalen. Stop-transfer-sekvensen bliver siddende i ER-membranen, mens resten af proteinet dannes på den cytosoliske side
C har en intern start-transfer-sekvens og bliver et transmembranprotein med N-terminalen i cytosolen og C-terminalen i ER-lumen; D mangler en signalsekvens og bliver derfor i cytosolen.
Hvordan og hvorfor dannes disulfidbindinger i ER?
I ER hjælper enzymet PDI med at danne disulfidbindinger mellem cysteiner i én polypeptidkæde eller mellem to forskellige polypeptidkæder, hvilket stabiliserer proteinets struktur. Disulfidbindinger findes oftere i proteiner i ER end i cytosolen, fordi ER har et oxiderende miljø.
Hvad sker der ved N-glykosylering af proteiner i ER, og hvilken funktion har det?
Ved N-glykosylering i ER sættes en sukkerkæde på aminosyren asparagin i et protein. Sukkerkæden beskytter proteinet mod nedbrydning og kan hjælpe med at holde det tilbage i ER eller sortere det til transport i vesikler.
Hvad er et GPI-anker, og hvilken funktion har det?
Et GPI-anker er et glykolipid, der bindes til proteinets C-terminal i ER og forankrer proteinet til membranen uden at proteinet går gennem selve membranen.
Hvordan dannes nye membranlipider i det glatte ER?
Membranlipider syntetiseres i det glatte ER og indsættes først i den cytosoliske side af ER-membranen, hvorefter flippaser flytter lipider til den anden side, og fordeler dem.