EME II - Tema 12: Topología del DNA
 Call Kai
 Learn
 Practice Test
 Spaced Repetition
 Match
 Flashcards
 Knowt Play
1/36

There's no tags or description
Looks like no tags are added yet.
Name | Mastery | Learn | Test | Matching | Spaced | Call with Kai | Chat |
|---|
No analytics yet
Send a link to your students to track their progress
37 Terms
¿En qué consiste el "problema topológico" de la doble hélice del ADN formulado en 1957?
Para replicarse o transcribirse, la doble hélice debe abrirse y separar sus dos hebras
En 1957 se postuló que el ADN debería girar sobre sí mismo a gran velocidad para desenrollarse
Esto resulta físicamente inviable si la molécula es sumamente larga o si es una estructura circular cerrada covalentemente
Obliga a la existencia de un mecanismo que corte de forma transitoria una o ambas hebras
¿Qué es el "enlace topológico" del ADN y por qué dificulta la separación de sus hebras?
Es un tipo de enlace no químico resultante del entrelazamiento físico helicoidal de las dos hebras
En una molécula circular o con extremos fijados, el número de veces que se cruzan las dos hebras no puede alterarse sin romper covalentemente el esqueleto fosfodiéster, impidiendo su separación espontánea
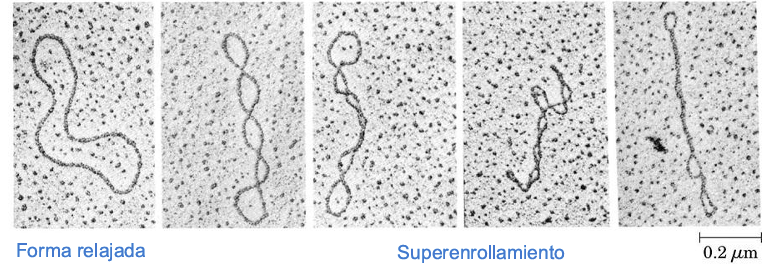
¿En qué consistieron los experimentos de Vinograd de 1965 con ADN del virus del polioma (SV40) y qué detectó en electroforesis en gel de agarosa?
Purificó ADN circular del virus del polioma (SV40) y lo analizó mediante electroforesis en gel de agarosa y centrifugación en gradiente de densidad (técnicas que separan según forma/volumen hidrodinámico)
Aunque se trataba de la misma molécula (idéntica secuencia y longitud de pares de bases), en el gel aparecían dos bandas principales:
Forma I: Menor volumen aparente, mayor movilidad electroforética (avanza más en el gel).
Forma II: Mayor volumen aparente, menor movilidad (avanza menos en el gel)
Demostró que el "tamaño" aparente depende de cómo se compacta y empaqueta la molécula en el espacio

¿Cuáles son las 3 bandas obtenidas por Vinograd en la centrifugación en gradiente de densidad, su coeficiente de sedimentación y su estado conformacional?
Banda I (20S): Mayor velocidad de sedimentación (mayor densidad/compactación); corresponde a ADN de doble hebra circular superenrollado (estructura más compacta)
Banda II (16S): Velocidad de sedimentación intermedia; corresponde a ADN de doble hebra circular relajado
Banda III (14S): Menor velocidad de sedimentación; corresponde a ADN de doble hebra lineal (estructura menos compacta)
Las bandas II y III suelen generarse como artefactos por la manipulación y purificación mecánica del ADN

¿Qué ocurre con la Banda I de ADN superenrollado al tratarla enzimáticamente con ADNasa?
Un corte simple (nick) en una sola hebra alivia la tensión torsional y transforma la Banda I en Banda II (circular relajado)
Si se produce un corte bicatenario en ambas hebras, la molécula se abre y se convierte en la Banda III (ADN lineal)
¿Por qué el superenrollamiento del ADN es biológicamente indispensable para virus y células?
Permite empaquetar y confinar moléculas enormes de material genético dentro del volumen sumamente reducido de una cápsida viral, un núcleo celular o el nucleoide procariota
La evolución de mecanismos de empaquetamiento y compactación ha sido uno de los motores clave que permitió el crecimiento del tamaño del genoma y la complejidad de los organismos
¿Qué son los topoisómeros del ADN?
Son moléculas idénticas de ADN (misma secuencia y masa molecular) que difieren únicamente en su estado topológico, es decir, en su número de supervueltas o grado de enrollamiento espacial
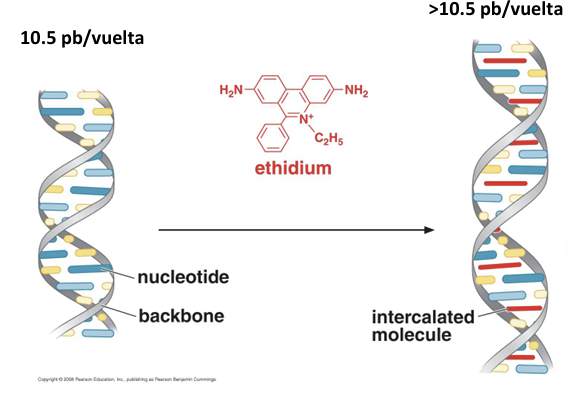
¿Cómo actúa el bromuro de etidio (BrEt) sobre la doble hélice del ADN a nivel molecular y qué alteración produce en el giro helicoidal?
Es una molécula plana y aromática que se intercala de forma hidrofóbica entre los pares de bases apilados de la doble hélice
Al introducirse entre los pares de bases, aumenta la distancia axial entre ellos y desenrolla la hélice en un ángulo de 26º por cada molécula de BrEt intercalada
Como consecuencia:
Cada 14 moléculas de BrEt intercaladas eliminan 1 vuelta completa de la doble hélice (14 × 26º ≈ 360º, perdiendo 1 unidad de torsión)
Aumenta el número de pares de bases por vuelta (> 10.5 pb/vuelta)
Disminuye el número total de vueltas helicoidales del ADN
En una molécula de ADN circular cerrada, ¿qué efecto genera la pérdida de torsión provocada por el BrEt sobre la topología global?
Al tratarse de una molécula cerrada covalentemente, el número total de enlaces topológicos está fijado y no puede variar
El BrEt puede reducir la torsión intrínseca de la doble hélice, pero no altera la topología global fija
Para contrarrestar la pérdida de torsión helicoidal, la molécula se ve forzada a generar enzarcillamiento o supervueltas en su propio eje para compensar la deformación
Tomando un cromosoma circular hipotético relajado de 210 pb (a 10.5 pb/vuelta, 20 vueltas de hélice), ¿qué ocurre si se le quita 1 vuelta de hélice manteniendo fija la longitud de bases?
La molécula pasa a contener teóricamente 19 vueltas, lo que forzaría un valor energéticamente desfavorable de 11.1 pb/vuelta
Esto sitúa al ADN en un estado tenso o no relajado de mayor energía libre
Para restablecer los parámetros energéticamente óptimos de la forma B (10.5 pb/vuelta), la molécula libera la tensión torsional contorsionando su eje longitudinal en un bucle o superhélice
Se forma 1 supervuelta en sentido negativo, alcanzando la conformación de mínima energía por superenrollamiento negativo

En el mismo cromosoma circular de 210 pb, ¿qué ocurre si se le añade 1 vuelta de hélice?
Pasa a tener 21 vueltas de hélice, reduciendo los pares de bases a 10.0 pb/vuelta
La molécula entra en un estado tenso de sobre-enrollamiento
La tensión se libera contorsionando el eje en sentido contrario, formándose 1 supervuelta en sentido positivo, compactando el ADN por superenrollamiento positivo

¿Cómo se define la torsión (T) del ADN y cuál es su fórmula matemática general?
Es el número de vueltas de la doble hélice que posee una molécula completa de ADN de una longitud determinada (velocidad angular de rotación en relación a la longitud del arco recorrido sobre el eje helicoidal)
Su fórmula es:
T=paso de rosca (n∘ pb/vuelta)n∘ pb

¿Cuáles son las propiedades matemáticas y de signo de la torsión (T)?
Naturaleza: Es una magnitud geométrica
Valores: Toma valores continuos (puede ser un número entero o decimal)
Convenio de signos: Es positiva (+) si la hélice gira a derechas (dextrógira) y negativa (-) si gira a izquierdas (levógira)

¿Cómo se calcula la torsión (T) en las formas ADN-B, ADN-A y ADN-Z?
ADN-B: T=+10.5n (hélice a derechas; 1 vuelta de 10.5 pb tiene T = +1). Por ejemplo, un fragmento de 35 pb tiene T=10.535 = +3.33
ADN-A: T=+11n (hélice a derechas; 1 vuelta de 11 pb tiene T = +1)
ADN-Z: T=−12n (hélice a izquierdas; 1 vuelta de 12 pb tiene T = -1)
¿Por qué la torsión (Tº) suele mantenerse constante (ΔT→0) y qué compuestos pueden modificarla?
Porque para la doble hélice son termodinámicamente desfavorables las desviaciones de su número "natural" de pb/vuelta (10.4-10.5 pb en ADN-B), por lo que T tiende a permanecer fija para una longitud de secuencia dada
Puede ser alterada por compuestos intercalantes (como el bromuro de etidio), que desenrollan la hélice y reducen el número de vueltas
¿Cómo se define el índice de enlace (L o E, linking number)?
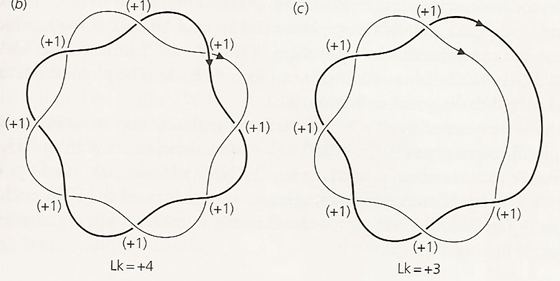
Es el número de veces que una hebra de ADN está ligada o pasa alrededor de la otra (número de enlaces topológicos)
Representa las veces que las cadenas se cruzan, ya sea como vueltas de la doble hélice o formando supervueltas
Es un ligamiento físico no covalente (equivalente a los eslabones cerrados de una cadena) que impide físicamente separar las dos hebras tirando de ellas en sentido opuesto sin romper enlaces químicos

¿Cuáles son las propiedades matemáticas fundamentales del índice de enlace (L)?
Es una magnitud topológica (matemática)
Solo toma valores enteros (nunca decimales; es un invariante topológico discreto)
Por convenio toma valores positivos (+) al girar a derechas y negativos (-) al girar a izquierdas
En una molécula circular covalentemente cerrada, el valor de L es constante e invariable a menos que se rompan enlaces covalentes fosfodiéster
¿Bajo qué condición física existe el índice de enlace (L) y qué ocurre en el ADN lineal?
Solo existe si hay cierre topológico: en moléculas circulares cerradas covalentemente o en moléculas lineales con sus extremos fijados o sellados (como el ADN eucariota anclado covalentemente a proteínas de la matriz nuclear)
Si el ADN es lineal y tiene extremos libres (sin cierre topológico), no existe enlace topológico y formalmente L = 0 (el ADN lineal tiene torsión T, pero carece de índice de enlace L)
¿Cómo se puede alterar o cambiar el valor de L en una molécula cerrada?
Requiere romper enlaces covalentes fosfodiéster de una o ambas hebras mediante nucleasas (o topoisomerasas), introducir o deshacer vueltas de hélice y volver a sellar las hebras con ligasas
En una molécula de ADN-B circular relajada, ¿qué relación matemática guardan L y T, y qué valor toma L en un fragmento de 35 pb?
En un ADN cerrado relajado, L = T (tomando L el valor entero correspondiente)
Una vuelta completa de 10.5 pb aporta un enlace topológico (L = +1)
Para 35 pb, como la torsión es T = +3.33 y L debe ser estrictamente un número entero sin extremos libres, su índice de enlace toma el valor entero L = +3
¿Cómo se define el enzarcillamiento (W o Z, writhe)?
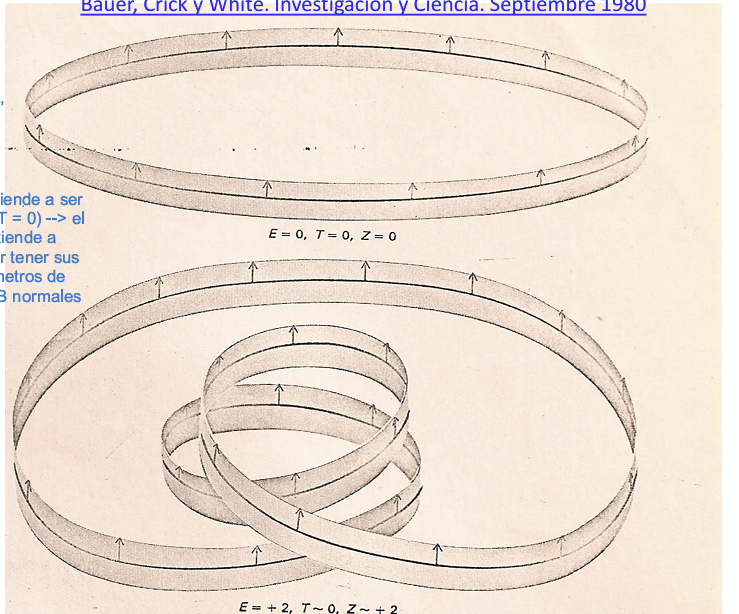
Es la medida geométrica del superenrollamiento en sentido literal: el número de supervueltas o deformaciones tridimensionales del eje central de la doble hélice sobre sí mismo en el espacio
También se describe como el número de veces que la doble hebra cruza por encima de sí misma cuando la molécula se proyecta sobre un plano (formación de bucles o lazos que aproximan espacialmente regiones alejadas)
¿Cuáles son las propiedades matemáticas del enzarcillamiento (W)?
Es una magnitud geométrica
Toma valores continuos (puede ser decimal, ya que surge de la diferencia entre el valor discreto L y el valor continuo T)
Convenio de signos: Valores negativos (-) indican superenrollamiento negativo (giro a derechas en superenrollamiento no constreñido); valores positivos (+) indican superenrollamiento positivo (a izquierdas)
En una molécula de ADN relajada, W = 0

¿Cuál es la ecuación fundamental que relaciona el índice de enlace (L), la torsión (T) y el enzarcillamiento (W)?
L=T+W
De aquí se deduce que el enzarcillamiento es la diferencia entre el índice de enlace y la torsión:
W=L−T

¿Qué es L0 y cómo se define la variación del índice de enlace (ΔL)?
L0: Es el índice de enlace de una molécula de ADN completamente relajada en condiciones fisiológicas (L0 = T, donde W = 0)
ΔL : Es la variación de enlaces topológicos respecto al estado relajado:
ΔL=L−L0
Representa la medida directa del grado de superenrollamiento de una molécula cerrada
Si se produce un cambio en L (ΔL=0) pero la torsión T se mantiene invariable (ΔT=0), ¿qué parámetro absorbe toda la deformación?
Toda la tensión se traduce íntegramente en enzarcillamiento:
ΔL=W
Al quitar o añadir vueltas a una molécula cerrada con T fija, aparecen obligatoriamente supervueltas (W) para compensar el desajuste y mantener constante el número natural de pb/vuelta (T)
¿Qué son los topoisómeros según las variables L, T y W?
Son moléculas idénticas de ADN que poseen la misma torsión (T) pero difieren en su índice de enlace (L), lo que se traduce en diferencias discretas en su número de supervueltas o enzarcillamiento (W)
Tomando como referencia una molécula circular de 210 pb con torsión T = 20, ¿cuáles son los valores de L, superenrollamiento y signo para las diferentes conformaciones mostradas en las figuras?
Relajado: L = 20, superenrollamiento = 0 (W = 0)
Superenrollamiento negativo:
L = 19 → superenrollamiento = -1 (W = -1)
L = 18 → superenrollamiento = -2 (W = -2)
Superenrollamiento positivo:
L = 21 → superenrollamiento = +1 (W = +1)
L = 22 → superenrollamiento = +2 (W = +2)
¿Cuándo se dice que existe superenrollamiento en una molécula de ADN y por qué variable viene definido?
Se dice que existe superenrollamiento cuando el índice de enlace (L) es distinto de L0
Viene estrictamente definido por el valor de ΔL = L - L0
Como habitualmente la torsión (T) suele mantenerse en su valor natural (T0), ΔL suele equivaler a W (enzarcillamiento), aunque no siempre es idéntico
¿Cuáles son las dos excepciones donde ΔL no equivale de forma exacta a W?
Cuando T no es un número entero: En un ADN circular, si el número de pb no es múltiplo exacto de los pb/vuelta, T resulta decimal pero L debe ser estrictamente un número entero; esto genera una diferencia residual que se manifiesta como un pequeño enzarcillamiento basal (W ≠ 0 incluso sin superenrollamiento formal, ej. para T = 0.8 se requiere W = 0.2 para dar L = 1)
Cuando T se aleja de su valor natural T0: Por ejemplo, al tratar el ADN con agentes intercalantes como el bromuro de etidio (BrET), la torsión se altera directamente y no todo el ΔL se aprecia como W
¿Puede existir enzarcillamiento o supervueltas (W ≠ 0) sin que cambie el índice de enlace (L constante)?
Sí. Sin romper ni cortar la cadena (manteniendo L fijo), es posible actuar sobre T mediante proteínas o agentes intercalantes como el BrEt
El BrEt desenrolla la doble hélice disminuyendo T; como la molécula circular cerrada está obligada a mantener L invariable, compensa esa reducción forzando la aparición de supervueltas (W)
En este escenario, la molécula no está propiamente superenrollada por cambio de enlaces (ΔL = 0), pero sí posee enzarcillamiento geométrico real (W ≠ 0)
A partir de un fragmento lineal de ADN-B de 105 pb doblado en círculo (T = 10 vueltas, 10.5 pb/vuelta), ¿qué ocurre si simplemente se unen sus extremos?
Aparece cierre topológico y se forma un círculo relajado
Sus parámetros son: L = 10, T = 10 (10.5 pb/vuelta) y W = 0 (L = T)
En el mismo ADN de 105 pb, ¿qué ocurre si antes de sellar los extremos se torsionan hacia la izquierda una vuelta (quitar una vuelta)?
Se forma inicialmente un círculo tensionado inestable, en el cual la torsión se reduce forzosamente a T = 9\vueltas con un índice de enlace fijado en L = 9 (W = 0)
Como la longitud en pb es fija (105 pb), el paso de rosca se distorsiona de forma energéticamente desfavorable:
pb/vuelta=TN=9105=11.67 pb/vuelta
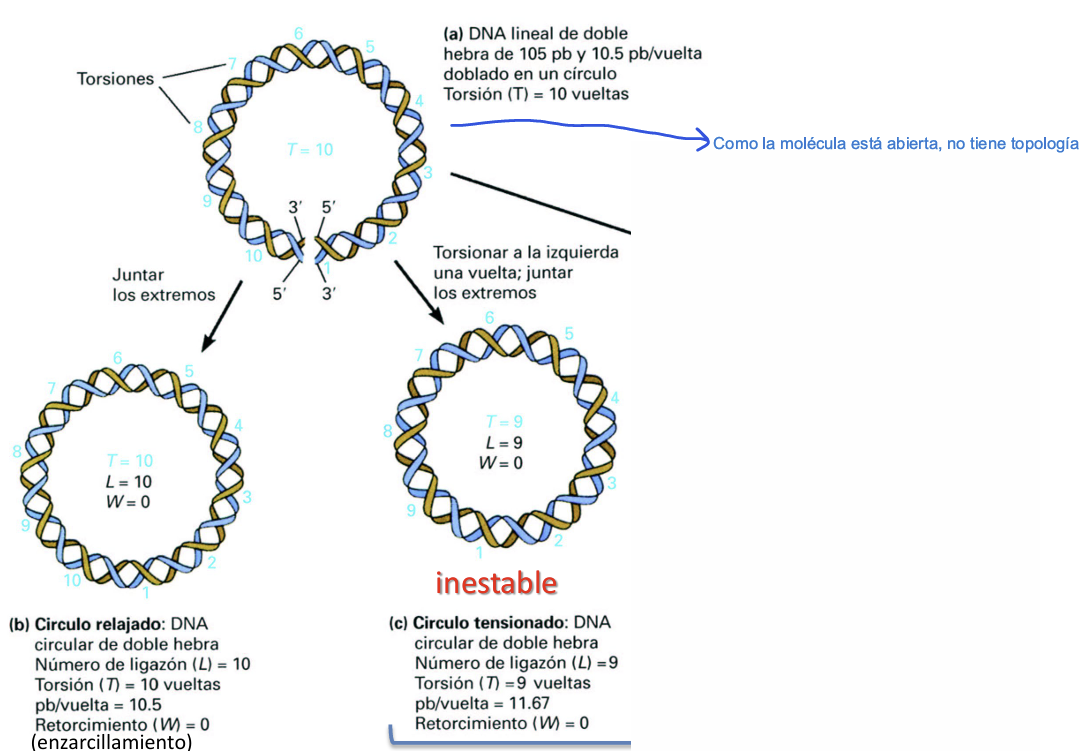
¿Cómo alivia su tensión el círculo tensionado inestable (L = 9, T = 9) para restablecer su geometría natural?
La molécula tiende espontáneamente a recuperar la torsión original óptima del ADN-B (T = 10 vueltas a 10.5 pb/vuelta)
Para mantener la igualdad matemática L = T + W con L = 9, se genera obligatoriamente 1 unidad de enzarcillamiento negativo (W = -1):
9=10+(−1)
Topológicamente se traduce en la formación de una supervuelta en forma de "ocho", dando lugar a una estructura de ADN superenrollado negativamente (ΔL = -1), la cual es más estable y almacena "energía de superenrollamiento"

¿Qué ocurre con la energía almacenada en el ADN superenrollado negativamente si se introduce un corte simple (nick) en una hebra?
Al cortarse una sola hebra desaparece el cierre topológico; las supervueltas se disipan instantáneamente al girar libremente los extremos sobre el enlace fosfodiéster intacto, liberando la energía de superenrollamiento y transformando la molécula en un círculo relajado
¿Cuáles son las 4 reglas fundamentales sobre el índice de enlace (L) en moléculas cerradas covalentemente?
L solo está definido para ADN cerrado covalentemente y permanece fijo e invariable mientras la molécula mantenga su integridad covalente
L no varía independientemente de si el círculo se obliga mecánicamente a permanecer plano en una conformación tensionada o si se le permite superenrollarse libremente en el espacio (al no romper ninguna cadena, se modifica T y W pero L no cambia)
L solo puede modificarse rompiendo un enlace fosfodiéster en al menos una de las cadenas, permitiendo el paso de la hebra intacta y volviendo a sellar covalentemente el corte
L es siempre un número entero, ya que las dos hebras deben enrollarse un número entero exacto de veces al cerrarse el círculo
¿Qué quiralidad/sentido de giro geométrico adoptan las supervueltas en el superenrollamiento negativo vs. positivo?
Superenrollamiento negativo (W < 0, L < T, ΔL < 0): Corresponde a haber quitado vueltas; las supervueltas espaciales son dextrógiras
Superenrollamiento positivo (W > 0, L > T, ΔL > 0): Corresponde a haber añadido vueltas; las supervueltas espaciales son levógiras
(Nota conceptual: El signo + o − se asigna en función de la variación de W, no por la denominación clásica del giro en el espacio)

Desde el punto de vista biofísico y energético, ¿cómo se relacionan dos moléculas de ADN que poseen superenrollamientos de signo opuesto pero el mismo valor absoluto de W?
Son conformacionalmente imágenes especulares entre sí
Son energéticamente iguales, ya que ambas almacenan exactamente la misma cantidad de tensión/energía de superenrollamiento deformante en su estructura