EME II - Tema 14: Estructura del RNA
 Call Kai
 Learn
 Practice Test
 Spaced Repetition
 Match
 Flashcards
 Knowt Play
1/109

There's no tags or description
Looks like no tags are added yet.
110 Terms
En cuanto a proporción celular, ¿qué lugar ocupa el RNA entre los ácidos nucleicos y respecto a otras macromoléculas?
Constituye la mayor parte de los ácidos nucleicos de la célula
Proporciones cuantitativas celulares: 50% proteínas, 20% RNA y 5% DNA
¿Cómo se compara el RNA con el DNA a nivel de versatilidad estructural y reactividad química, y a qué se deben estas diferencias?
El RNA presenta mayor versatilidad estructural y mayor reactividad química que el DNA
Estructural: Pese a ser predominantemente monocatenario, puede plegarse sobre sí mismo formando estructuras tridimensionales complejas (con la excepción del mRNA, que no adopta una conformación terciaria plegada fija y se mantiene lineal)
Química: La ribosa posee un grupo -OH libre en el carbono 2', lo que la convierte en una molécula mucho más reactiva que el DNA (cuyos carbonos no tienen ese hidroxilo libre y todos sus grupos reactivos participan en enlaces)
¿En qué situaciones biológicas actúa el RNA como material genético y qué ejemplos destacan?
Solo en algunos casos concretos constituye el material genético: en los virus de RNA
Ejemplos: TMV (Tobacco Mosaic Virus o virus del mosaico del tabaco) y SARS-CoV-2
¿Qué tipos funcionales de RNA existen en la célula y qué explica esta diversidad?
Existen múltiples tipos de RNA:
hnRNA (RNA heterogéneo nuclear)
mRNA (RNA mensajero)
tRNA (RNA de transferencia)
rRNA (RNA ribosómico)
scRNA (pequeño RNA citoplasmático)
snRNA (pequeño RNA nuclear)
snoRNA (pequeño RNA nucleolar)
circRNA (RNA circular)
Esta gran diversidad molecular es la que explica la enorme variedad de funciones celulares que son capaces de llevar a cabo
¿Por qué la sustitución de timidina por uridina no es un rasgo discriminante estructural entre el RNA y el DNA?
Químicamente, el uracilo difiere de la timina únicamente en la ausencia del grupo metilo (-CH3) en la posición C5 de la base pirimidínica
El grupo metilo de la timina no participa en la formación de los puentes de hidrógeno del apareamiento de bases
Por tanto, la presencia de uracilo en el DNA no cambiaría su naturaleza ni alteraría su estructura tridimensional; es un factor discriminante en cuanto a secuencia, pero no en cuanto a estructura

¿Cuáles son las consecuencias estructurales y químicas de tener ribosa en lugar de 2’-desoxirribosa (presencia del -OH en C2') en el RNA?
Mayor reactividad química: El par solitario del oxígeno del 2'-OH favorece la catálisis y los ataques nucleofílicos intramoleculares
Formación de puentes de hidrógeno: El grupo 2'-OH actúa como donador/aceptor de hidrógeno adicional, estabilizando plegamientos terciarios complejos
Determinante de la conformación de la doble hélice: Es estrictamente discriminante. Para adoptar la conformación de hélice tipo B (propia del DNA), la pentosa requiere un pucker del anillo en conformación C2'-endo. La presencia del voluminoso grupo -OH en C2' del RNA impide por impedimento estérico la conformación C2'-endo
Por consiguiente, si el RNA forma dobles hélices, estas adoptan obligatoriamente la conformación de hélice tipo A (con pucker C3’-endo)

¿Cómo es el estado de catenaridad del RNA y de qué forma puede generar segmentos bicatenarios?
Es normalmente monocatenario
La formación de regiones en doble hélice se produce mediante una única cadena que se dobla sobre sí misma de forma antiparalela (apareamiento intracatenario local), y no de forma completa a lo largo de toda la molécula
¿Por qué los polímeros biológicos de RNA se enlazan mediante puentes fosfodiéster 5' → 3’ y no a través del hidroxilo 2’-OH?
En el DNA es físicamente imposible formar enlaces 2' → 5' o 5' → 2' porque el carbono 2' de la desoxirribosa carece de grupo -OH
Para que el RNA y el DNA puedan reconocerse, hibridar e interaccionar de forma equivalente y sencilla (especialmente durante la transcripción y el emparejamiento), deben compartir la misma arquitectura química y espacial de esqueleto
Por tanto, los enlaces del RNA se construyen 5' → 3' para que el RNA funcione como una molécula «copia» informativa compatible con el molde de DNA; si el RNA informativo hubiera evolucionado con enlaces 5' → 2', no podría haber existido el DNA con la estructura que conocemos

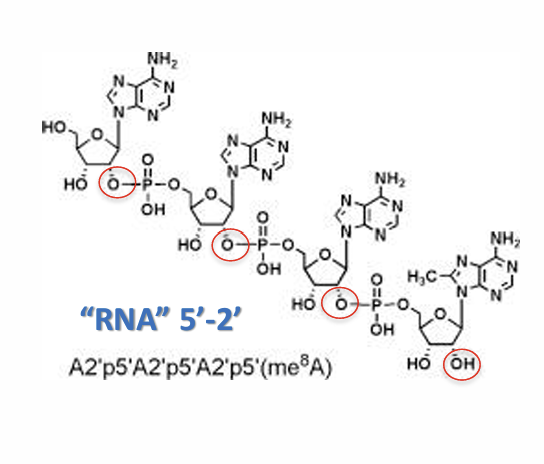
¿Qué es el "RNA 5' → 2’", qué propiedades de apareamiento tiene y cuál es su estabilidad relativa?
Son oligorribonucleótidos atípicos unidos mediante enlaces fosfodiéster 5' → 2'
Capacidad de apareamiento: Es capaz de aparearse tanto consigo mismo como con hebras convencionales de RNA 5' → 3' (o 3' → 5')
Estabilidad: En ambos casos forma dúplex con una estabilidad termodinámica menor que los formados exclusivamente por enlaces canónicos 5' → 3'
Función biológica: No es una molécula informativa, sino que opera como molécula de señalización / segundo mensajero
¿Qué tipo de conformación en doble hélice adoptan las moléculas de RNA (incluso en los tramos más cortos) y por qué les resulta imposible formar una hélice tipo B?
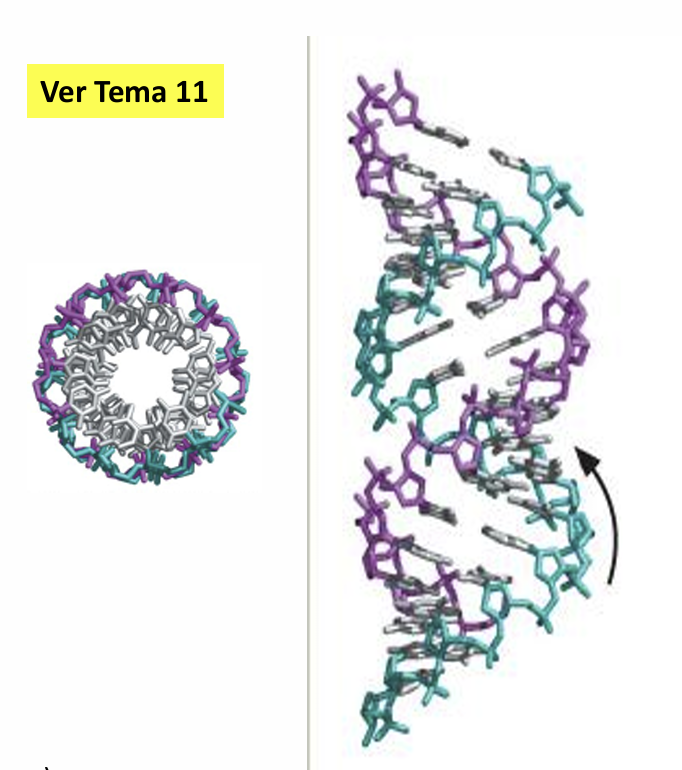
Conformación: Todas las hélices de RNA, por cortas que sean, son obligatoriamente del tipo A
Imposibilidad de la hélice B: La ribosa posee un grupo hidroxilo en la posición 2' (2'-OH) que no existe en el DNA. Si se forzara una geometría tipo B, el átomo de oxígeno del 2'-OH sufriría un contacto estérico desfavorable con cuatro átomos del fosfato, el azúcar y la base nitrogenada adyacente
En cambio, en la conformación de tipo A, el grupo 2'-OH sobresale hacia la superficie externa de la hélice, eliminando estos choques desfavorables

¿En qué condiciones se observa la estructura de tipo A en ácidos nucleicos además del RNA dúplex?
Durante estados de deshidratación del DNA
En híbridos DNA-RNA
¿Cómo es la disposición e inclinación de los pares de bases en la hélice tipo A y qué función tiene respecto al esqueleto de azúcares?
En el DNA/RNA tipo A, los pares de bases no se encuentran perpendiculares al eje de la hélice (a diferencia de la hélice tipo B)
Presentan una inclinación marcada, la cual permite alojar con holgura geométrica al átomo de oxígeno del 2'-OH que porta la ribosa
¿Cuáles son los parámetros helicoidales cuantitativos (distancia entre pares de bases, pares por vuelta y longitud de vuelta) de la doble hélice de RNA tipo A?
Distancia entre pares de bases contiguos: Los pares están más juntos, separados por 2.3 Å (o 0.26 nm, frente a los 2.56 Å reflejados en los diagramas cristalográficos)
Pares de bases por vuelta: Contiene 11 pares de bases por vuelta.
Longitud o paso de vuelta de hélice: Mide 25 Å a 28.2 Å (o 2.8 nm), en comparación con los 34 Å (3.5 nm) típicos del DNA en forma B
¿Cómo son las dimensiones y la accesibilidad de los surcos en la doble hélice de RNA tipo A en comparación con la forma B?
Los surcos no se corresponden con su nombre habitual (definido de forma relativa para el DNA B):
Tienen anchuras bastante parecidas
El surco menor es más grande / amplio
El surco mayor es estrecho, profundo y mucho menos accesible estéricamente
¿Por qué las dobles hélices de RNA suelen ser cortas y qué estructuras secundarias complejas se generan a partir de una monocadena?
El RNA suele ser monocatenario y genera hélices plegándose sobre sí mismo (hélices intracatenarias); al ser difícil encontrar secuencias largas con complementariedad exacta, los tramos helicoidales suelen ser de apenas unos pocos nucleótidos
Al no ser la complementariedad de bases perfecta, se alternan tramos helicoidales apareados con zonas desapareadas, originando:
Horquillas (hairpin loops, formadas en secuencias palindrómicas que se autoaparean sobre un tallo)
Bucles o lazos (loops o lazos interiores)
Salientes o protuberancias laterales (bulges o bulge loops)
Burbujas (bubbles)
Regiones de hebra simple

¿Qué es el apareamiento G=U tipo Wobble, por qué es común en el RNA y dónde se localiza funcionalmente?
Es un apareamiento no canónico (distinto a Watson y Crick clásicos) entre una guanina y un uracilo
Por qué es posible: Por la corta longitud de las hélices de RNA y porque encaja bastante bien dentro de la geometría espaciosa de una hélice tipo A
Energética y estabilidad: Aunque su estabilidad es menor que la de un par canónico G-C, al ser una monocadena resulta más favorable termodinámicamente aparear mediante enlaces no canónicos menos estables que dejar las bases sin emparejar. Su energía libre es prácticamente neutra (ΔG ≈ 0), ayudando a disminuir la energía libre global
Localización biológica: Frecuente en las interacciones codón-anticodón de los tRNA y en los rRNA
¿Además de G=U, qué otros tipos de apareamientos alternativos pueden darse en el RNA?
Se pueden presentar apareamientos con bases anómalas / modificadas
¿De qué depende la estabilidad de la conformación total de una cadena de RNA y qué criterio termodinámico define la estructura más favorable?
Depende de la suma de las energías individuales (Δ) de cada tipo de par de bases apilado, lazo, protuberancia o desapareamiento presente en la cadena
Cuanto más negativo sea el ΔGtotal final, más favorable y estable será la estructura secundaria planteada

¿Por qué los valores de ΔG para el emparejamiento entre pares de bases contiguos (dinucleótidos apilados) varían según la secuencia y no solo por el número de puentes de hidrógeno?
Porque la energía libre de apareamiento y apilamiento integra una suma de factores biofísicos:
Fuerzas electrostáticas
Polarización
Fuerzas de dispersión y apilamiento aromático de bases (base stacking)
Por tanto, dependen intrínsecamente de la naturaleza de las bases implicadas y de la secuencia exacta, no exclusivamente del recuento numérico de puentes de hidrógeno
¿Cómo contribuyen termodinámicamente los desapareamientos (lazos interiores frente a protuberancias/salientes) y bajo qué condición pueden formarse en la estructura?
Ambos son energéticamente positivos (ΔG > 0) y, por tanto, desfavorables de forma aislada
La energía de los desapareamientos interiores (interior loops) es MENOR (menos desfavorable) que la de las protuberancias o salientes (bulges)
Motivo: Las protuberancias generan una mayor distorsión helicoidal en la hebra para permitir que las bases de arriba y abajo sigan apareadas
Condición de formación: Se pueden formar siempre que sus costes desfavorables (ΔG > 0) queden compensados por tramos contiguos de apareamientos favorables, logrando que el balance neto sea negativo (ΔGtotal < 0)
¿Qué es un "pozo energético" cinético en el plegamiento del RNA y cómo puede alterar la estructura predominante frente a la predicción termodinámica ideal?
Por termodinámica pura, si existen dos conformaciones con ΔG = -35 kJ/mol y ΔG = -37 kJ/mol, debería predominar la más negativa (-37 kJ/mol)
Sin embargo, si la molécula adquiere la conformación de -35 kJ/mol y la energía de activación para transicionar a la de 37 kJ/mol es muy alta, la molécula queda "atrapada" cinéticamente en un pozo energético
En consecuencia, la estructura con mayor probabilidad de permanecer formada será la primera (la metaestable de -35 kJ/mol)
¿Cómo se estudian y validan las estructuras secundarias de RNA mediante abordajes in silico, in vitro e in vivo?
Abordaje in silico: Se emplean algoritmos y programas bioinformáticos que predicen el plegamiento secundario buscando mínimos de energía libre globales y locales
Abordaje in vitro: Se confirman experimentalmente en el laboratorio mediante tests de reactividad química o enzimática con bases no apareadas ("libres"), identificando qué residuos no forman parte de dobles hélices
Abordaje in vivo: La situación cambia significativamente respecto al tubo de ensayo, ya que en la célula la estabilización final de la estructura secundaria está fuertemente modulada por las interacciones con proteínas de unión a RNA (RBPs)
¿Cómo se organizan y clasifican las estructuras terciarias del RNA frente a la doble hélice A convencional, y cuál es su grado de regularidad?
El RNA adopta estructuras espaciales mucho más complejas que la simple doble hélice A, clasificándose en «motivos estructurales» de forma análoga a las proteínas
Estos motivos no son regulares: no toda la arquitectura del RNA tiene la misma conformación, sino que integran estructuras supersecundarias formadas entre distintos tramos de doble hélice o entre dobles hélices y zonas desapareadas
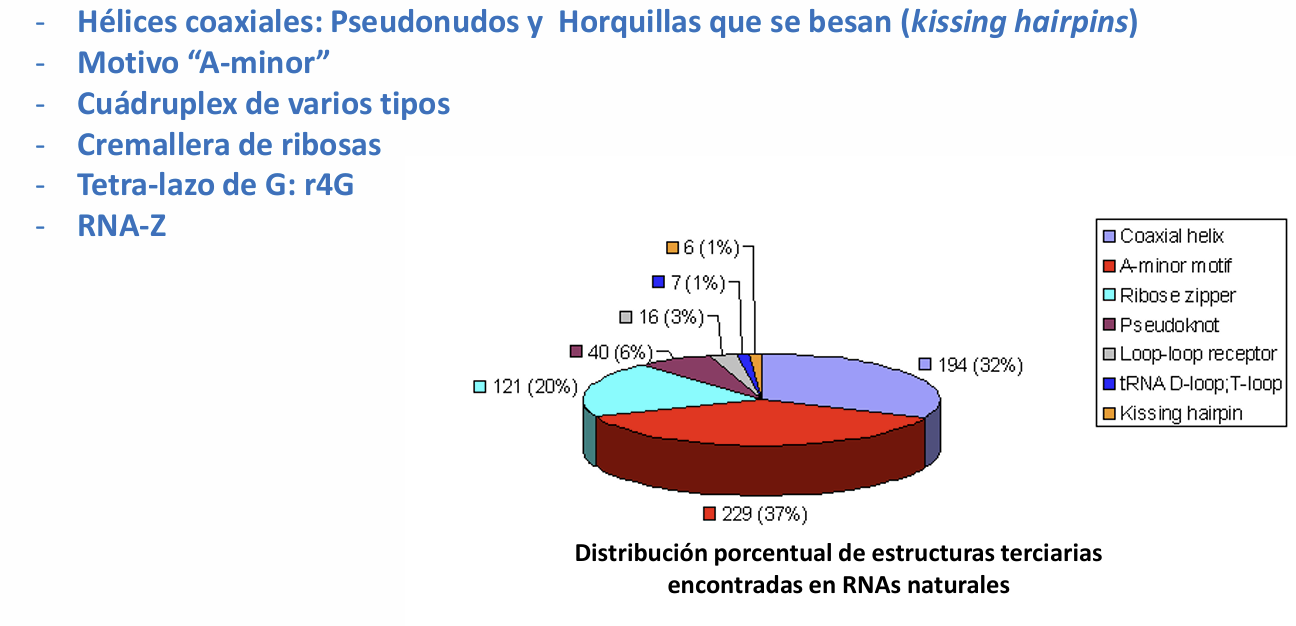
Entre los motivos principales destacan: hélices coaxiales (pseudonudos y kissing hairpins / hélices que se besan), motivo «A-minor», cremallera de ribosas (ribose zipper), cuádruplex de varios tipos (incluido tetra-lazo de G: r4G), receptores lazo-lazo (loop-loop receptor), interacciones tRNA D-loop / T-loop y RNA-Z
¿Qué es una hélice coaxial (coaxial helix), cómo se origina y qué fuerzas físico-químicas la estabilizan?
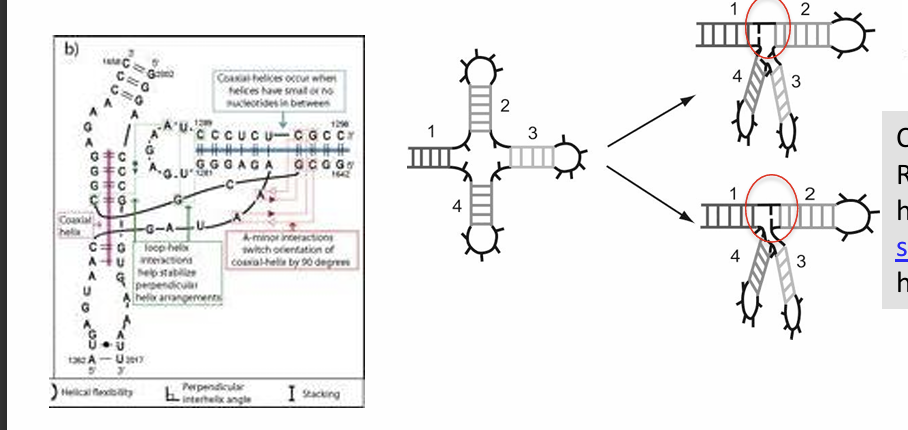
Son dos hélices que parecen axiales pero entre las cuales no hay continuidad covalente directa en la cadena
Se originan cuando dos dúplex de RNA se disponen extremo con extremo formando una hélice contigua continua en el espacio
Su estabilización depende de:
Un mayor número de puentes de hidrógeno formados
El apilamiento de bases en la interfase (base stacking / efecto hidrofóbico) entre ambos dúplex terminales contiguos

¿Cómo se organizan las hélices coaxiales en la estructura tridimensional del tRNA?
En su estructura secundaria plana (hoja de trébol), el tRNA contiene 4 hélices A (brazos donde aparean las bases)
Al plegarse en su estructura terciaria (forma de «L»), estas 4 hélices se agrupan en 2 pares de hélices coaxiales orientadas en dos ejes perpendiculares:
Un eje continuo formado por el brazo T (T arm) y el brazo aceptor (Acceptor stem)
Otro eje continuo formado por el brazo D (D arm) y el brazo del anticodón (Anticodon arm)
Interacciones tipo A-minor ayudan a estabilizar en un ángulo de 90º la disposición perpendicular entre ambos pares de hélices coaxiales
¿Qué son los «pseudonudos» y cuál es su realidad topológica?
Un «nudo» verdadero es un enlace topológico cerrado irreducible
En el pseudonudo no existe un nudo real ni un entrelazamiento topológico: si se «estiraran» los extremos 5' y 3' de la cadena de RNA, se romperían los puentes de hidrógeno y la molécula se extendería como una estructura lineal continua simple
Reciben este nombre porque el camino que sigue la hebra genera hélices coaxiales contiguas cuya hebra conectora pasa por fuera asemejando una ligadura o atadura
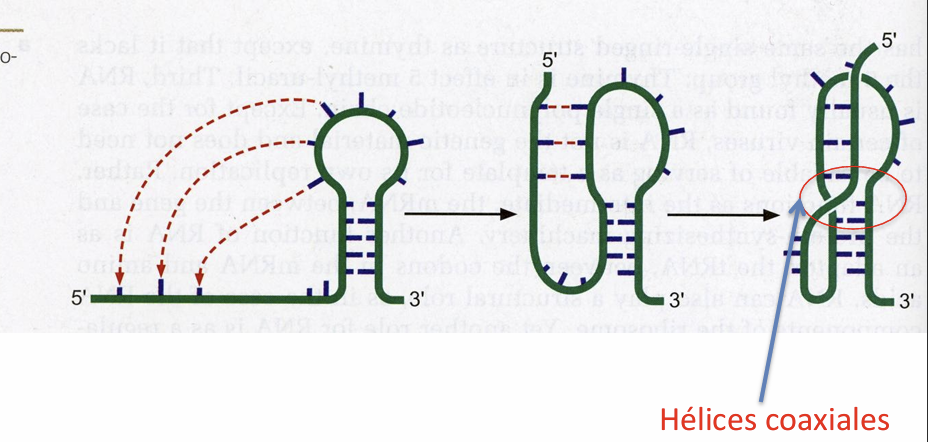
¿Cómo se forma estructuralmente un pseudonudo clásico y qué tipos de interacciones químicas lo estabilizan?
Se produce a partir de una secuencia que contiene una doble hélice / horquilla seguida de un tramo no contiguo desapareado
La región de bases desapareadas se pliega y establece apareamientos por puentes de hidrógeno a distancia con las bases expuestas del bucle de la horquilla
Se estabiliza mediante apareamientos canónicos Watson-Crick (W-C), apareamientos no canónicos G=U y el apilamiento de bases (stacking) que alinea los dos tallos en hélices coaxiales continuas

¿Qué condiciones termodinámicas y conformacionales rigen la formación de los pseudonudos?
Se forman únicamente si el estado plegado final es termodinámicamente más estable que la horquilla aislada sin aparear
Aunque exigen el desapareamiento previo de ciertas bases, estas pasan a quedar empaquetadas en el interior dentro de un entorno hidrofóbico protector, anulando el impedimento estérico/termodinámico
Tienen como consecuencia la formación de bucles (loops) que acercan regiones muy distantes de la cadena lineal
La deformación y torsión que sufre el esqueleto no representa un impedimento para su formación, permitiendo generar un repertorio muy amplio de arquitecturas complejas
¿Qué son las «hélices que se besan» (kissing helices o kissing hairpins) y cómo se produce su interacción?
Ocurren cuando dos horquillas independientes se encuentran y se aparean entre sí
Ubicación molecular: Se pueden dar entre dos moléculas distintas (intermolecular) o en los extremos de una misma molécula monocatenaria plegada (intramolecular)
Mecanismo: Las horquillas se aproximan por la zona de sus bucles (loops), donde las bases están desapareadas. Si existe complementariedad de secuencia entre ambos lazos, forman puentes de hidrógeno y se ensambla un nuevo tramo de hélice en la interfase
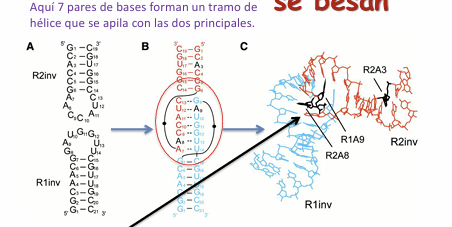
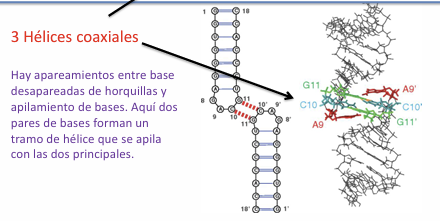
¿Cómo se organizan espacial y termodinámicamente las hélices que se besan y cuántas hélices coaxiales se generan?
El nuevo tramo formado por el apareamiento de los lazos se apila coaxialmente en continuidad con los tallos de las dos horquillas originales
Como resultado del apilamiento continuo se forma un conjunto integrado por 3 hélices coaxiales
Estabilidad termodinámica: La formación de puentes de hidrógeno adicionales y la maximización de las fuerzas de apilamiento aromático de bases (base stacking) disminuyen la energía libre (ΔG), convirtiéndolas en estructuras altamente estables
¿Por qué el RNA presenta mayor versatilidad estructural que el DNA y qué tipo de interacciones atípicas permite esta propiedad a nivel de bases nitrogenadas?
El RNA tiene mayor versatilidad estructural porque es monocatenario y puede plegarse sobre sí mismo para interaccionar tridimensionalmente con sus propias bases
Esta libertad conformacional le permite generar una amplia variedad de motivos estructurales donde se producen apareamientos múltiples entre más de dos nucleótidos (tríos y cuartetos de bases)
¿Cuáles son los seis motivos estructurales basados en apareamientos múltiples y empaquetamiento terciario mostrados en las láminas?
Triples hélices
Cuádruplex con apareamientos Hoogsteen
Cuádruplex variado
Motivo A-minor (A-minor motif)
Cremallera de ribosa (Ribose zipper)
Tetra-lazo de G: rG4

¿A través de qué surco se forman las triples hélices de RNA y qué condicionamiento estérico les impone la geometría helicoidal?
Las triples hélices se forman apareando una tercera hebra/base a través del surco mayor
Dado que los dúplex de RNA adoptan obligatoriamente la conformación de hélice tipo A, su surco mayor es estrecho, profundo y menos accesible estéricamente
Por ello, el esqueleto del RNA tiene que deformarse considerablemente para poder acomodar la tercera hebra y adoptar estas estructuras
¿Entre qué tipo de bases nitrogenadas se forma el «cuádruplex con apareamientos Hoogsteen» y en qué se diferencia del «cuádruplex variado»?
El cuádruplex con apareamientos Hoogsteen se forma exclusivamente entre purinas
El cuádruplex variado incluye en su cuarteto combinaciones heterogéneas de bases donde también participan pirimidinas u otros patrones de enlace alternativos
¿Qué es el motivo A-minor, a través de qué surco interacciona y con qué elementos de la hélice de RNA establece enlaces?
Es la interacción de una adenina (o en ocasiones otra base) que se inserta por el surco menor de un dúplex de RNA tipo A con un par canónico GC y con el grupo 2’-OH de la ribosa
Es una interacción extraordinariamente frecuente en RNA porque el surco menor en la hélice tipo A es mucho más ancho y plano/superficial que en el DNA B, permitiendo un acceso estérico óptimo para la adenina

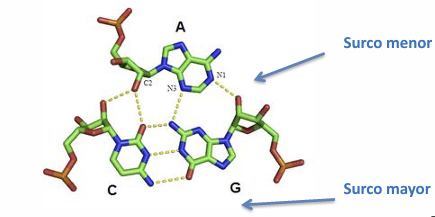
¿Cuáles son las características estructurales, enlaces implicados y fuerza relativa de la Interacción A-minor tipo I?
Frecuencia y estabilidad: Son las más comunes y más fuertes de todos los motivos A-minor
Mecanismo químico: Involucran numerosos puentes de hidrógeno: la adenina entrante forma 2 puentes de hidrógeno directos con el par de bases y su ribosa aporta otros 2 puentes de hidrógeno
Topología: La adenina entrante queda profundamente enterrada (buried) en el surco menor del dúplex receptor

¿Qué grupos químicos participan específicamente en la Interacción A-minor tipo II y cómo es su fuerza respecto al tipo I?
Grupos implicados: Involucra al grupo 2’-OH y al nitrógeno 3 (N3) de la adenosina entrante (con una distancia intermolecular de enlace de 2.75 Å reflejada en la estructura cristalográfica)
Interacción diana: La adenosina interacciona directamente con el grupo 2'-OH de la citosina del par en el surco menor
Fuerza relativa: La fuerza de estabilización de la interacción tipo II es comparable a la del tipo I

¿En qué macromoléculas y sistemas celulares está presente el motivo A-minor y cuál es su función en la fidelidad de la traducción?
Localización biológica: Es el motivo más abundante en el rRNA ribosómico y está ampliamente presente en los intrones de tipo II (autoenlazantes)
Discriminación codón-anticodón:
El rRNA del ribosoma utiliza residuos específicos de adenina para monitorizar por el surco menor la formación del triplete codón-anticodón entre el mRNA y el tRNA entrante
Apareamiento correcto: El apareamiento canónico adopta una conformación de mini hélice exacta que permite la inserción estricta de las adeninas del rRNA por el surco menor, consolidando el enlace
Apareamiento incorrecto: Provoca una alteración en la geometría de la estructura secundaria que impide físicamente la entrada de las adeninas del rRNA por el surco menor, rechazando el tRNA erróneo

¿Qué es la «cremallera de ribosa» (ribose zipper) y qué enlaces químicos la constituyen?
Es un motivo terciario donde se producen puentes de hidrógeno no convencionales entre los azúcares (ribosas) de dos esqueletos fosfodiéster contiguos
Se forma gracias a la presencia del grupo hidroxilo en el carbono 2’ (2’-OH) de la ribofuranosa, el cual actúa simultáneamente como donador y aceptor de puentes de hidrógeno interhebra
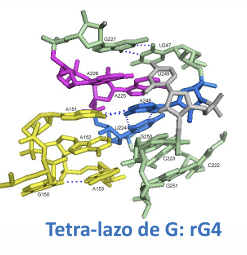
¿Qué es el «tetra-lazo de G (rG4)» en la arquitectura terciaria del RNA?
Es una estructura cuádruplex terciaria compacta formada por el apilamiento y la coordinación de guaninas dispuestas en conformación de lazo/cuarteto cerrado en el RNA (RNA G-quadruplex / rG4)
Estabiliza plegamientos globulares complejos y uniones multifilares mediante interacciones intramoleculares entre cuatro dominios de la misma o diferentes hebras
¿En qué etapas del metabolismo celular de los ácidos nucleicos se forman híbridos DNA-RNA?
Durante la replicación
Durante la transcripción
Durante la retrotranscripción de retrovirus
¿Qué conformación helicoidal adoptan los híbridos DNA-RNA y qué han revelado los estudios cristalográficos?
Adoptan una conformación intermedia entre el DNA-A y el DNA-B canónicos
Los estudios cristalográficos demuestran que es una forma intermedia real en la cual las bases enfrentadas no están del todo apareadas de manera canónica estricta

¿Cómo se organizan los híbridos DNA-RNA dentro de la burbuja de transcripción?
Se forma un híbrido temporal entre el RNA recién sintetizado por la RNA polimerasa y la hebra molde de DNA recién copiada
La doble hélice corta de DNA-RNA abarca una longitud de 8 a 10 pares de bases (pb)
Esta estructura queda alojada dentro del canal interno de la RNA polimerasa
A medida que la enzima avanza y se desplaza, la cadena naciente de RNA se desnaturaliza del DNA y va "colgando" hacia el exterior

¿Qué es un lazo R (R-loop), en qué secuencias es más frecuente y qué consecuencias patológicas genera?
Definición: Estructura anómala que surge cuando el RNA transcrito permanece hibridado con el DNA en tramos largos fuera de la RNA polimerasa, dejando la otra hebra de DNA expuesta como cadena simple desapareada
Secuencia preferente: Son notablemente más frecuentes en regiones ricas en Guanina y Citosina (G+C)
Consecuencias: Bloquean la transcripción, pueden provocar la rotura del DNA, e inducen recombinación ilegítima e inestabilidad genómica severa

¿Cómo se compara la capacidad tridimensional y catalítica del RNA respecto a las proteínas?
El RNA tiene capacidad espacial para adoptar estructuras tridimensionales tan variadas como las de las proteínas
Sin embargo, su capacidad catalítica global es menor porque cuenta con un repertorio monomérico mucho más restringido: únicamente 4 nucleótidos frente a los 20 aminoácidos proteicos

Según la tabla general, ¿cuáles son las características (abundancia, tamaño y localización) de los RNAs clásicos y minoritarios?
tRNA: 15-20%; 75-90 nt; Procariotas y eucariotas (citoplasma)
rRNA: 75-80%; 120 nt (5S) - 5000 nt (28S); Procariotas y eucariotas (citoplasma)
mRNA: 5%; 600-3000 nt; Procariotas y eucariotas (citoplasma)
snRNA: Minoritario; 58-220 nt; Eucariotas (núcleo)
snoRNA: Minoritario; 58-220 nt; Eucariotas (nucléolo)
mtRNA: Minoritario; 600-2.000 nt; Eucariotas (mitocondrial)
ncRNAs reguladores: Minoritarios en masa pero con la mayor diversidad; 20-1.000 nt; Eucariotas (núcleo y citoplasma)
Regla estructural de la catenaridad: La inmensa mayoría de los RNAs celulares son monocatenarios con abundante estructura secundaria por autoapareamientos, con la única excepción de los mRNAs

¿Qué características de longitud y función definen a los ncRNAs reguladores pequeños, asociados a promotores y circulares? (los ncRNAs reguladores pequeños pueden formar dobles hélices transitorias)
miRNA (microRNA): 22-23 nt. Silenciamiento génico post-transcripcional.
piRNA (Piwi-interacting RNA): 26-30 nt. Desarrollo de células germinales y defensa frente a transposones.
siRNA (Small interfering RNA): 21-22 nt. Regulación génica, control de transposones y defensa antiviral
PARs (Promoter-associated RNAs): 20-200 nt. RNAs cortos y largos que solapan con promotores para inhibir o aumentar la transcripción de genes cercanos.
eRNA (Enhancer-associated RNAs): Desde varios cientos de nucleótidos hasta 1 kb. Modulación y activación transcripcional dependiente de potenciadores génicos
circRNA (Circular RNA): Se originan por splicing de intrones; actúan como "esponjas" de microRNAs (miRNA) y operan como reguladores post-transcripcionales.
ciRNA (Circular intronic RNA): Proceden de intrones de genes codificantes de proteínas; se asocian con la RNA Polimerasa II (Pol II) para activar activamente la transcripción.
lncRNA (Long noncoding RNAs): >200 nt.Transcritos por RNA Pol II, llevan caperuza en 5' (5'cap) y cola poli(A). Regulados durante el desarrollo, presentan una expresión basal baja y son estrictamente específicos de tipo celular

¿Por qué el mRNA carece prácticamente de estructura secundaria a lo largo de su secuencia funcional?
Porque la presencia de estructuras secundarias es incompatible con su función biológica: debe permitir que los ribosomas lean linealmente el orden de codones para sintetizar la cadena peptídica
Cualquier plegamiento intracatenario en la región codificante bloquearía el avance ribosómico y paralizaría la traducción
Solo presenta una pequeña curvatura dextrógira pasiva que facilita un leve apilamiento de bases sin interferir con la lectura del ribosoma
Las únicas zonas susceptibles de albergar mayor riqueza estructural son aquellas regiones que no interactúan directamente con el canal del ribosoma (como extremos no traducidos)
¿Por qué el mRNA representa un porcentaje tan bajo (5%) del RNA celular a pesar de transcribirse activamente?
Debido a su rápida tasa de degradación por ribonucleasas y exonucleasas celulares
El balance dinámico entre una alta tasa de síntesis y una degradación acelerada mantiene la concentración celular de mRNA en niveles bajos y controlados
Finalidad biológica: Permite un control estricto de la expresión génica, evitando que los mensajeros se acumulen de forma crónica en el citoplasma y los ribosomas continúen fabricando proteínas sin regulación temporal
¿Cuáles son las tres modificaciones cotranscripcionales del pre-mRNA eucariota y qué función desempeña cada una?
1. Adición del CAP m7Gen el extremo 5':
Inserción de una caperuza de 7-metilguanosina mediante un enlace trifosfato atípico 5' → 5'
Función: Protege al transcrito frente a la degradación inmediata por ribonucleasas celulares
2. Poliadenilación en el extremo 3':
Adición enzimática de una cola de poli(A) en el sitio específico de corte tras finalizar la transcripción
Función: Regula la estabilidad intracelular del transcrito y condiciona su vida media
3. Splicing (corte y empalme):
Eliminación precisa de las secuencias no codificantes intercaladas (intrones, definidos por los sitios 5' splice site y 3' splice site) y unión correlativa de las secuencias codificantes (exones)
Requisito: Debe completarse antes de que el mRNA maduro sea exportado del núcleo al citoplasma

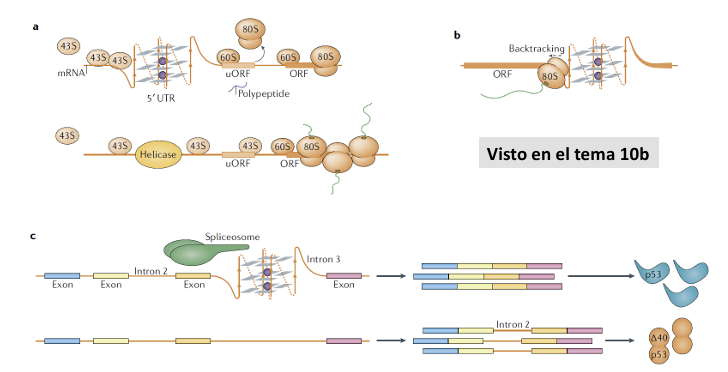
¿Qué es la estructura de cuádruplex de guaninas (RNA-G / rG4) en el mRNA in vivo y qué funciones reguladoras ejerce?
Es una estructura secundaria que forma el mRNA cuando varias guaninas se agrupan en cuartetos apilados, creando una especie de estructura compacta que puede regular cómo se utiliza ese mRNA
Sus principales funciones son:
Estabilidad: puede modificar cuánto tiempo permanece el mRNA intacto antes de degradarse
Splicing: puede influir en qué partes del mRNA se eliminan o se conservan al madurarlo.
Traducción: puede dificultar el avance del ribosoma y regular la síntesis de proteínas.
En la región 5'UTR, puede dificultar el inicio de la traducción de la proteína principal y favorecer el uso de otros puntos de inicio, como los de los uORF
Hélices dependientes de ATP son requeridas para resolverlos y facilitar la elongación
En la región codificante, pueden bloquear o ralentizar el ribosoma y, en ciertos contextos, favorecer la producción de péptidos alternativos
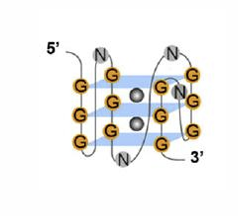
¿Qué hallazgo específico se ha reportado sobre las estructuras rG4 en mRNAs de plantas (Arabidopsis y arroz)?
Mediante análisis químicos estructurales de RNA in vitro e in vivo, se descubrió que cientos de estructuras de cuádruplex de RNA-G se encuentran fuertemente plegadas in vivo en células de Arabidopsis thaliana y arroz (Oryza sativa)
Los análisis genéticos y bioquímicos evidencian que el plegamiento de estos rG4 se encarga de regular la traducción y modular directamente el crecimiento global de la planta
¿Cuáles son las características generales del tRNA (tamaño, estructura general, función y conservación)?
Tamaño: Moléculas pequeñas de aproximadamente 80 nucleótidos
Estructura: Todos los tRNAs presentan una estructura casi idéntica con abundancia de estructura secundaria y terciaria. A pesar de ser monocatenarios, la mayor parte de la cadena se encuentra apareada formando dobles hélices diversas (canónicas y no canónicas) que terminan en horquillas
Función biológica: Transporte de aminoácidos hasta los ribosomas durante la síntesis de proteínas
Estudio estructural: Cristalicen muy bien, lo que ha permitido dilucidar su conformación tridimensional con gran detalle
En teoría, ¿cuántos tRNAs deberían existir según el código genético y cuántos existen en realidad en la célula?
En principio se esperaría 1 tRNA para cada codón: 64 opciones en total o 61 tRNAs descontando los 3 codones de parada
En la realidad celular hay menos de 61 tRNAs
Motivo: La capacidad de establecer apareamientos no canónicos en la posición oscilante (wobble) les confiere versatilidad, permitiendo que un mismo anticodón reconozca varios codones (2 o 3 distintos)
¿Cómo se denomina y cómo está configurada la estructura secundaria bidimensional (2D) del tRNA?
Se denomina modelo en «hoja de trébol» (cloverleaf)
Representada sobre el papel es prácticamente invariable en todos los tRNAs
Está formada por la alternancia de brazos (zonas de doble hélice tipo A) y asas/lazos (zonas monocatenarias sin aparear que cierran en horquilla)

¿Cuáles son las características del Brazo aceptor (Amino acid arm / stem)?
Se forma por la unión de los dos extremos de la molécula (5' y 3') apareados hasta el 4º o 5º último nucleótido
Contiene 7 pares de bases (pb) apareados mediante enlaces Watson-Crick y Wobble
Extremo 5': Suele ser pG (guanosina monofosfato) en la mayoría de los tRNAs
Extremo 3': Termina de forma universal e invariable en la secuencia CCA-OH monocatenaria
Función: El grupo -OH en 3' terminal es el sitio aceptor donde se une covalentemente el grupo carboxilo (-COOH) del aminoácido mediante un enlace éster

¿Qué características tienen el Brazo T (TΨC o asa I) y el Brazo D (DHU o asa III)?
Brazo T:
Formado por un tallo de 5 pb apareados y un lazo de aproximadamente 7 nucleótidos desapareados
Contiene una secuencia muy conservada con dos ribonucleósidos infrecuentes: ribotimidina (T) y pseudouridina (Ψ)
Brazo D:
Formado por un tallo de 3-4 pb
Contiene la base infrecuente dihidrouridina (UH2 o D)
Es el brazo más grande al presentar hasta 10 nucleótidos desapareados en su asa
Función: Participa activamente en la unión del aminoacil-tRNA al ribosoma

¿Qué características definen al Brazo del anticodón (asa II)?
Situado en el centro del recorrido de la molécula; contiene un tallo de 5 pb
Alberga la secuencia triplete del anticodón en su asa, la cual se aparea de manera complementaria y específica con el triplete del mRNA (codón)
La presencia de un nucleósido modificado adyacente al anticodón es un rasgo universal

¿Qué es el Brazo variable (brazo menor o asa IV) y cómo divide a los tRNAs en dos clases funcionales?
Es un brazo intermedio situado entre el asa II y el asa I. No siempre está presente de forma desarrollada y su tamaño es variable, sin alterar la funcionalidad del tRNA
Su presencia/longitud clasifica los tRNAs en dos grupos:
tRNAs de Clase I (75% de los tRNAs): Brazo corto que contiene entre 3 y 5 nucleótidos
tRNAs de Clase II (25% de los tRNAs): Brazo alargado con una longitud de 13 a 21 nucleótidos apareados, que incluye un lazo terminal de unos 5 nucleótidos

¿Cómo y cuándo se originan las bases modificadas del tRNA y cuáles son sus funciones principales?
Se producen mediante modificaciones post-transcripcionales catalizadas enzimáticamente una vez que la cadena de RNA ya ha sido sintetizada
Funciones:
Son determinantes clave para el reconocimiento específico del tRNA por su aminoacil-tRNA sintetasa correspondiente
Participan en apareamientos no canónicos que estabilizan la estructura terciaria tridimensional
Incrementan la estabilidad química del RNA, haciéndolo más resistente a la degradación
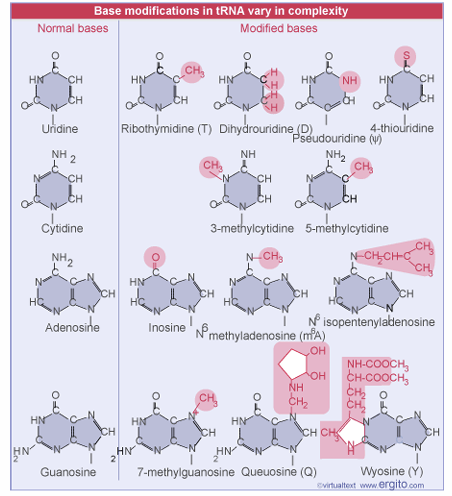

¿Cuál fue el descubrimiento del Premio Nobel de Medicina 2023 (Katalin Karikó y Drew Weissman) relativo a la pseudouridina en el desarrollo de vacunas de mRNA?
Obstáculo inicial: El ARNm sintético convencional exógeno introducido en mamíferos era inestable y provocaba una reacción inflamatoria masiva mediada por receptores celulares
Descubrimiento: La incorporación de pseudouridina (Ψ) o N1-metil-pseudouridina (N1-methyl-Ψ) en sustitución del uracilo natural evita el reconocimiento por sensores inmunes, eliminando la respuesta inflamatoria adversa sin alterar la fidelidad de la traducción
Mecanismo biológico: La pseudouridina conserva los átomos para formar los mismos puentes de hidrógeno con la adenina que el uracilo canónico, traduciéndose en proteínas exactamente igual
Aplicación: Base para las vacunas de ARNm contra la COVID-19 (vehiculizadas en nanopartículas lipídicas) y futuras terapias oncológicas y genéticas

¿Qué forma adopta el tRNA en 3 dimensiones y cómo se distribuyen sus extremos y brazos en el espacio?
En 3D no tiene forma de trébol plano, sino forma compacta y globular de "L" invertida (L-shaped structure)
En su visualización volumétrica parece que prácticamente todo el tRNA se encuentra en doble cadena
Disposición espacial:
Un brazo de la "L" contiene el extremo aceptor de aminoácidos (5’ y 3’-CCA) y el asa TΨC
El otro brazo de la "L", dispuesto perpendicularmente (90∘), proyecta el brazo D y deja el brazo del anticodón perfectamente accesible en el extremo opuesto para interaccionar con el ribosoma y el mRNA


¿Qué fuerzas fisicoquímicas y motivos estructurales estabilizan la arquitectura terciaria del tRNA?
Puentes de hidrógeno terciarios: Formación de hasta 40 puentes de hidrógeno adicionales entre bases de hélices distintas que no están enfrentadas en la secuencia lineal primaria (enlaces entre brazos distantes, p. ej., asas D y T)
Hélices coaxiales: Apilamiento de bases (base stacking) por efecto hidrofóbico en 2 pares de hélices coaxiales continuas perpendiculares
Triples hélices: Interacciones entre 3 cadenas/bases locales.
Apareamientos exóticos no canónicos: Favorecidos tridimensionalmente por la presencia de bases modificadas

¿Qué es la posición oscilante (Wobble position) y dónde se localiza en el anticodón y en el codón?
Es la base que posee cierta flexibilidad de movimiento conformacional permitiendo apareamientos no canónicos alternativos a las reglas estándar Watson-Crick
Se localiza en:
La 1a posición del anticodón del tRNA (leyendo en sentido estricto 5' → 3').
La 3a posición del codón del mRNA (leyendo en sentido 5’ → 3’)
Mientras que las posiciones 1 y 2 del codón exigen apareamientos estándar rígidos, el bamboleo ocurre únicamente en la tercera base del codón
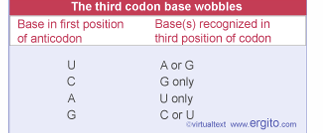
Según la tabla estandarizada del balanceo (wobble rules), ¿qué bases del codón (3' del mRNA) puede reconocer cada base en la primera posición del anticodón (5' del tRNA)?
Si en 5' del anticodón hay Citosina (C) → reconoce exclusivamente Guanina (G)
Si en 5' del anticodón hay Adenina (A) → reconoce exclusivamente Uracilo (U)
Si en 5' del anticodón hay Guanina (G) → reconoce Citosina (C) o Uracilo (U)
Si en 5' del anticodón hay Uracilo (U) → reconoce Adenina (A) o Guanina (G)
Si en 5' del anticodón hay Inosina (I) → reconoce Adenina (A), Uracilo (U) o Citosina (C) (las tres excepto G)

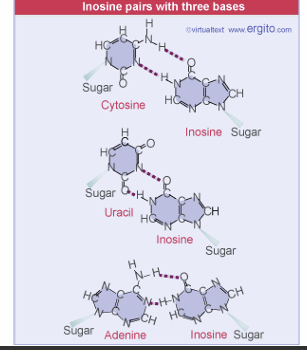
¿Por qué la base inusual Inosina (I) es el elemento de mayor promiscuidad oscilante y qué ventaja adaptativa confiere al tRNA?
La inosina deriva de la desaminación de la adenosina; en la posición oscilante puede formar puentes de hidrógeno estables indistintamente con A, U o C
Permite que un único tRNA reconozca tres codones sinónimos diferentes para el mismo aminoácido
¿Qué proporción de la masa de los ribosomas representa el rRNA y cuál es la naturaleza de su cadena?
Constituye el 65% de la masa de los ribosomas (el 35% restante son proteínas ribosómicas)
Son moléculas lineales monocatenarias muy grandes que presentan abundantes zonas de apareamiento intracatenario alternadas con zonas desapareadas (burbujas, lazos y horquillas)
¿Qué tamaños y tipos de rRNA se encuentran en células procariotas frente a células eucariotas?
Células procariotas (3 tamaños / tipos): 16S, 23S y 5S
Células eucariotas (4 tamaños / tipos): 18S, 5S, 5.8S y 28S
A diferencia del tRNA, ¿qué ocurre con la estructura del rRNA en disolución en ausencia de proteínas y cómo ha condicionado esto su estudio estructural?
Al contrario que el tRNA, en ausencia de proteínas el rRNA no tiene una estructura estable ni definida
Como consecuencia directa, no cristaliza de manera aislada
Por ello, descubrir su arquitectura real requirió el desarrollo de técnicas avanzadas de recreación de imagen posteriores (como criomicroscopía electrónica y difracción del ribosoma completo)
¿Cuál es la función biológica principal del rRNA dentro del ribosoma?
Facilitar la interacción coordinada entre el mRNA y el tRNA entre ellos y con el propio ribosoma
Interactuar con proteínas enzimáticas que posibilitan la catálisis de la formación de los enlaces peptídicos entre los aminoácidos durante la traducción
¿Mediante qué métodos experimentales y computacionales se han comprobado y validado las estructuras secundarias predichas del rRNA de E. coli?
Mediante técnicas químicas de reactividad con las bases nitrogenadas (mapeo químico de bases desapareadas).
Datos aportados por difracción de rayos X
Técnicas informáticas de modelado y recreación tridimensional de imagen
¿Cómo pasa el rRNA del mapa plano 2D a su conformación terciaria funcional en el espacio?
La representación bidimensional es un simple esquema funcional: en la realidad, el rRNA se compacta en 3 dimensiones adoptando una estructura globular densa
Este plegamiento globular constituye el andamiaje y componente principal del cuerpo del ribosoma
Alberga y estabiliza diversos motivos terciarios de plegamiento, como pseudonudos, hélices que se besan (kissing hairpins), hélices coaxiales y contactos a larga distancia entre nucleótidos alejados en la secuencia primaria

¿Por qué se define el ribosoma como una ribozima y qué implicación tiene esto en la estructura cuaternaria?
Porque la actividad catalítica de peptidil-transferasa recae de forma exclusiva sobre un RNA (el rRNA de la subunidad grande) y no sobre un centro activo proteico
Esto revela que las subunidades proteicas actúan como andamios accesorios que interaccionan con el rRNA en cada subunidad
La asociación coordinada entre el rRNA y las proteínas ribosómicas instaura un nivel superior de plegamiento y ensamblaje: la estructura cuaternaria
Desde el punto de vista evolutivo, ¿pudo existir un ribosoma ancestral compuesto únicamente por RNA y qué papel jugaron las proteínas en su evolución?
Sí: en el marco del «Mundo de RNA», los ribosomas primitivos habrían estado formados exclusivamente por moléculas catalíticas de RNA
A lo largo de la evolución, la asociación progresiva del rRNA con proteínas:
Aumentó drásticamente la eficacia y velocidad catalítica de la síntesis proteica
Como contrapartida, generó una dependencia obligada del rRNA respecto a las proteínas para estabilizar su plegamiento terciario y mantener su ensamblaje funcional maduro
¿Cuáles son las dos modificaciones post-transcripcionales más abundantes e importantes que sufre el rRNA?
La metilación de las ribosas (modificación del azúcar en el grupo 2'-OH del carbono C2: 2'-O-Me)
La formación de pseudouridinas / pseudouracilos (Ψ) a partir de uridinas normales
¿Altera la pseudouridina la capacidad de apareamiento con la adenina en el ribosoma o ante una lectura por codón?
No la altera: la pseudouridina es capaz de formar los mismos puentes de hidrógeno que el uracilo original
Por tanto, retiene intacta la capacidad estereoquímica de ser leída hipotéticamente de forma indistinguible frente a una adenina
¿Qué es una ribozima, qué paradigma biológico rompió su descubrimiento y qué ejemplos destacados existen?
Son moléculas de RNA con capacidad catalítica intrínseca, demostrando que no todas las enzimas celulares son proteínas.
Constituyen los centros catalíticos de enzimas fundamentales como la ribonucleasa P (RNasa P) y el ribosoma (actividad peptidil-transferasa)
Además, ciertos RNAs son capaces de autocatalizar su propio corte y empalme (splicing)
¿Cómo se interpreta evolutivamente la catálisis por RNA en el contexto del «Mundo de RNA» y por qué las proteínas sustituyeron a la mayoría de ribozimas?
La actividad catalítica del RNA se considera un residuo o reminiscencia evolutiva del papel que desempeñaron los RNAs en los orígenes de la vida
El RNA presenta estructuras complejas, gran diversidad de plegamiento y grupos funcionales reactivos capaces de catalizar reacciones químicas, destacando el grupo 2'-OH de la ribosa
Sin embargo, las ribozimas son menos eficaces catalíticamente que las enzimas proteicas.
Por ello, a lo largo de la evolución su función como catalizadores biológicos generales fue sustituida por las proteínas, que sustentan la gran mayoría de reacciones en la actualidad
¿Qué es la ribonucleasa P (RNasa P) bacteriana, cuál es su composición molecular cuantitativa y qué estructura adopta?
Es una ribozima ribonucleoproteica presente en bacterias capaz de procesar/degradar RNAs
Componente de RNA (subunidad catalítica):
1 RNA grande monocatenario codificado por el gen rnpB
Longitud de 377 nucleótidos y un peso molecular de 140 kDa
Se autoaparea en gran medida formando una estructura secundaria compleja y se pliega tridimensionalmente en estructura terciaria
Componente proteico:
1 proteína pequeña (proteína accesoria) codificada por el gen rnpA
Tamaño de 119 aminoácidos y un peso molecular de 14 kDa
Al asociarse las subunidades de RNA y proteína, el complejo adquiere un nivel de estructura cuaternaria

¿Cuál es la función biológica exacta de la RNasa P en la célula?
Lleva a cabo el procesado post-transcripcional de los tRNAs
Se encarga de cortar los transcritos primarios (precursores de tRNA) en el núcleo para dar lugar a los diferentes tRNAs maduros funcionales
¿Cómo demostró Sidney Altman en 1982 que la actividad catalítica de la RNasa P reside en el RNA y no en la proteína?
Sometió la holoenzima a digestiones selectivas:
Al tratar la enzima con proteasas, la actividad catalítica no se perdía
Al tratarla con ribonucleasas (RNAsas), la actividad catalítica desaparecía por completo
Conclusión: Demostró un cambio de paradigma histórico; el RNA monocatenario por sí mismo es catalíticamente eficiente (catalytically proficient in vitro) y capaz de reconocer el sitio de unión al sustrato sin necesidad obligatoria de la proteína, dejando de verse como un simple «pariente pobre del DNA»
¿Qué son los intrones y los exones, y qué es el proceso de splicing?
Intrones: Fragmentos de RNA no codificante que se encuentran intercalados entre los exones en los transcritos primarios
Exones: Regiones que sí son codificantes de secuencias proteicas funcionales
Splicing (corte y empalme): Proceso molecular mediante el cual los intrones son escindidos y eliminados del pre-RNA, uniendo consecutivamente los exones entre sí para producir un RNA maduro listo para ser traducido
¿Cuáles son las tres grandes clases de intrones en el proceso de splicing y cuáles de ellas se consideran ribozimas de autocorte y empalme?
1. Intrones de Grupo I: Ribozimas de autocorte y empalme
2. Intrones de Grupo II: Ribozimas de autocorte y empalme
3. Intrones nucleares: Dependientes de espliceosoma y ATP
Condición de ribozima: Los intrones de Grupo I y Grupo II son de autocorte y empalme (auto-procesamiento); no necesitan enzimas proteicas externas para su eliminación del RNA porque poseen actividad catalítica intrínseca. Aparecen en eucariotas y en los raros ejemplos descritos de intrones bacterianos

¿Dónde se localizan los intrones de Grupo I y cuál es su requerimiento de cofactor externo?
Distribución: Se encuentran en algunos genes nucleares, mitocondriales y de cloroplastos que codifican para rRNA, mRNA y tRNA
Cofactor: Requieren obligatoriamente un cofactor de guanina libre externo (puede ser GMP, GDP o GTP, o guanosina: pG-OH)
Topología: No forman estructuras en lazo (lariat) durante su escisión

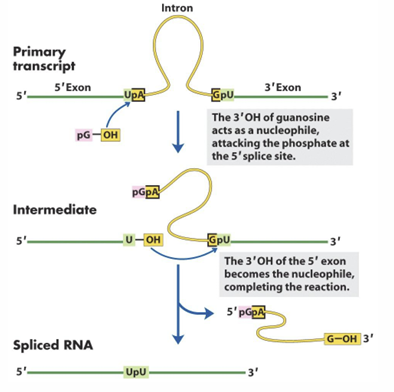
Explica paso a paso el mecanismo químico de transesterificación en los intrones de Grupo I:
1ª Transesterificación: El grupo 3'-OH del nucleótido o cofactor de guanosina externo (pG-OH) actúa como nucleófilo atacando el enlace fosfodiéster en el sitio de corte 5' (5' splice site, unión entre el 5'Exon y el intrón). Esto escinde el extremo 5' del intrón, liberando al 5'Exon con un extremo terminal 3'-OH libre (U-OH), mientras la guanosina queda unida covalentemente al extremo 5' del intrón (5' pGpA...)
2ª Transesterificación: El grupo 3'-OH libre del exón 5' (5'Exon) recién generado actúa como segundo nucleófilo y ataca el sitio de corte 3' (3' splice site) en el inicio del 3'Exon (...GpU)
Resultado: Los exones se unen covalentemente (UpU, spliced RNA) y el intrón se libera en forma lineal portando la guanosina en su extremo 5' y un extremo terminal 3'-OH (G-OH 3')
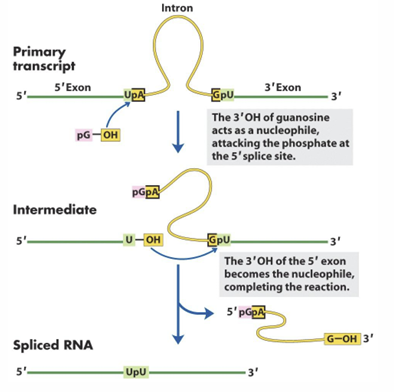

¿Dónde se localizan los intrones de Grupo II y por qué no necesitan un cofactor externo?
Distribución: Se encuentran en transcritos primarios de mRNA de mitocondrias y cloroplastos (así como en raros ejemplos bacterianos)
Independencia de cofactor externo: No requieren guanina ni nucleótidos libres porque utilizan un nucleófilo intrínseco: el grupo 2'-OH reactivo de un residuo específico de adenina perteneciente al propio intrón (sitio de ramificación)


Explica paso a paso el mecanismo químico de los intrones de Grupo II y cómo se origina el lazo (lariat):
1ª Transesterificación: El grupo 2'-OH de una adenina específica interna del intrón ataca como nucleófilo el fosfato del sitio de corte 5' (5' splice site, unión 5'Exon con el inicio del intrón). Al unirse covalentemente el extremo 5' del intrón con el carbono 2' de esta adenina, se cierra una conformación circular en lazo ramificada (lariat) mediante un enlace atípico 2',5'-fosfodiéster
2ª Transesterificación: El 3'-OH libre del 5' liberado ataca como nucleófilo el sitio de corte 3' (3' splice site, unión entre el intrón y el 3'Exon)
Resultado: Se empalman covalentemente los dos exones (5'Exon-3'Exon) y se libera el intrón completo en forma circular en lazo (lariat) con su extremo 3'-OH terminal


¿Cuáles son las características definitorias de los intrones nucleares de eucariotas frente a los de Grupo II?
Abundancia: Es el grupo más numeroso de intrones, presentes en la gran mayoría de los transcritos de mRNA nucleares de células eucarióticas
Similitud química: El mecanismo catalítico de transesterificación y la formación del intermediario en lazo (lariat) son idénticos a los del Grupo II
Diferencias esenciales:
No son ribozimas autónomas: no son de autocorte, sino que requieren de forma obligatoria la intervención de un complejo macromolecular multimérico muy numeroso de ribonucleoproteínas y RNAs pequeños nucleares llamado espliceosoma (spliceosome)
Requieren de forma indispensable el gasto directo de energía metabólica (gasto de ATP)

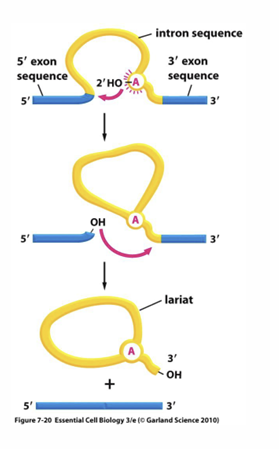
¿Cómo es la estructura química exacta de la ramificación en los lazos (lariats) formados en intrones de tipo II y nucleares eucariotas?
En el punto de ramificación, un único nucleótido de adenina posee simultáneamente tres enlaces fosfodiéster (Adenosine in the lariat structure has three phosphodiester bonds):
Un enlace fosfodiéster estándar 5' → 3' con el nucleótido anterior de la cadena lineal
Un enlace fosfodiéster estándar 3' → 5' con el nucleótido posterior de la cadena que continúa hacia el tallo del lazo
Un enlace fosfodiéster atípico 2' → 5' (2'-5' lariat linkage) formado entre su grupo hidroxilo del carbono 2' (2'-OH) y el extremo 5' inicial del intrón escindido

¿Qué características secundarias y terciarias comparten tanto los intrones de tipo I como los de tipo II?
Ambos tipos poseen una rica y organizada estructura secundaria y terciaria globular compleja
Su empaquetamiento funcional se consolida mediante apilamiento coaxial de dobles hélices continuas (coaxial stacking), lo que genera el bolsillo catalítico necesario para coordinar los sitios de corte sin requerir armazones proteicos

¿Cuáles son las características estructurales, tamaño, mecanismo químico y presencia biológica de la ribozima Cabeza de martillo (Hammerhead)?
Tamaño: Es el dominio con actividad catalítica más pequeño que se conoce (unos 40 nucleótidos)
Estructura: Formada por una unión de 3 hélices (Stem I, Stem II y Stem III) dispuestas alrededor de un lazo central que contiene un giro brusco (U-turn)
Centro activo: Incluye los nucleótidos de reconocimiento G12 y G8, y los residuos de corte C17 y C1.1 coordinando un ión metálico
Mecanismo: Similar al de los intrones, utiliza un grupo hidroxilo 2'-OH reactivo para promover el corte por transesterificación intramolecular
Distribución biológica: Presente en virus y en viroides, los cuales utilizan esta estructura para autoescindirse durante su ciclo de replicación

¿Cómo está configurada la estructura secundaria y terciaria de la ribozima Horquilla (Hairpin)?
Estructura: Compuesta por cuatro tallos helicoidales: Stem A, Stem B, Stem C y Stem D
Nucleótidos clave: Nucleótidos de reconocimiento esenciales A38 (en Stem B) y G8 (en Stem A), junto con el sitio de corte catalítico A-1 / G+1
Organización terciaria: Presenta un característico apilamiento coaxial de dobles hélices que aproxima físicamente las dos ramas funcionales para formar el centro catalítico activo

¿Qué es la ribozima del Virus de la hepatitis δ (HDV), qué arquitectura terciaria adopta y cuál es su hospedador viral acompañante?
Arquitectura: Su estructura plegada forma de manera característica un pseudonudo
Elementos estructurales: Formada por cuatro regiones helicoidales coaxiales (P1, P2, P3 y P4) y lazos conectores (como L3), con el residuo C75 y el nucleótido G+1 directamente implicados en el reconocimiento y corte catalítico
Patología asociada: El virus de la hepatitis delta (HDV) es un virus satélite defectivo que para infectar requiere coinfección con el virus de la hepatitis B (“Este virus infecta a su vez al virus de la hepatitis C")

¿Qué son los ribointerruptores (riboswitches) y mediante qué mecanismo análogo al de las proteínas operan?
Son complejos entre mRNAs y moléculas pequeñas capaces de adoptar distintas conformaciones tridimensionales para regular la expresión génica del propio mensajero
Mecanismo alostérico: Operan de forma similar al alosterismo proteico. Poseen dos conformaciones posibles ("encendido" / ON o "apagado" / OFF); la transición de un estado a otro depende directamente de la unión específica de un ligando de pequeño tamaño que induce un cambio conformacional en el RNA
Regulación negativa por degradación: Al plegarse, algunos pueden actuar provocando el autocorte y su posterior degradación (mecanismo "suicida" de regulación inducido por su estructura secundaria)

¿Cuáles son las tres clases principales de ligandos de ribointerruptores mostrados químicamente en las láminas y cómo se estructuran sus dominios?
Purinas (Guanina y Adenina):
Formados por hélices P1, P2 y P3 conectadas por lazos L2 y L3
El bolsillo de unión coordina la base purínica mediante apareamientos con residuos clave como C74
TPP (Pirofosfato de Tiamina):
Formado por hélices P1, P2, P3, P4 y P5, lazos L3 y L5, y coordinación por iones magnesio (Mg2+) reconociendo la tiamina pirofosfato con nucleótidos conservados como G40
SAM-I (S-adenosilmetionina):
Regulado por la unión de SAM (liberando SAH); estructurado por hélices P1, P2a, P2b, P3 y P4, un motivo kink-turn y el nucleótido de unión U57

¿Cómo funciona el ribointerruptor termosensor a nivel molecular y qué gen de ejemplo regula?
Es un termómetro de RNA situado en el 5'UTR de un mRNA (ejemplo: transcrito del gen prfA con un lazo de 54 nt) que controla el inicio de la traducción según la temperatura
A baja temperatura (Estado OFF):
La estructura de horquilla se mantiene cerrada y estable, ocultando el sitio de unión al ribosoma (RBS / secuencia Shine-Dalgarno) y el codón de inicio (Start, ubicado típicamente a 8 nucleótidos cadena abajo del RBS). Esto impide el acoplamiento de la subunidad pequeña 30S
A temperatura fisiológica de infección (37ºC, Estado ON):
El incremento térmico desestabiliza y "funde" la horquilla, exponiendo la secuencia Shine-Dalgarno (RBS). La subunidad 30S se une libremente, recluta a la subunidad grande 50S y se dispara la traducción de la proteína

¿Cómo actúa el ribointerruptor de adenina (purinas) en el mRNA ydhL para modular la expresión génica?
Controla la terminación prematura de la transcripción según la abundancia de purinas en el medio
Estructura con abundante adenina (Estado ON):
La adenina se une al aptámero estabilizando los tallos P1, P2 y P3 mediante una red de puentes de hidrógeno con residuos como U51, U47, U22 y U74
Este plegamiento secuestra las secuencias que formarían la señal de terminación, permitiendo que la transcripción continúe completa y se traduzca el mensajero
Ausencia de adenina (Estado OFF):
El RNA adopta una conformación alternativa donde una horquilla actúa como terminador de la transcripción (terminator), seguida de una cola de poli-uracilo U(8), provocando la disociación prematura de la RNA polimerasa e impidiendo la síntesis del mensajero funcional
¿Dónde se encuentra la mayor diversidad de moléculas de RNA en la célula y a través de qué mecanismos regulan la expresión genética los RNAs no codificadores?
La mayor diversidad de RNAs reside en los RNAs no codificadores (non-coding RNAs o ncRNAs) reguladores
Mecanismos de regulación génica:
Inhibición de la traducción: Mediante interferencia de RNA (RNA interference) y degradación inducida del mRNA
Inhibición de la transcripción: Pueden introducir modificaciones covalentes en las histonas, provocando la condensación de la cromatina y la formación de heterocromatina silenciada
¿Qué diferencias funcionales y de complementariedad con el mRNA diana existen entre los miRNA y los siRNA?
miRNA (microRNA):
Acción: Regulan la traducción bloqueando físicamente al mensajero al unirse a él
Apareamiento: Presentan un apareamiento parcialmente complementario (partially complementary) con la región 3' UTR del mRNA a través de su región semilla (seed, nucleótidos 2 al 7 u 8)
siRNA (small interfering RNA):
Acción: "Silencian genes" interfiriendo directamente con el mRNA para provocar su corte o bloqueo
Apareamiento: Presentan un apareamiento totalmente complementario (fully complementary) a lo largo de toda su extensión con la secuencia del mRNA
¿Cuál es la estructura física molecular definida que presentan los siRNA dúplex maduros?
Son moléculas de doble cadena de 20 a 21 nucleótidos (o 21-22 nt según las tablas comparativas)
Su arquitectura bimolecular estándar comprende:
Un dúplex central apareado de 19 pares de bases (19-base pair duplex) formado por la hebra sentido (sense strand) y la hebra antisentido (antisense strand)
Dos extremos protruyentes cohesivos desapareados en el extremo 3′3'3′ de 2 nucleótidos libres (3′ overhangs) en cada cadena