Organización de la célula - Tema 5: Adhesión celular y uniones intercelulares
 Call Kai
 Learn
 Practice Test
 Spaced Repetition
 Match
 Flashcards
 Knowt Play
1/116

There's no tags or description
Looks like no tags are added yet.
117 Terms
¿De qué son responsables las uniones intercelulares y dónde se localizan?
Son responsables de la organización de los tejidos
Están presentes en todos los tejidos: uniones célula–célula y uniones célula–matriz extracelular (MEC)
Presentan especial abundancia en los epitelios
¿Qué funciones y procesos celulares determinan las uniones intercelulares?
Determinan la forma y el comportamiento (función) celular (por ejemplo, en células tumorales)
En ellas se inician muchos procesos de señalización, actuando como sensores de señales
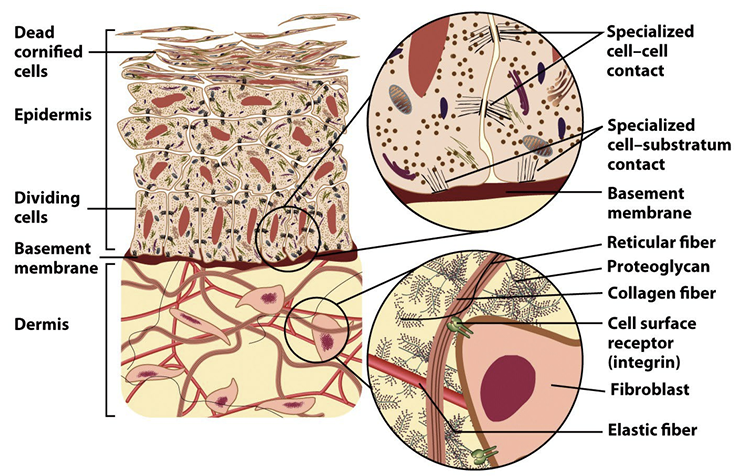
En la epidermis, ¿cómo se organizan y unen los queratinocitos?
Forman filamentos intermedios (contienen queratina)
Unión célula–matriz: Se unen a la lámina basal (mediante fibras)
Unión célula–célula: En su dominio lateral se unen entre sí, conectándose con los filamentos intermedios del citoesqueleto
Al alejarse de la lámina basal hacia la superficie se aplanan y mueren, convirtiéndose en un «saco de queratina»


¿Qué son los contactos focales en la dermis y qué función cumplen?
Son puntos de interconexión célula–matriz donde receptores de tipo integrinas se unen a componentes de la matriz celular (asociados a fibroblastos y fibras elásticas)
Se caracterizan por ser uniones transitorias
Permiten el desplazamiento de estas fibras y el movimiento celular


¿Qué es la compactación embrionaria y qué molécula clave se expresa?
Proceso durante las divisiones de los blastómeros (embrión de ratón) en el que, a partir del estadio de 8 células, éstas dejan de ser esféricas/redondas y cambian de forma gracias a interacciones intercelulares
Se inicia la expresión de la proteína E-cadherina, que forma las primeras adhesiones celulares

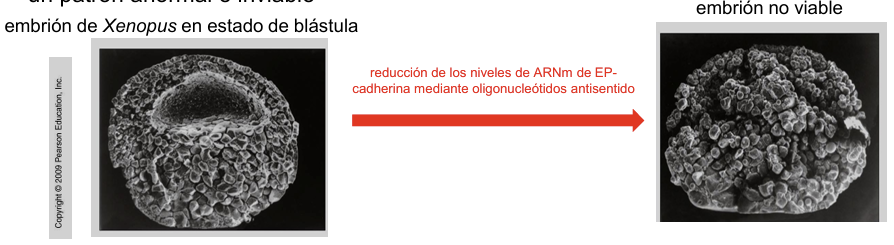
¿Qué ocurre si se interfiere con la adhesión celular durante el desarrollo embrionario (ej. Xenopus)?
Las uniones iniciales de los blastómeros son débiles
Si se bloquea la expresión de EP-cadherina (por ejemplo, reduciendo los niveles de ARNm mediante oligonucleótidos antisentido en blástula de Xenopus), las células embrionarias no forman uniones correctas, se reagrupan siguiendo un patrón anormal y el embrión resulta inviable

¿Por qué son biológicamente relevantes las uniones por cadherinas y láminas basales?
Las uniones mediante cadherinas y la formación de láminas basales por lamininas son de las características más exclusivas de los organismos pluricelulares
Están en el origen mismo de la multicelularidad y en las etapas iniciales de la ontogenia
Láminas basales: capas finas de matriz extracelular que se ensamblan a partir de lamininas (que se unen a las células por integrinas y se entrecruzan con colágeno IV y otras proteínas), y que sirven de soporte y anclaje a los epitelios, separándolos del tejido conectivo

Experimento con células L (fibroblastos): ¿qué demostró la transfección de cadherinas?
Transfección de cadherinas = se introducen en las células L (que normalmente no expresan cadherinas) el gen de una cadherina concreta, como la E- o la P-cadherina, para que la fabriquen y, al hacerlo, se adhieran entre sí de forma selectiva según el tipo de cadherina que expresan
Los fibroblastos (tejido conjuntivo) de la línea L por sí solos no forman uniones célula–célula estables
Al introducirles mediante ingeniería genética genes que codifican para cadherinas (P-cadherina o E-cadherina), se autoagregan y unen entre sí según la molécula que expresan
Conclusión: Las moléculas de adhesión celular determinan la morfología y el tipo de asociación celular


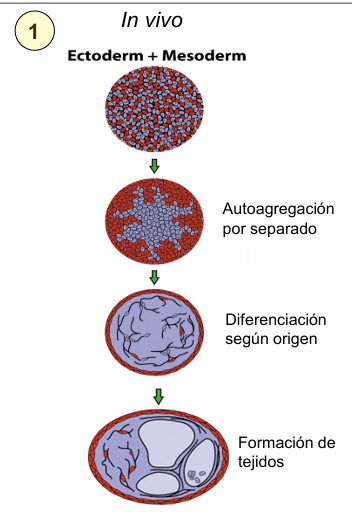
Experimento in vivo con células ectodérmicas y mesodérmicas (Townes y Holtfreter, 1955): ¿cuál es el proceso y su conclusión?
Procedimiento: Se disgregan con enzimas células de origen ectodérmico y mesodérmico, mezclándolas al azar
Resultado: Con el tiempo se autoagregan por separado según su origen embrionario: el ectodermo forma epitelio hacia el exterior y el mesodermo se sitúa en el interior, llegando a diferenciarse y originar tejidos y cavidades
Conclusión: Demuestra la adhesión celular selectiva; las células de un mismo tipo comparten mecanismos de reconocimiento y adhesión específicos

Experimento de nanopatrón / microimpresión con fibronectina: ¿qué demuestra respecto a la MEC?
Fibronectina: glucoproteína de alto peso molecular presente en la matriz extracelular y en el plasma, esencial para la adhesión, migración y reparación tisular
Al cultivar células (ej. célula endotelial) sobre un patrón geométrico (cuadrado) de fibronectina, la célula adopta forma cuadrada debido a las uniones con la membrana y la reorganización de los filamentos de actina (en verde)
Conclusión: La adhesión célula–MEC condiciona la organización del citoesqueleto y determina la forma de la célula


¿Cómo se identifican experimentalmente las moléculas de adhesión celular (CAMs) (ej. cadherinas) usando anticuerpos?
En un medio tampón sin interferencias, las células aisladas tienden a autoagregarse
Si se añade un anticuerpo específico contra una proteína de membrana implicada en la unión, el anticuerpo bloquea dicha molécula e impide la agregación celular, manteniéndolas separadas
Esto permite aislar y purificar proteínas integrales y producir anticuerpos dirigidos a caracterizar cada CAM


¿Qué papel juega el ion calcio (Ca2+) en la adhesión por cadherinas?
La adhesión mediada por ciertas moléculas (especialmente cadherinas) es dependiente de calcio (Ca2+)
En células con transgen de cadherina:
Con calcio (Ca2+): Ocurre agregación celular masiva
Sin calcio (Ca2+): No logran agregarse y permanecen dispersas

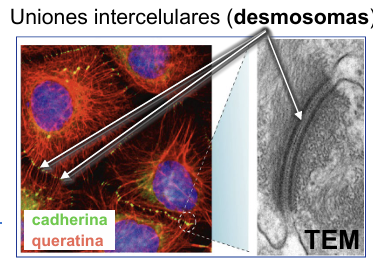
¿Qué muestra el marcaje por inmunofluorescencia y TEM en los desmosomas?
Se marcan conjuntamente filamentos de queratina (en el interior celular) y cadherinas (en la zona de unión transmembrana)
Son uniones intercelulares especializadas características entre células epiteliales (visibles a ultraestructura por microscopía electrónica de transmisión, TEM)


¿Cuáles son las familias principales de CAMs y sus modalidades de unión?
Las N–CAM (superfamilia de las inmunoglobulinas, IgSF) son de adhesión celular tipo homofílico
Las E–Cadherinas que unen células con otras también realizan enlaces homofílicos
Las selectinas (ej. P-selectina) se unen mediante el último dominio a una glicoproteína, formando enlaces heterofílicos
Algunas inmunoglobulinas (ej. ICAM) se unen a integrinas, formando enlaces heterofílicos
Unión Homofílica: Interacción entre moléculas idénticas del mismo tipo celular (ej. cadherina–cadherina o Ig-CAM–Ig-CAM)
Unión Heterofílica: Interacción entre diferentes tipos de moléculas (ej. selectina con glucoproteína, o integrina con miembros de Ig-SF / MEC)

¿Cuál es la diferencia básica entre un enlace homofílico y un enlace heterofílico en las CAMs?
Enlace homofílico: Interacción adhesiva entre moléculas idénticas de las dos células que se están uniendo
Enlace heterofílico: Interacción adhesiva en la que interaccionan moléculas distintas en cada una de las células o entre la célula y la matriz extracelular (MEC)
¿En qué se diferencian el mecanismo de anclaje de la adhesión célula–célula frente a la adhesión célula–matriz?
Célula–célula: Las moléculas de adhesión celular (como cadherinas o selectinas) se enlazan directamente a receptores o proteínas de la superficie de otra célula vecina
Célula–matriz: Las CAMs (principalmente integrinas) se anclan a componentes macromoleculares de la matriz extracelular (como colágeno, fibronectina o laminina)

¿Cuáles son las CAMs para adhesiones célula-célula y para célula-matriz?
Célula-célula:
Cadherinas clásicas (ej. E, N, P, VE)
Cadherinas desmosomales (ej. desmogelína, desmocolina)
Miembros de la familia de las inmunoglobulinas (ej. N-CAM, ICAM)
Selectinas (ej. L-, E- y P-selectinas)
Integrinas en células sanguíneas (ej. ɑLβ2/LFA1)
Célula-matriz:
Integrinas (muchos tipos y ɑ6β4)
Proteoglicanos transmembrana (ej. sinedicanos)


Completa el perfil de las Cadherinas clásicas según la tabla de familias de CAMs (miembros, dependencia de cationes, tipo de unión, citoesqueleto y uniones asociadas):
Miembros: E-, N-, P-, VE-cadherina
Dependencia de Ca2+ / Mg2+: Sí (dependiente)
Tipo de interacción: Homofílica
Asociación al citoesqueleto: Filamentos de actina (a través de cateninas)
Uniones celulares: Uniones adherentes (adherens junctions) y sinapsis


Completa el perfil de las Cadherinas desmosómicas en la tabla de familias de CAMs:
Miembros: Desmogleína (desmoglein), desmocolina (desmocollin)
Dependencia de Ca2+/Mg2+: Sí (dependiente)
Tipo de interacción: Homofílica
Asociación al citoesqueleto: Filamentos intermedios (a través de desmoplaquina, placoglobina y placofilina)
Uniones celulares: Desmosomas


Completa el perfil de los Miembros de la familia de las inmunoglobulinas (Ig-SF) en la tabla de CAMs:
Miembros: N-CAM, ICAM
Dependencia de Ca2+/Mg2+: No (independiente)
Tipo de interacción: Ambos (homofílica y heterofílica)
Asociación al citoesqueleto: Desconocida (unknown)
Uniones celulares: Sinapsis neuronales e inmunológicas


Completa el perfil de las Selectinas (células sanguíneas y endoteliales) en la tabla de CAMs:
Miembros: L-, E- y P-selectinas
Dependencia de Ca2+/Mg2+: Sí (dependiente)
Tipo de interacción: Heterofílica
Asociación al citoesqueleto: Filamentos de actina
Uniones celulares: Sin estructura de unión prominente (no prominent junctional structure)

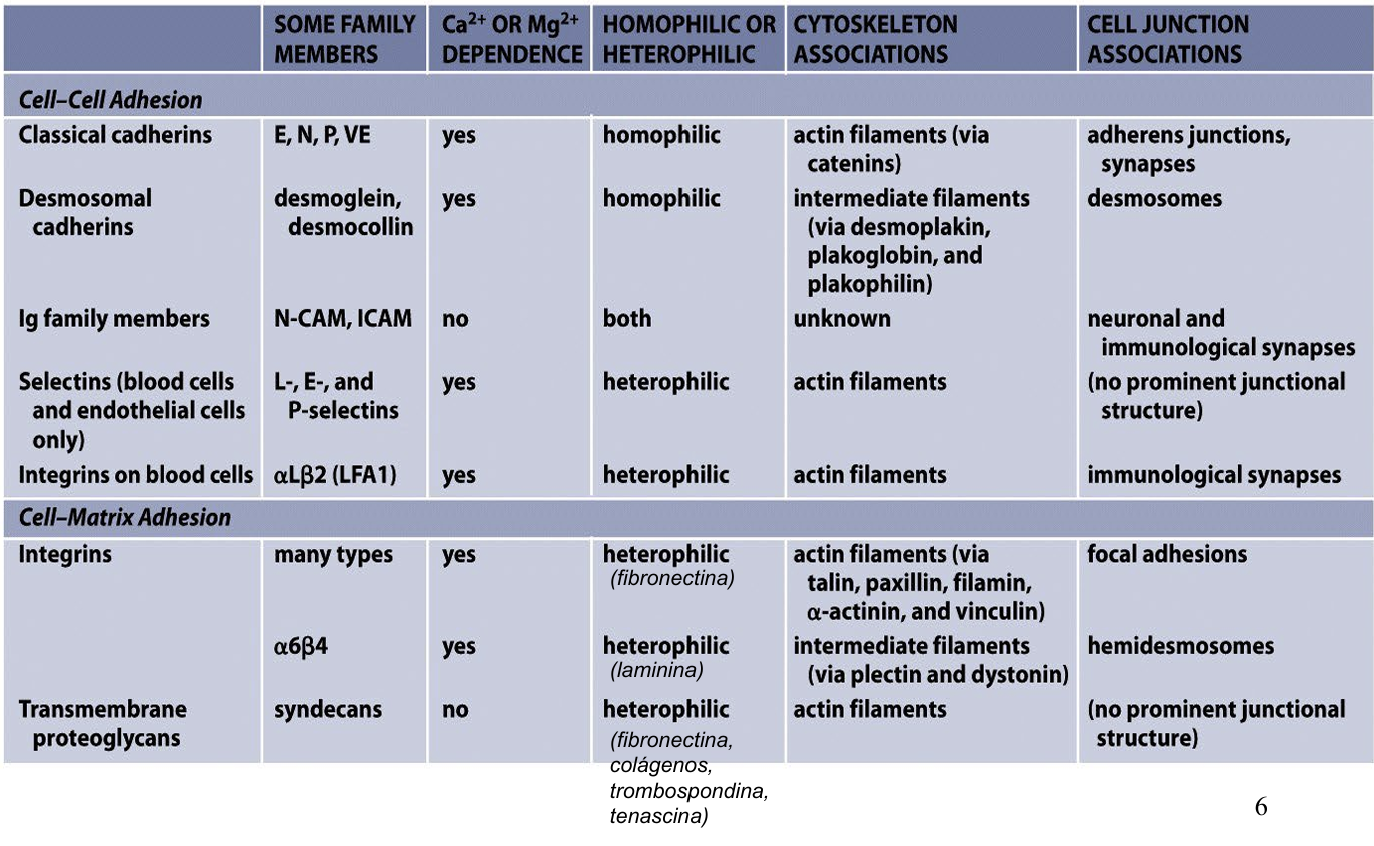
Completa el perfil de las Integrinas en células sanguíneas (ɑLβ2 / LFA1) en la tabla de CAMs:
Dependencia de Ca2+/Mg2+: Sí (dependiente)
Tipo de interacción: Heterofílica
Asociación al citoesqueleto: Filamentos de actina
Uniones celulares: Sinapsis inmunológica


Completa el perfil de las Integrinas en adhesión célula–matriz (muchos tipos y ɑ6β4):
Muchos tipos:
Dependencia: Sí (Ca2+/Mg2+)
Tipo: Heterofílica (ej. fibronectina)
Citoesqueleto: Filamentos de actina (vía talina, paxilina, filamina, ɑ-actinina y vinculina)
Uniones: Adhesiones focales (focal adhesions)
ɑ6β4:
Dependencia: Sí (Ca2+/Mg2+)
Tipo: Heterofílica (ej. laminina)
Citoesqueleto: Filamentos intermedios (vía plectina y distonina)
Uniones: Hemidesmosomas


Completa el perfil de los Proteoglucanos transmembrana (Sindecanos / syndecans) en la tabla de CAMs:
Dependencia de Ca2+/Mg2+: No (independiente)
Tipo de interacción: Heterofílica (se unen a fibronectina, colágenos, trombospondina, tenascina)
Asociación al citoesqueleto: Filamentos de actina
Uniones celulares: Sin estructura de unión prominente (no prominent junctional structure)


¿Qué son las cadherinas y cuántos tipos se conocen en humanos?
Superfamilia de glucoproteínas integrales que median la adhesión y reconocimiento celular (principalmente célula–célula)
En humanos se conocen más de 180 tipos (y hay millones en la naturaleza)
Son de las proteínas que mayor diversificación evolutiva han tenido al haber surgido de forma muy temprana en los pluricelulares


¿Cuáles son las dos partes principales de la estructura de una cadherina clásica?
Parte extracelular (N-terminal): Formada por 5 dominios cadherina (EC1 a EC5) en tándem, con secuencias ricas en His-Ala-Val (HAV) y sitios de unión a Ca2+ entre los dominios que les confieren flexibilidad/rigidez
Parte intracelular (C-terminal): Es la región más variable; se une a proteínas adaptadoras o de anclaje (cateninas) para conectarse con los filamentos de actina del citoesqueleto

¿Qué función cumplen las cateninas y cuál es el doble papel de la β-catenina?
Función general: Son proteínas de la placa de anclaje (junto a p120-catenina y otras) que enlazan el dominio citosólico de la cadherina con los filamentos de actina
Doble papel de la β-catenina:
Anclaje estructural citoesquelético
Molécula señalizadora: Puede soltarse de la placa de anclaje, quedar soluble/globular en el citosol y translocarse al núcleo para actuar como factor de transcripción en la vía de señalización de Wnt (esencial para el control de la proliferación y el ciclo celular)

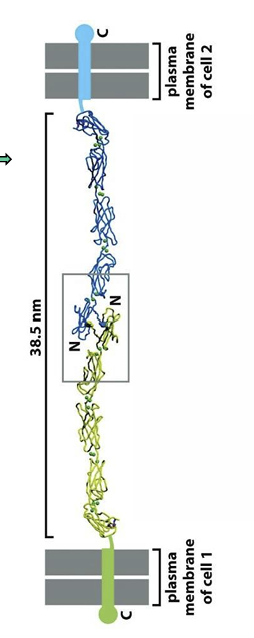
¿Cómo es la interacción transmembrana y la orientación de señales en los puntos de unión por cadherina?
Las cadherinas forman homodímeros que se asocian con dímeros idénticos de la membrana enfrentada (interacción entre diferentes dominios a través de 5 segmentos)
Los puntos de unión son vías de comunicación bidireccional: las señales extracelulares se dirigen al interior celular, y las señales del interior también pueden transmitirse al exterior celular (y al revés)


¿Qué es la unión recíproca «protuberancia–cavidad» (strand swap)?
Mecanismo por el cual dos cadherinas de células adyacentes opuestas se enlazan homofílicamente a través de sus dominios N-terminales más externos (EC1)
Un segmento polipeptídico del extremo N-terminal (que contiene el residuo de triptófano Trp2) se inserta en el bolsillo o cavidad de unión del dominio EC1 de la molécula compañera (strand swap), asegurando la interacción trans
La distancia entre las membranas enfrentadas en este complejo trans es de aproximadamente 38,5 nm
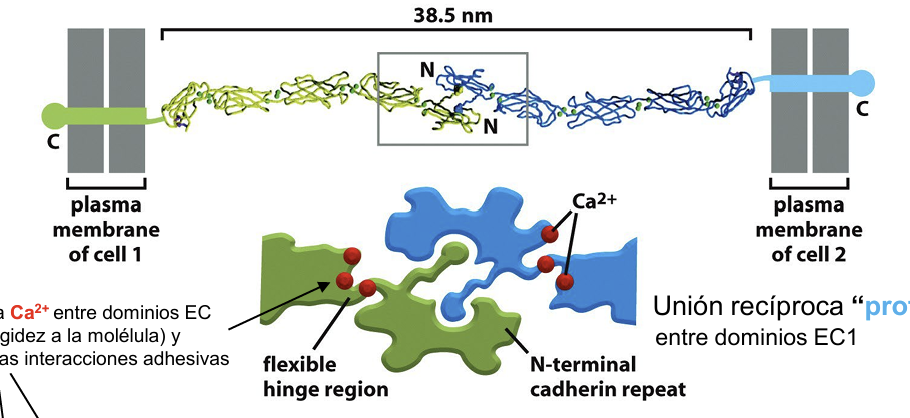

¿Cuál es el efecto del ion Ca2+ en la conformación de los dominios extracelulares de la cadherina?
El Ca2+ se une a los sitios específicos localizados en las regiones bisagra y flexibles entre los dominios EC
Con Ca2+ (> 1 mM): Confiere rigidez y adopta una conformación extendida, ligeramente curvada y estable, indispensable para poder interaccionar con el polipéptido de la célula vecina
Sin Ca2+ o al añadir EDTA (< 0,05 mM): La molécula pierde rigidez, sufre un cambio conformacional que la deja desestructurada/colapsada, se induce despolimerización, se pierde la adhesión y aumenta la susceptibilidad a proteólisis

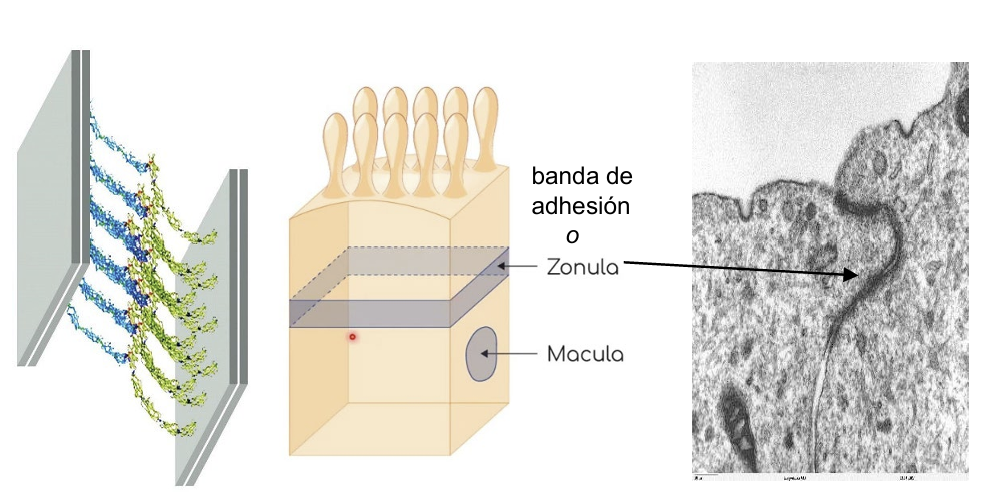
¿Por qué se dice que las cadherinas actúan a modo de «velcro» y cómo forman las «bandas de adhesión»?
Las fuerzas de unión individuales entre monómeros de cadherina no son muy fuertes
Para generar una adhesión celular mecánicamente resistente, se agrupan en paralelo miles de moléculas coordinadas formando estructuras electrodensas llamadas uniones adherentes o bandas de adhesión (zonula adherens / cinturón adhesivo), funcionando conjuntamente a modo de velcro


¿Qué diferencia existe entre las interacciones tipo cis y tipo trans en las cadherinas?
Interacciones cis (laterales): Ocurren entre cadherinas insertadas en la misma membrana plasmática (ej. dominio EC1 interacciona lateralmente con EC2 de la molécula vecina). Son interacciones relativamente débiles que sirven para agrupar las cadherinas en oligómeros o cúmulos (clusters)
Interacciones trans: Ocurren entre dominios extracelulares (EC1–EC1) de cadherinas situadas en células vecinas diferentes. Son las que acoplan físicamente ambas membranas y proporcionan la fuerza adhesiva intercelular

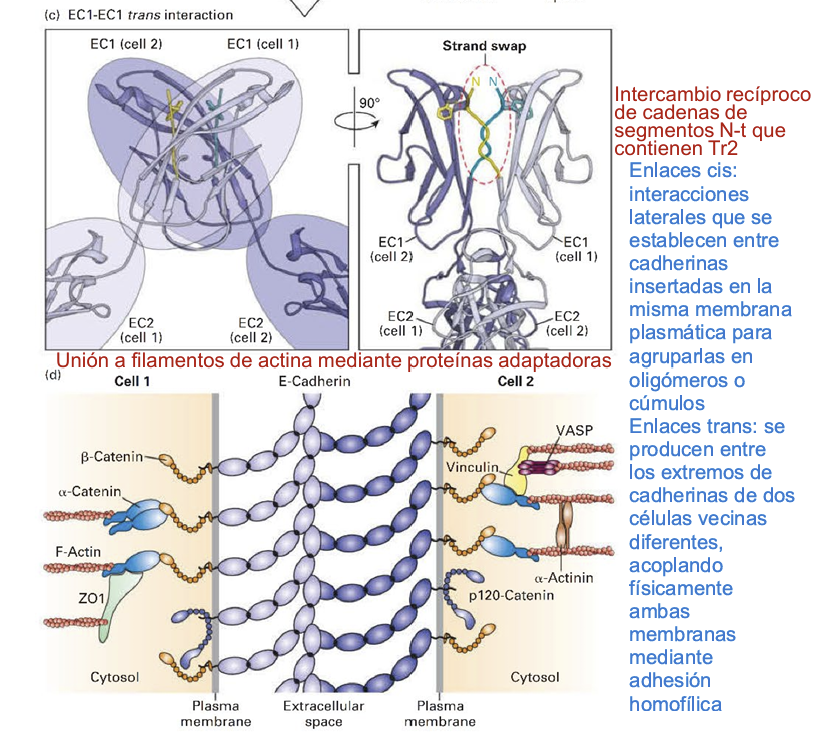
¿Qué adaptadores citoplasmáticos pueden intervenir en la unión de cadherinas a actina y señalización intracelular?
Además de β-catenina y p120-catenina, intervienen ɑ-catenina, vinculina, VASP, ɑ-actinina y ZO-1
Esta variedad de adaptadores permite modular la resistencia del enlace con la actina F y participar directamente en rutas de señalización intracelular

¿Qué significado tienen las letras de las cadherinas clásicas y qué estructura comparten?
Las letras provienen de las células/tejidos en los que fueron descubiertas o donde son más abundantes (ej. E: epitelio; N: neuronas/nervioso; P: placenta; VE: vascular-endotelial)
Estructura común: Todas las clásicas tienen un alto grado de homología y poseen exactamente 5 dominios cadherina extracelulares (EC1 a EC5) repetidos en tándem. Se consideran las más antiguas evolutivamente

¿En qué se diferencian las cadherinas clásicas de las no clásicas a nivel molecular y funcional?
No clásicas: Presentan mayor diversidad estructural; no tienen obligatoriamente 5 dominios EC (pueden tener hasta más de 30 dominios cadherina) y presentan otros dominios funcionales añadidos (como dominios de fibronectina tipo III, dominios quinasa o dominios de 7 pasos transmembrana)
Además de la adhesión mecánica, muchas tienen como función principal actuar como moléculas señalizadoras en la superficie celular


¿Cómo varía la expresión de cadherinas en el desarrollo del encéfalo de mamíferos?
Durante el desarrollo embrionario se expresan patrones espacio-temporales muy específicos de diferentes cadherinas (como E-cadherina, R-cadherina, cadherina-6 y protocadherinas)
En el encéfalo y la médula espinal llegan a expresarse más de 70 tipos distintos de cadherinas, delimitando regiones funcionales anatómicas concretas del sistema nervioso central

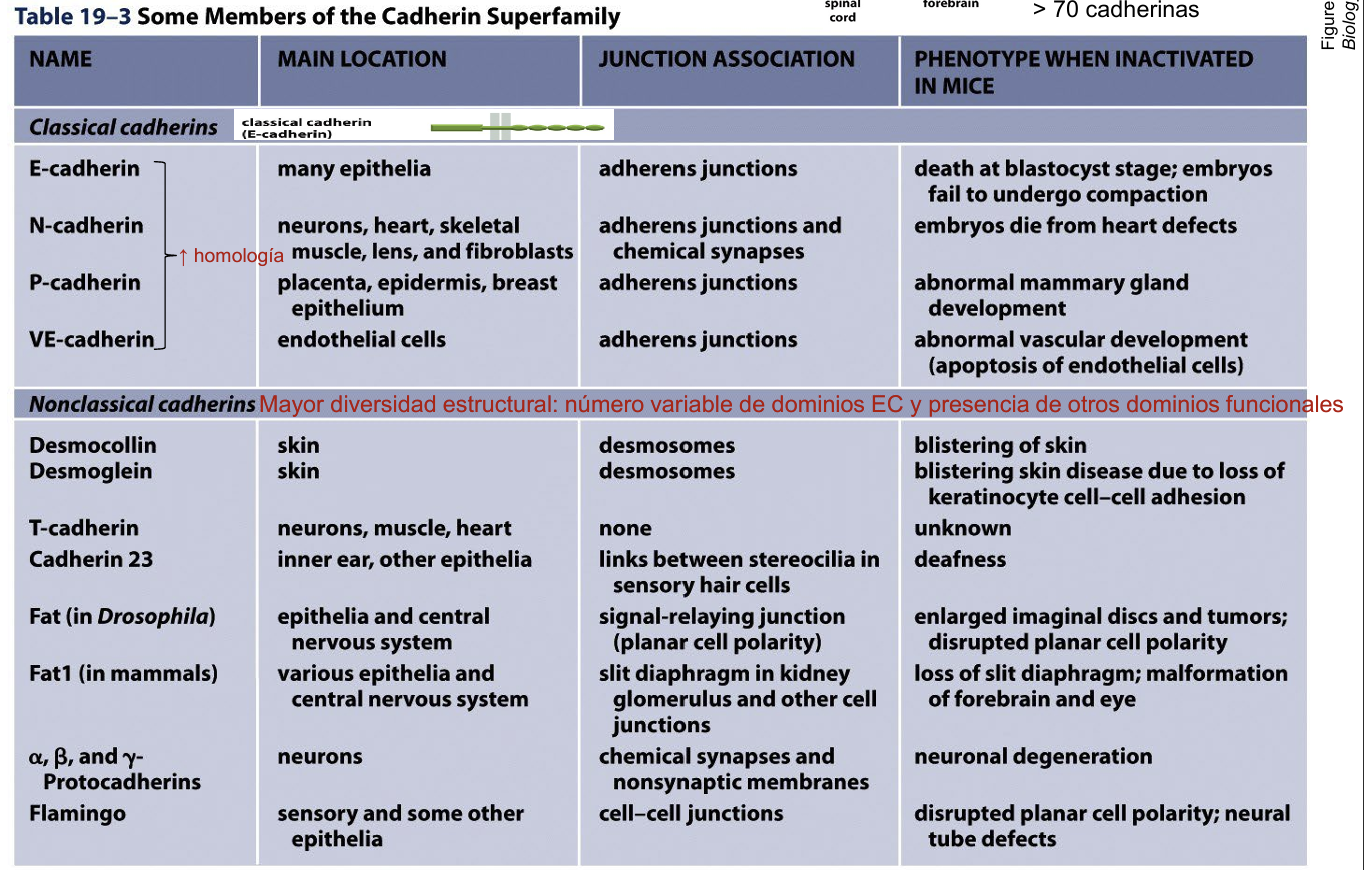
Enumera las características de las 4 cadherinas clásicas de la tabla (Localización, Unión asociada y Fenotipo de inactivación en ratones):
E-cadherina:
Localización: Muchos epitelios (many epithelia)
Unión: Uniones adherentes (adherens junctions)
Fenotipo ratón nulo: Muerte en fase de blastocisto; los embriones fallan al realizar la compactación
N-cadherina:
Localización: Neuronas, corazón, músculo esquelético, cristalino (lens) y fibroblastos
Unión: Uniones adherentes y sinapsis químicas
Fenotipo ratón nulo: Muerte embrionaria por defectos cardíacos gravemente alterados
P-cadherina:
Localización: Placenta, epidermis y epitelio mamario
Unión: Uniones adherentes
Fenotipo ratón nulo: Desarrollo anormal de la glándula mamaria
VE-cadherina:
Localización: Células endoteliales
Unión: Uniones adherentes
Fenotipo ratón nulo: Desarrollo vascular anormal (apoptosis de células endoteliales)


Enumera las características de las cadherinas no clásicas: Desmocolina, Desmogleína, T-cadherina y Cadherina 23 (Localización, Unión y Fenotipo en ratón):
Desmocolina (desmocollin):
Localización: Piel (skin)
Unión: Desmosomas
Fenotipo: Ampollas en la piel (blistering of skin)
Desmogleína (desmoglein):
Localización: Piel (skin)
Unión: Desmosomas
Fenotipo: Enfermedad ampollar de la piel debida a la pérdida de adhesión entre queratinocitos
T-cadherina:
Localización: Neuronas, músculo, corazón
Unión: Ninguna (none)
Fenotipo: Desconocido (unknown)
Cadherina 23:
Localización: Oído interno (inner ear), otros epitelios
Unión: Enlaces entre estereocilios en las células ciliadas sensoriales
Fenotipo: Sordera (deafness)


Enumera las características de las cadherinas no clásicas: Fat (en Drosophila y mamíferos), Protocadherinas y Flamingo (Localización, Unión y Fenotipo en ratón):
Fat (en Drosophila): Epitelios y SNC. Unión de transmisión de señales (polaridad celular planar). Fenotipo: Discos imaginales agrandados y tumores; polaridad celular planar alterada
Fat1 (en mamíferos): Varios epitelios y SNC. Diafragma en hendidura (slit diaphragm) en glomérulo renal y otras uniones. Fenotipo: Pérdida del diafragma en hendidura; malformación del prosencéfalo y del ojo
ɑ-, β- y γ-Protocadherinas: Neuronas. Sinapsis químicas y membranas no sinápticas. Fenotipo: Degeneración neuronal
Flamingo: Epitelios sensoriales y otros epitelios. Es una cadherina de 7 pasos transmembrana en uniones célula–célula. Fenotipo: Alteración de la polaridad celular planar; defectos del tubo neural


¿Qué son las CAMs de la Superfamilia de las Inmunoglobulinas (IgSF) y qué dependencia tienen del Ca2+?
Son glucoproteínas multidominio que median la adhesión célula–célula
Sus adhesiones son independientes de Ca2+
Pueden formar tanto uniones homofílicas como heterofílicas
Desempeñan muchas funciones fuera del sistema inmunológico (no ligadas a la defensa inmune), a pesar de compartir dominios característicos de los anticuerpos
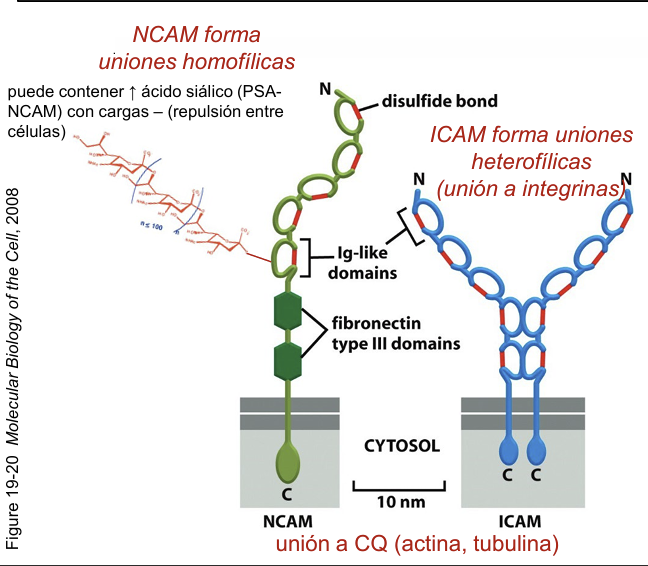

¿Cómo son los dominios Ig y qué otros dominios extracelulares pueden presentar las proteínas IgSF?
Dominios inmunoglobulina (Ig): Contienen entre 70 y 100 aminoácidos muy empaquetados en su plegamiento. En humanos se conocen entre 700 y más de 765 dominios Ig distintos (como los de tipo C2, V, etc.), siendo los más abundantes y diversos
Dominios adicionales: Algunas poseen repeticiones de dominios FNIII (fibronectina tipo III), implicados en señalización para distintos procesos celulares y que añaden flexibilidad estructural
Ej. L1-CAM (tipo de N-CAM) tiene 5 dominios FNIII

¿Cómo interaccionan las CAMs de la familia IgSF con el citoesqueleto?
Presentan gran heterogeneidad en su dominio intracelular (región C-terminal)
Se conectan a elementos del citoesqueleto como actina o tubulina a través de distintas proteínas adaptadoras o de anclaje, tales como MAPs (proteínas asociadas a microtúbulos) o ABPs (proteínas de unión a actina)

¿Qué son las NCAM (Neural Cell Adhesion Molecules), qué tipo de uniones forman y qué función desempeñan?
Son IgSF muy abundantes en el sistema nervioso
Forman uniones homofílicas (contienen puentes disulfuro en sus dominios Ig)
Son responsables de las migraciones celulares y el crecimiento axónico durante el desarrollo del sistema nervioso (por ejemplo, la isoforma L1-NCAM)
En un ratón mutante knock-out para NCAM (eliminado la molécula y su carga negativa), las neuronas pierden la capacidad de migrar ordenadamente por los extractos/tejidos y aparecen desorganizadas. Sus axones crecen y se orientan al azar sin mostrar ninguna preferencia direccional


¿Qué es la PSA-NCAM y cómo ejerce su función de repulsión?
Es una variante de NCAM que contiene abundantes residuos de ácido siálico (polysialic acid)
El ácido siálico aporta una elevada carga negativa, generando repulsión electrostática frente a zonas iguales de otras células
Esta repulsión previene la agregación prematura y aleja a unas neuronas de otras durante la migración embrionaria hasta que alcanzan sus territorios diana


¿Qué son las ICAM, las VCAM y las Nectinas dentro de la superfamilia IgSF?
ICAM (Intercellular Cell Adhesion Molecules): Presentan residuos disulfuro; se expresan en células endoteliales, leucocitos y otras células del sistema inmune. Forman uniones heterofílicas con integrinas leucocitarias durante la extravasación
VCAM (Vascular Cell Adhesion Molecules): Forman uniones heterofílicas con integrinas en las células endoteliales de los vasos sanguíneos durante la respuesta inmune
ICAM y VCAM son los “anclajes” del endotelio a los que se pegan las integrinas de los leucocitos para frenarse y atravesar la pared del vaso hacia el tejido infectado
Nectinas y familia nectin-like (Nec1): Se encuentran en diversos tejidos, forman tanto uniones homofílicas como heterofílicas, y son clave para formar uniones estables (como uniones adherentes) y conectar con el citoesqueleto de actina

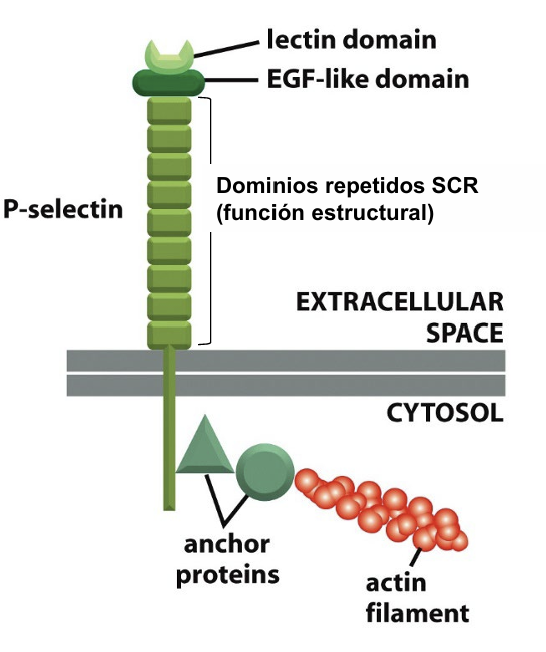
¿Qué son las selectinas, cuál es su dependencia iónica y a qué ligando se unen?
Son glucoproteínas transmembrana de adhesión célula–célula con actividad dependiente de Ca2+
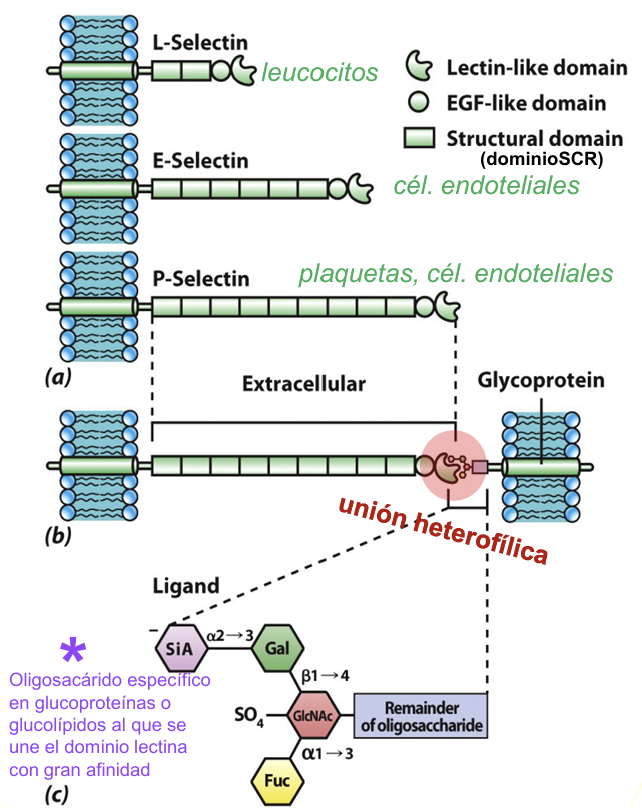
Poseen un dominio conservado de tipo lectina (proteínas que reconocen glúcidos) mediante el cual se unen específicamente a oligosacáridos/polisacáridos específicos presentes en glucoproteínas o glucolípidos de la superficie de otras células
Realizan uniones heterofílicas, débiles y transitorias, fundamentales en el reconocimiento celular, defensa inmune y regulación del tráfico leucocitario


¿Cuál es la estructura de dominios de una selectina (ej. P-selectina)?
Extremo extracelular distal: Un dominio lectina (lectin-like domain) que reconoce residuos glucosídicos
Debajo del dominio lectina: Un dominio similar al factor de crecimiento epidérmico (EGF-like)
Región tallo: Un número variable de repeticiones de dominios estructurales (dominios SCR)
Región citosólica: Se une mediante proteínas de anclaje (anchor proteins) a los filamentos de actina

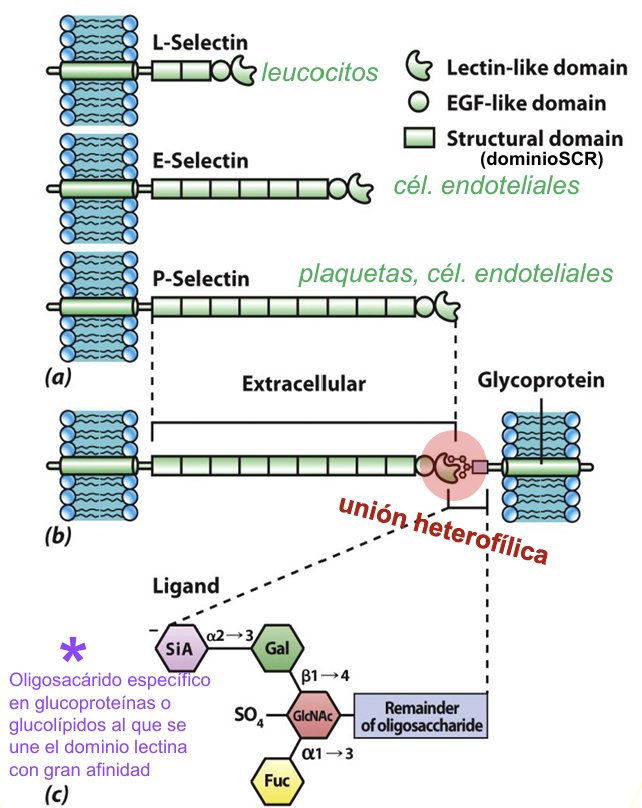
¿Cuáles son los 3 tipos principales de selectinas y dónde se localizan?
L-selectina: Presente en los leucocitos (interacciona con ligandos/integrinas del endotelio)
P-selectina: Presente en las plaquetas sanguíneas y en las células endoteliales activadas localmente por una respuesta inflamatoria (almacenada previamente en vesículas intracelulares)
E-selectina: Presente en las células endoteliales que han sido activadas tras señales inflamatorias

¿Qué ocurre en el paso 1 de la extravasación leucocitaria (ausencia de inflamación) y dónde ocurre siempre este proceso?
Lugar anatómico: Se produce siempre en venas, nunca en arterias
Estado basal (Paso 1): En ausencia de inflamación o infección, los leucocitos y las células endoteliales que revisten los vasos sanguíneos permanecen en estado de reposo y no interactúan entre sí


¿Qué ocurre en el paso 2 de la extravasación leucocitaria: Activación endotelial y rodamiento (rolling)?
Las señales inflamatorias liberadas en la zona de infección activan las células endoteliales en reposo
Esto provoca la movilización hacia la superficie celular de P-selectinas (antes secuestradas en vesículas) y la síntesis/expresión de E-selectinas, PAF (factor activador de plaquetas, mediador lipídico inflamatorio) e ICAM-1
Las selectinas endoteliales forman uniones débiles y transitorias con los oligosacáridos de la superficie del leucocito (y la L-selectina leucocitaria con el endotelio)
Empujado por el flujo sanguíneo, el leucocito va rodando (rolling) a lo largo del endotelio


¿Qué ocurre en el paso 3 de la extravasación leucocitaria: Activación del leucocito e integrinas?
El PAF (factor activador de plaquetas) expresado en la superficie endotelial (junto a otros activadores secretados) se une a los receptores de PAF en el leucocito
PAF = fosfolípido de señalización que las células endoteliales activadas exponen en su superficie y que, al unirse a su receptor en el leucocito, activa sus integrinas para que se adhieran firmemente al endotelio (además de ser un mediador de la inflamación que también activa plaquetas y aumenta la permeabilidad vascular)
Esta señal induce cambios de forma en el leucocito y activa sus integrinas leucocitarias (como la integrina ɑLβ2 o LFA-1 en linfocitos T), pasando de un estado inactivo a uno de alta afinidad


¿Qué ocurre en los pasos 4 y 5 de la extravasación leucocitaria: Adhesión firme y diapédesis?
Paso 4 (Adhesión firme): Las integrinas leucocitarias ya activadas (ɑLβ2) establecen uniones heterofílicas estrechas y fuertes con las moléculas ICAM (ICAM-1/ICAM-2) y VCAM expresadas en el endotelio, deteniendo por completo el rodamiento del leucocito
Paso 5 (Extravasación / Diapédesis / Invasión): El leucocito se abre paso deslizándose entre las uniones de las células endoteliales, atravesando la lámina basal para migrar desde la sangre hacia el tejido conectivo subendotelial infectado

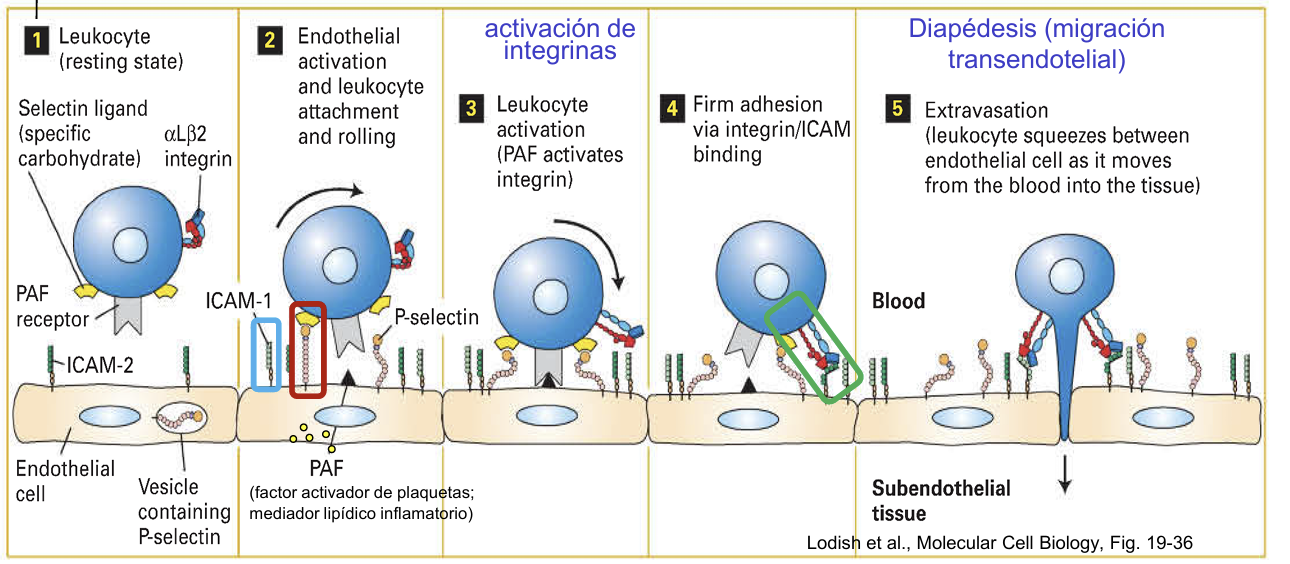
¿Qué principio general de la biología celular ilustra el proceso de extravasación leucocitaria?
Demuestra que en un mismo proceso fisiológico intervienen secuencialmente diferentes familias de moléculas de adhesión (primero selectinas para interacciones débiles y transitorias, y posteriormente integrinas + IgSF como ICAM/VCAM para adhesiones fuertes y estables)

¿Qué son las integrinas y cuál es su función principal en la célula?
Son receptores de adhesión transmembrana que conectan físicamente los microambientes extracelular e intracelular
Son el principal medio por el cual las células se unen a proteínas de la matriz extracelular (MEC) como colágeno, fibronectina, laminina o vitronectina, así como a otras células mediante CAMs (como ICAM y VCAM)
Conectan estos ligandos con el citoesqueleto de actina (a través de proteínas adaptadoras) y regulan múltiples funciones celulares mediante distintas vías de señalización
Forman parte de los contactos focales, hemidesmosomas y participan en procesos como la extravasación leucocitaria

¿Cuál es la estructura básica de una integrina y cuántos tipos existen en mamíferos/humanos?
Es un heterodímero formado por dos grandes cadenas polipeptídicas transmembrana asociadas de manera no covalente: una subunidad ɑ y una subunidad β (con puentes disulfuro en su estructura)
En mamíferos/humanos se han aislado 18 subunidades ɑ y 8 subunidades β, cuyas combinaciones forman 24 heterodímeros diferentes (aunque podría haber más)


¿Qué función específica desempeñan la subunidad ɑ y la subunidad β de las integrinas?
Subunidad ɑ (extracelular): Contiene en su secuencia el sitio de unión para el ligando específico y su isoforma otorga la especificidad de ligando a cada integrina. Reconoce secuencias RGD (presentes en fibronectina y vitronectina), colágeno, laminina o CAMs
Secuencia RGD: motivo de tres aminoácidos Arg-Gly-Asp presente en proteínas de la matriz extracelular como la fibronectina, y es el sitio que reconocen muchas integrinas para unirse a ellas y anclar la célula a la matriz
Subunidad β (zona citoplasmática): Es la responsable de la unión con el citoesqueleto de actina a través de proteínas adaptadoras, siendo la talina (talin) la unidad adaptadora principal

¿De qué iones depende la actividad de unión a ligandos de las integrinas?
La actividad y unión a ligandos de las integrinas depende obligatoriamente de la presencia y unión de cationes divalentes: Ca2+, Mn2+ y Mg2+ (a diferencia de algunas CAMs como las IgSF que son independientes)

¿Qué determina la especificidad de ligando de una integrina?
La combinación concreta de subunidades α y β del heterodímero. Por ejemplo, el sitio de unión a la secuencia RGD de la fibronectina está formado por ambas subunidades
Según el ligando, se pueden agrupar en receptores de RGD, receptores de colágeno, receptores de laminina y receptores específicos de leucocitos


¿Qué respuestas celulares regula la señalización por integrinas?
Proliferación (ciclo celular), supervivencia, organización del citoesqueleto, migración y transcripción génica
Ej. entre las vías de señalización de integrinas y de receptores tirosina quinasa, hay comunicación bidireccional: ambas comparten vías de señalización y se controlan tanto por integrinas como por receptores tirosina quinasa


¿Qué muestran los fenotipos de mutantes de integrinas?
Que cada integrina tiene funciones específicas: mutar una subunidad α afecta a tejidos concretos (piel, músculo, vasos, leucocitos, plaquetas), mientras que mutar una subunidad β (sobre todo β1) suele ser más grave, incluso letal en el embrión, porque la misma β forma parte de muchos heterodímeros


¿Qué es la mecanotransducción mediada por integrinas y cómo cambian conformacionalmente al activarse?
Es la capacidad de convertir estímulos mecánicos/químicos de la MEC en señales bioquímicas intracelulares y, a la inversa, transmitir fuerzas de contracción del citoesqueleto hacia el exterior celular
Cambio conformacional: En estado inactivo (sin ligando, ej. -RGD) la integrina está en una conformación plegada (doblada). Al activarse (ej. con +RGD o talina), sufre un cambio conformacional hacia una estructura extendida y abierta (estabilizando el estado activo de alta afinidad)


Explica los dos sentidos de la señalización bidireccional de las integrinas: Outside-in e Inside-out:
De fuera hacia dentro (Outside-in): La unión directa de ligandos extracelulares (ej. secuencias RGD de fibronectina) a los aminoácidos de la subunidad ɑ induce un cambio conformacional que hace que, a nivel intracelular, la subunidad β se una a la talina y active cascadas de señalización (formación de contactos focales, supervivencia, proliferación, migración)
De dentro hacia fuera (Inside-out): Señales intracelulares activan la talina (y kindlina), la cual se une a la cola citoplasmática de la subunidad β provocando un cambio conformacional hacia el exterior que despliega la subunidad ɑ y aumenta su afinidad para captar ligandos externos (ej. activación de ɑLβ2 para unirse a ICAM en extravasación leucocitaria)

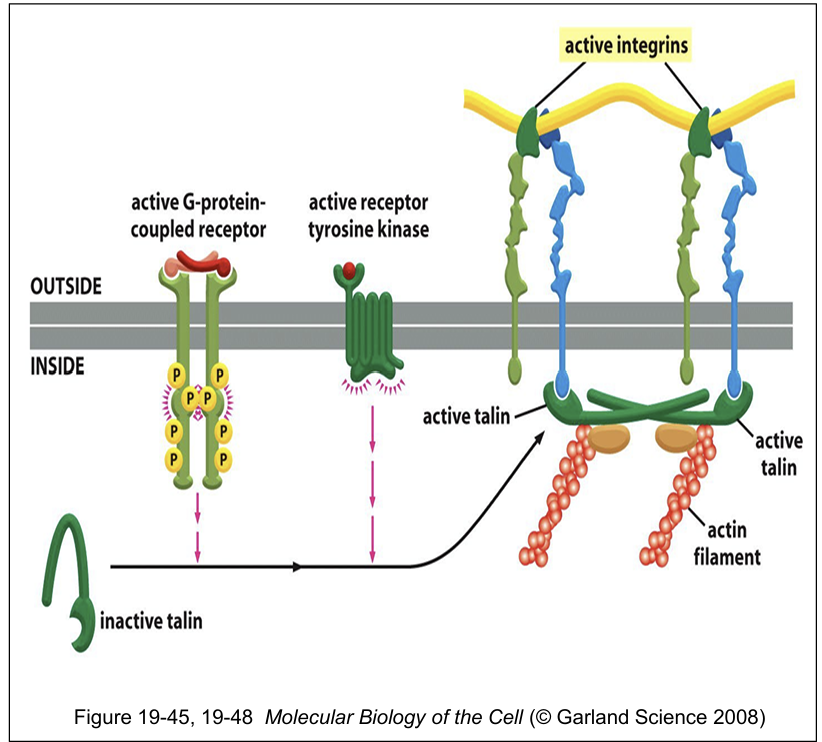
¿Qué papel juega la talina (talin) en la activación, reclutamiento y mecanosensibilidad de las integrinas?
Activación: La talina alterna entre una forma inactiva (plegada en el citosol) y activa (extendida). Es activada por señales químicas procedentes de receptores acoplados a proteínas G (GPCR) y receptores tirosina quinasa (RTK), uniéndose a la subunidad β y conectándola con actina
Reclutamiento: Las integrinas inactivas están repartidas al azar por toda la membrana; tras activarse por talina, se reclutan y concentran en una zona concreta de la membrana para interactuar con la MEC (como en contactos focales)
Proteína mecanosensible: La tensión mecánica generada por la contractilidad de actomiosina despliega dominios ocultos de la talina, favoreciendo el reclutamiento adicional de vinculina y reforzando el anclaje


¿Qué rutas de señalización intracelular activan las integrinas (cooperando con receptores tirosina quinasa) y qué respuestas celulares generan?
Adaptadores y quinasas: Tras unirse al ligando, reclutan adaptadores (talina, kindlina, paxilina, vinculina) y quinasas de señalización (como FAK —quinasa de adhesión focal—, ILK o quinasas de la familia Src)
Respuestas celulares: Proliferación celular (ciclo celular), supervivencia celular, organización del citoesqueleto, migración celular y transcripción génica

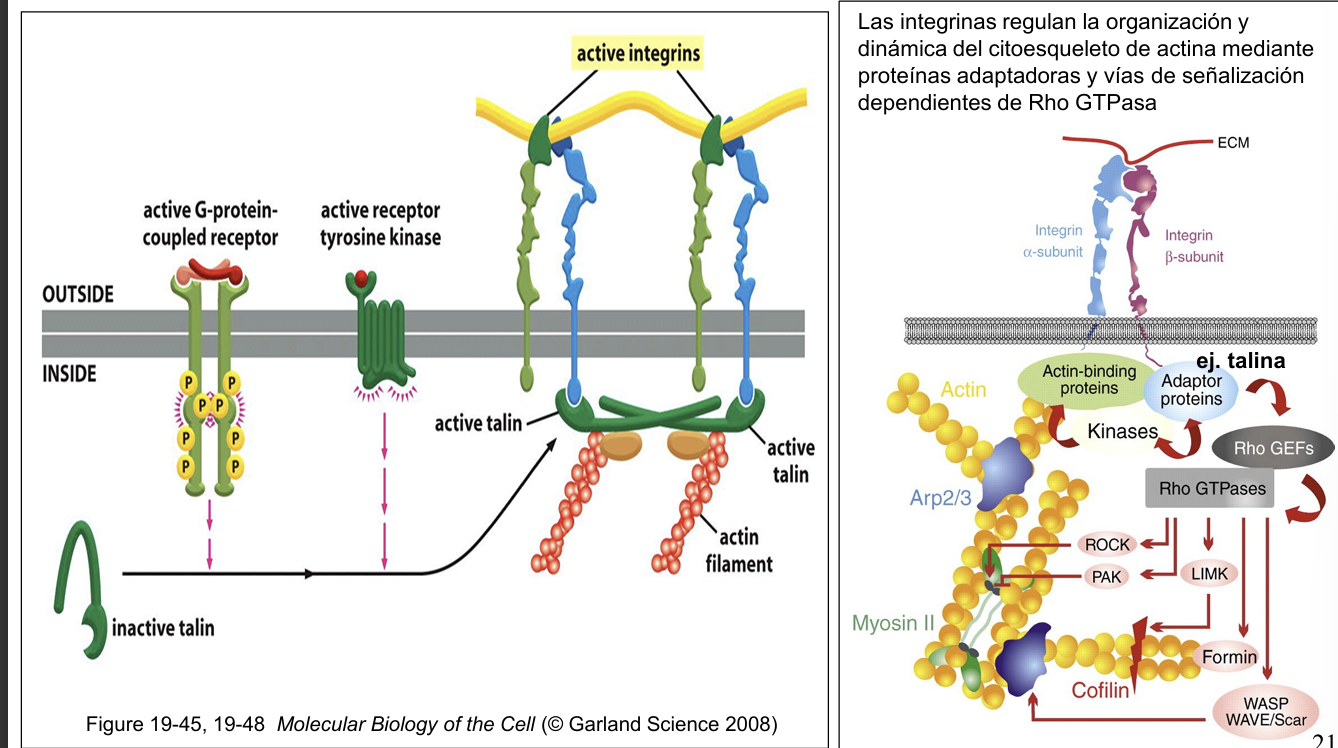
En la migración celular, ¿cómo regulan las integrinas la organización y dinámica del citoesqueleto de actina?
1. Señal de inicio: al unirse a la matriz, la integrina recluta proteínas adaptadoras (como la talina) y quinasas (como FAK y Src), que la conectan con la actina y activan señales
2. Activación de Rho GTPasas: esas señales activan Rho GEFs, que activan las Rho GTPasas (Rho, Rac, Cdc42)
3. Las Rho GTPasas controlan la actina por dos ramas:
Contracción y estabilidad: ROCK y PAK activan LIMK, que inactiva la cofilina (la proteína que desmonta actina), y regulan la miosina II, que contrae la actina
Formación de filamentos nuevos: la formina elonga filamentos lineales, y WASP/WAVE/Scar activan Arp2/3, que nuclea filamentos ramificados
Resultado: la célula puede empujar su frente (polimerización), anclarse a la matriz y contraerse para avanzar


¿Qué son las uniones intercelulares, dónde son más abundantes y qué funciones generales desempeñan?
Son estructuras que asocian las células entre sí (uniones célula–célula) o con la matriz extracelular (uniones célula–MEC), conectándose normalmente con el citoesqueleto intracelular
Son especialmente abundantes y variadas en los tejidos epiteliales (epitelios simples como los enterocitos con microvellosidades apicales, donde las células están muy pegadas con poca matriz entre ellas)
Cumplen 4 funciones principales: anclaje, oclusión, comunicación y señalización (todas las uniones acaban señalizando directa o indirectamente debido a su función estructural)

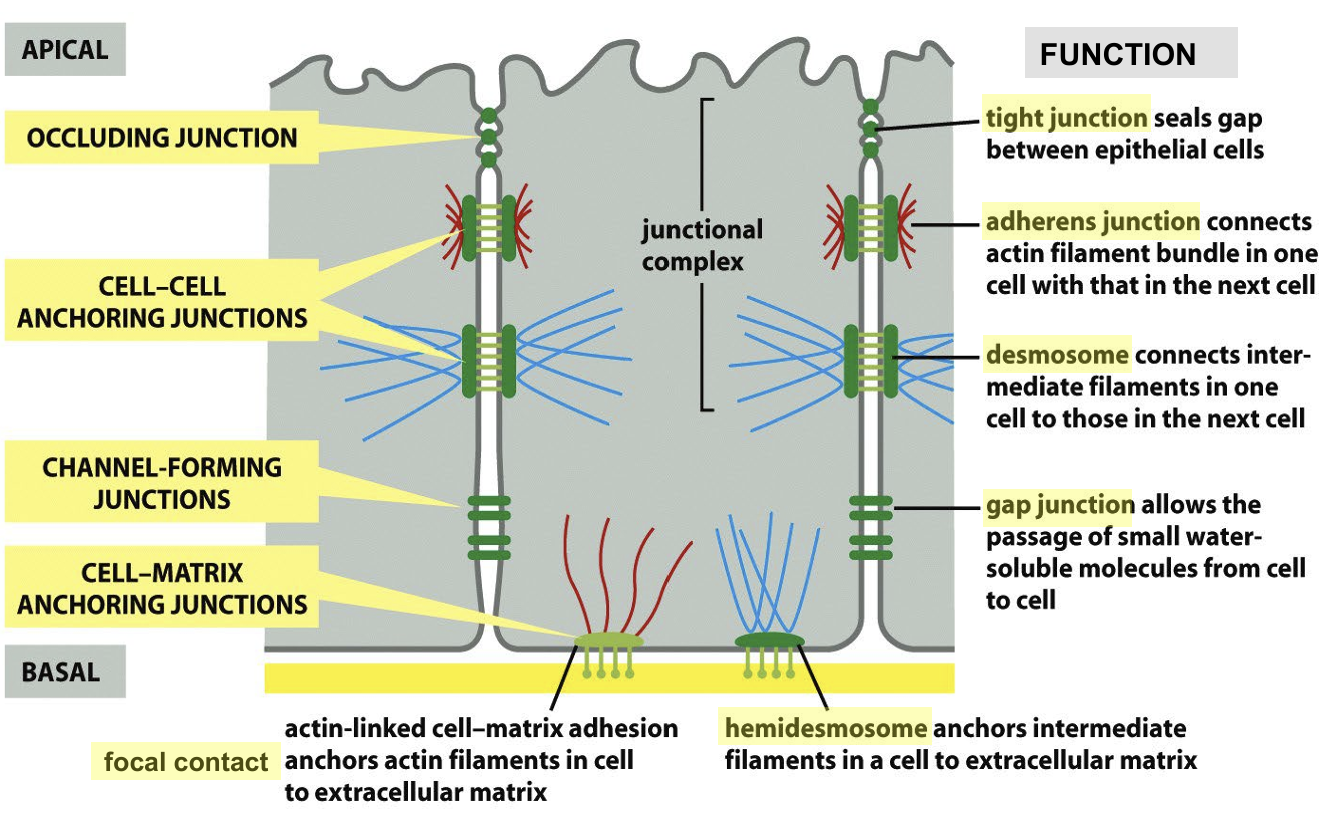
¿Cuáles son las uniones en la región apical de una célula epitelial (incluyendo el complejo de unión)?
Complejo de unión (junctional complex — zona apical/lateral superior):
Unión estrecha / de oclusión (tight junction): Más apical; sella el espacio intercelular entre células epiteliales y regula el transporte de sustancias
Unión adherente (adherens junction — anclaje): Conecta los haces de filamentos de actina de una célula con los de la célula vecina
Desmosoma (desmosome — anclaje): Conecta los filamentos intermedios de una célula con los de la célula adyacente (gran resistencia mecánica)


¿Cuáles son las uniones en la región media y basal (uniones célula-MEC) de una célula epitelial?
Zona lateral media: Unión comunicante / en hendidura (gap junction): Forma canales que permiten el paso directo de pequeñas moléculas hidrosolubles e iones de una célula a otra
Zona basal (uniones célula–MEC):
Adhesión célula–matriz unida a actina / Contacto focal: Ancla los filamentos de actina celulares a la matriz extracelular (lámina basal)
Hemidesmosoma: Ancla los filamentos intermedios (queratinas) de la célula a la matriz extracelular
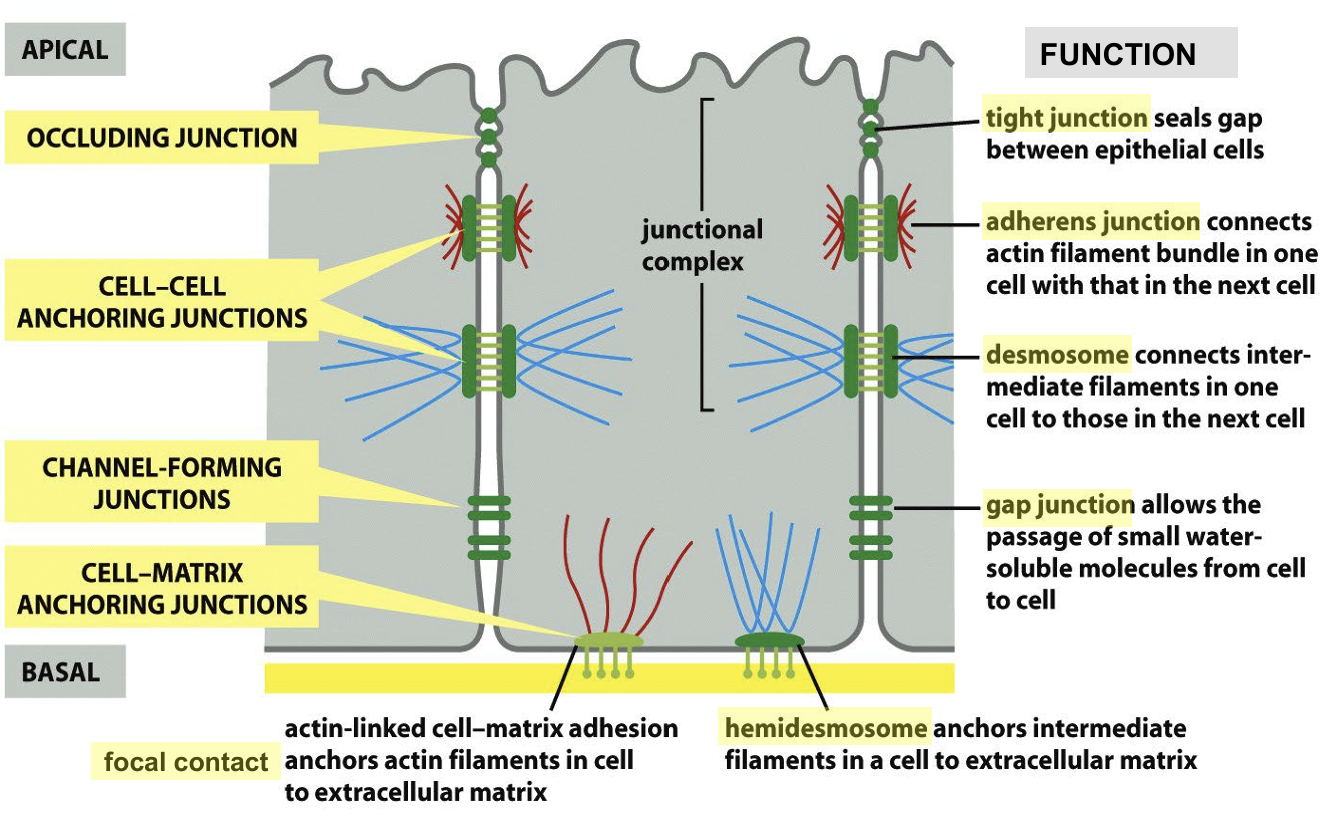

Según la Clasificación Funcional de las Uniones Celulares (Tabla 19-1), ¿cómo se dividen las uniones de anclaje (anchoring junctions)?
Sitios de unión a filamentos de actina:
Uniones célula–célula: uniones adherentes (adherens junctions)
Uniones célula–matriz: adhesiones célula–matriz unidas a actina / contactos focales
Sitios de unión a filamentos intermedios:
Uniones célula–célula: desmosomas
Uniones célula–matriz: hemidesmosomas
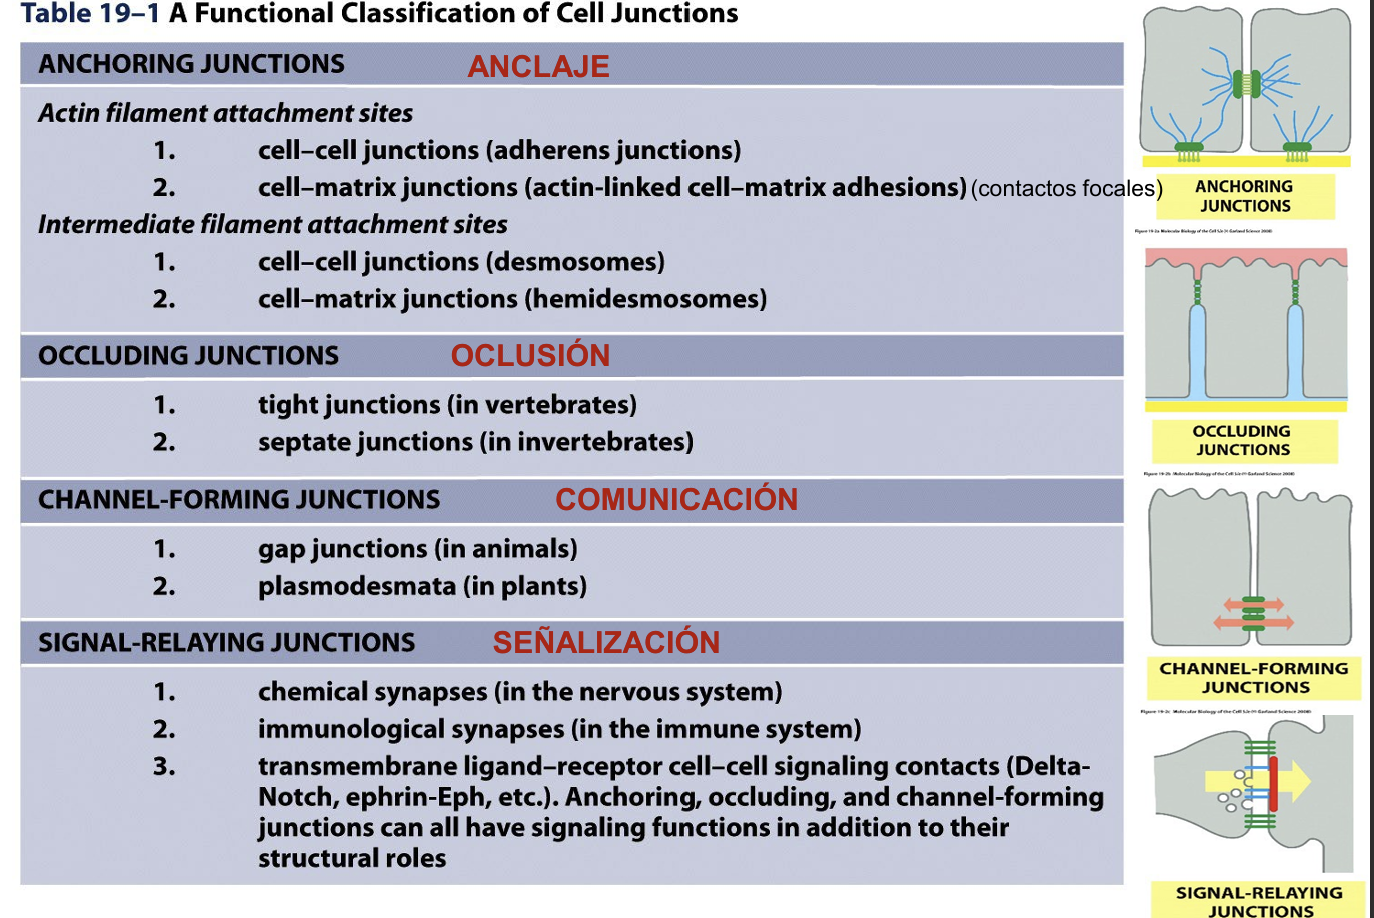

Según la Clasificación Funcional (Tabla 19-1), ¿qué tipos existen dentro de las uniones de oclusión, de comunicación y de señalización?
Uniones de oclusión (occluding junctions):
Uniones estrechas (tight junctions) — en vertebrados
Uniones septadas (septate junctions) — en invertebrados
Uniones formadoras de canales / comunicación (channel-forming junctions):
Uniones en hendidura (gap junctions) — en animales
Plasmodesmos (plasmodesmata) — en plantas
Uniones de transmisión de señales / señalización (signal-relaying junctions):
Sinapsis químicas (en el sistema nervioso)
Sinapsis inmunológicas (en el sistema inmune)
Contactos de señalización célula–célula ligando–receptor transmembrana (Nota: las uniones de anclaje, oclusión y canales también tienen funciones señalizadoras además de su rol estructural


¿Qué tres aspectos moleculares debemos analizar para clasificar los diferentes tipos de uniones de anclaje?
Tipo de unión espacial: Si es célula–célula o célula–matriz extracelular (MEC)
Proteínas transmembrana de adhesión: Cadherinas (para uniones célula–célula) o integrinas (para uniones célula–MEC)
Filamentos del citoesqueleto y proteínas de placa de anclaje: Si se anclan a filamentos de actina o a filamentos intermedios a través de sus proteínas adaptadoras intracelulares


¿Cuáles son los componentes moleculares de las uniones adherentes (adherens junctions) según la Tabla 19-2?
Tipo de unión: Célula–célula
Proteína de adhesión transmembrana: Cadherina (cadherina clásica, ej. E-cadherina)
Ligando extracelular: Cadherina de la célula vecina
Anclaje al citoesqueleto: Filamentos de actina
Proteínas de anclaje intracelulares (placa): ɑ-catenina, β-catenina, placoglobina (γ-catenina), p120-catenina, vinculina y ɑ-actinina


Detalla todos los componentes moleculares de los desmosomas (desmosomes) según la Tabla 19-2:
Tipo de unión: Célula–célula
Proteína de adhesión transmembrana: Cadherinas no clásicas / desmosómicas (desmogleína y desmocolina)
Ligando extracelular: Desmogleína y desmocolina de la célula vecina
Anclaje al citoesqueleto: Filamentos intermedios (ej. queratinas)
Proteínas de anclaje intracelulares: Placoglobina (γ-catenina), placofilina y desmoplaquina


Detalla todos los componentes moleculares de los contactos focales (actin-linked cell–matrix adhesion) según la Tabla 19-2:
Tipo de unión: Célula–matriz extracelular
Proteína de adhesión transmembrana: Integrina
Ligando extracelular: Proteínas de la matriz extracelular (fibronectina y otras)
Anclaje al citoesqueleto: Filamentos de actina
Proteínas de anclaje intracelulares: Talina, vinculina, ɑ-actinina, filamina, paxilina y quinasa de adhesión focal (FAK)


Detalla todos los componentes moleculares de los hemidesmosomas (hemidesmosomes) según la Tabla 19-2:
Tipo de unión: Célula–matriz extracelular
Proteína de adhesión transmembrana: Integrina ɑ6β4 y colágeno tipo XVII (BP180)
Ligando extracelular: Proteínas de la matriz extracelular (laminina y otras)
Anclaje al citoesqueleto: Filamentos intermedios (queratinas en epitelios)
Proteínas de anclaje intracelulares: Plectina y distonina (BP230)

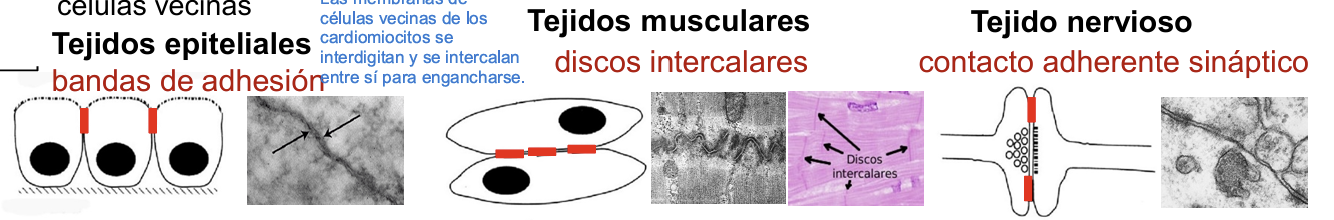
¿En qué tres grandes tipos de tejidos se encuentran las uniones adherentes y qué estructuras forman en cada uno?
Tejido epitelial: Forman bandas de adhesión (zonula adherens / cinturón adhesivo), donde los filamentos de actina de las microvellosidades conectan a su vez con los filamentos de actina de estas bandas mediante proteínas de unión a actina (ABPs)
Tejido muscular cardíaco: Forman parte de los discos intercalares, donde las membranas de cardiomiocitos vecinos se interdigitan e intercalan entre sí para engancharse mecánicamente.
Tejido nervioso: Forman uniones adherentes sinápticas (contacto adherente sináptico) y uniones autotípicas (consigo misma) en las fibras mielínicas


¿Cómo participan las bandas de adhesión en la morfogénesis embrionaria (plegamiento de láminas epiteliales)?
Son fundamentales durante la formación de los estadios de blástula y gástrula y en la organogénesis
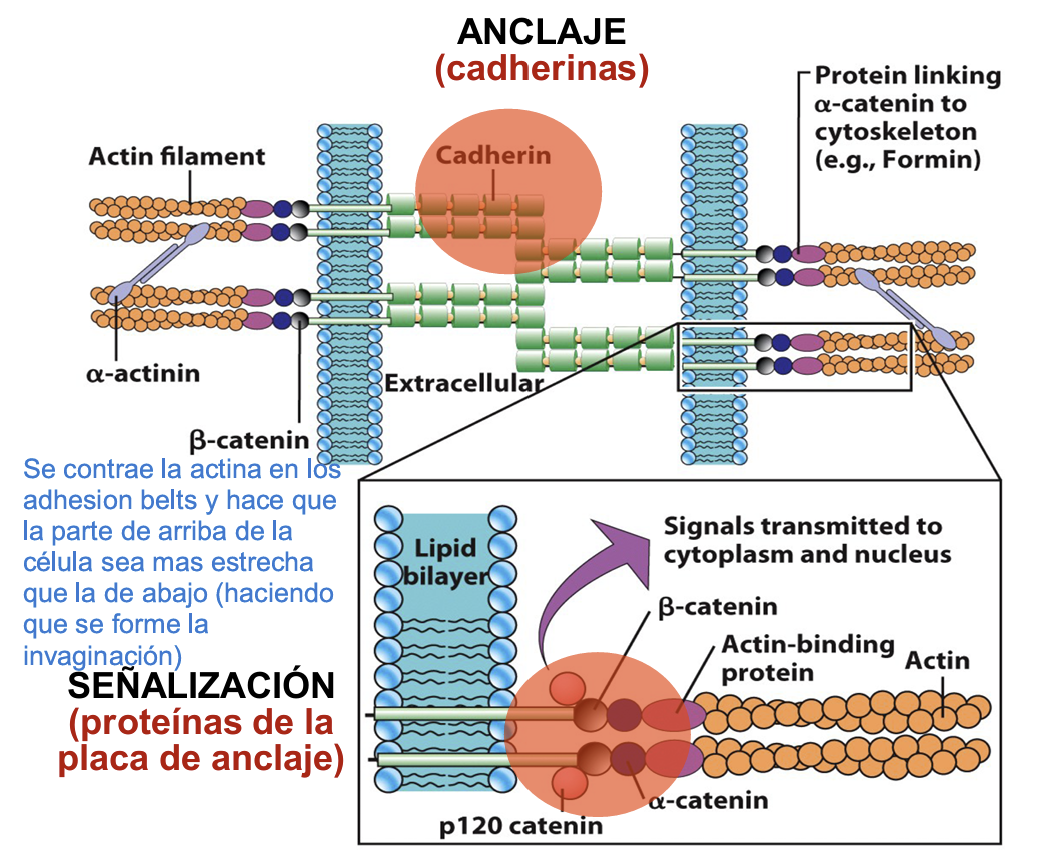
En regiones seleccionadas de una lámina epitelial, los haces de actina unidos a las cadherinas en las bandas de adhesión se contraen con ayuda de fibras de miosina (actomiosina)
Esta contracción apical estrecha la parte superior de las células respecto a la basal, generando una curvatura e invaginación/evaginación que estrangula el epitelio hasta desprenderse y formar un tubo epitelial (como el tubo neural)


¿Qué doble papel de anclaje y señalización cumplen los componentes de las uniones adherentes?
Anclaje y mantenimiento: Las cadherinas conectadas a la actina (vía β-catenina, ɑ-catenina, ɑ-actinina y proteínas enlazadoras como formina) proporcionan cohesión mecánica para la generación de tejidos en el desarrollo y su mantenimiento en el adulto
Señalización intracelular: Las proteínas de la placa de anclaje (como β-catenina y p120-catenina) pueden transmitir señales hacia el citoplasma y el núcleo (regulando la expresión génica y la reorganización del citoesqueleto)

¿Qué son los desmosomas, qué forma y tamaño tienen, y cuál es su función principal?
Son uniones de anclaje célula–célula mediadas por cadherinas no clásicas que conectan los filamentos intermedios de células vecinas
Tienen forma de disco (contactos puntuales discoidales) de aproximadamente 1 µm (unas décimas de µm) de diámetro y poseen un elevado grado de complejidad estructural
Confieren gran resistencia mecánica a los epitelios (como la epidermis, especialmente visibles en el estrato espinoso) y a otros tejidos sometidos a estrés mecánico (como el músculo cardíaco)


¿Qué se observa al analizar la ultraestructura de un desmosoma al microscopio electrónico de transmisión (TEM)?
Un espacio intercelular de unos 30 nm atravesado por líneas perpendiculares en forma de escalera («peldaños» de composición llamada desmoglea)
Una línea central electrodensa (más oscura) en el medio del espacio intercelular entre las dos células, que corresponde a la zona de superposición e interacción entre las cadherinas
En el lado citosólico de cada membrana, una placa de anclaje muy electrodensa (disco verde en esquemas) seguida de una zona menos densa donde se curvan los filamentos intermedios


Detalla todas las proteínas que componen un desmosoma y cómo se disponen espacialmente:
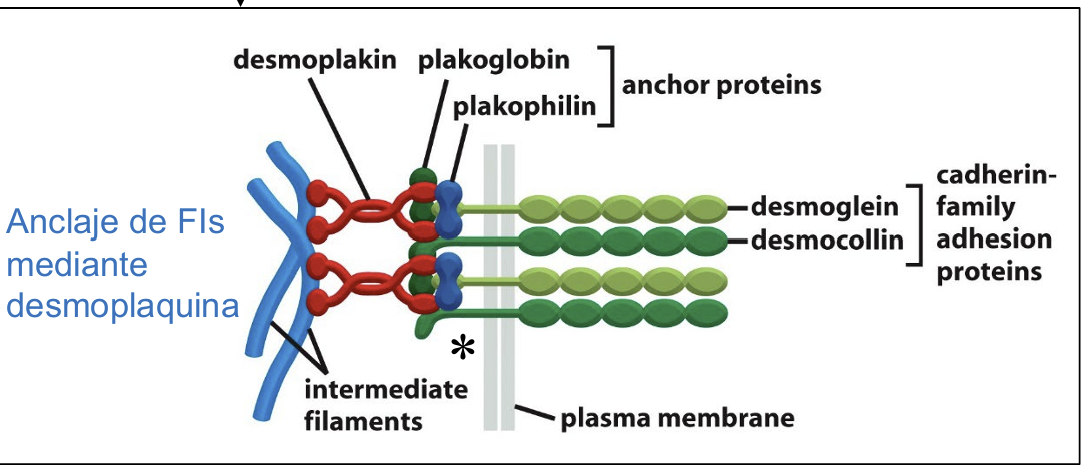
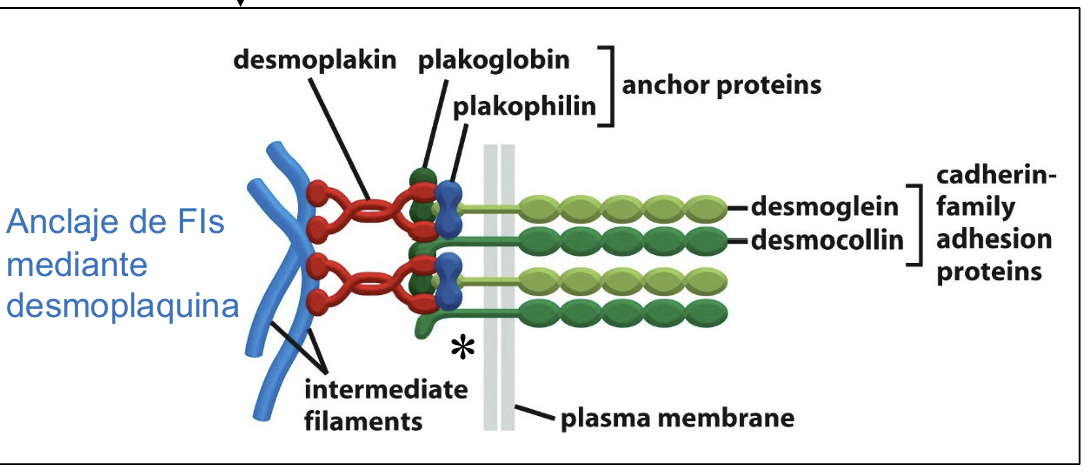
Proteínas transmembrana (exclusivas de desmosomas): Cadherinas específicas llamadas desmogleínas (Dsg) y desmocolinas (Dsc)
Proteínas de la placa de anclaje intracelular: Placoglobina y placofilina (PKP) (unen los extremos citosólicos de las cadherinas desmosómicas)
Proteína más externa de la placa: Desmoplaquina, que se encarga de anclar lateralmente los filamentos intermedios (queratinas en epitelios)
¿Cómo se unen los filamentos intermedios a los desmosomas y qué efecto mecánico produce esta disposición?
Los filamentos intermedios no terminan (no mueren) en las placas de anclaje, sino que se curvan y contactan lateralmente con la desmoplaquina para continuar sucesivamente conectando con el siguiente desmosoma
Así se crea una red tridimensional continua que conecta el interior celular con el exterior y une todas las células epiteliales entre sí, funcionando como cuerdas que confieren una enorme resistencia a la tensión


¿Cómo varía el patrón de expresión de las proteínas desmosómicas a lo largo de las distintas capas de la epidermis?
Conforme los queratinocitos migran y se diferencian desde la capa basal hacia las capas superficiales (estrato espinoso, granuloso y córneo), cambia la composición y concentración de isoformas desmosómicas:
Constantes en todas las capas: Placofilina 3 (PKP3), placoglobina y desmoplaquina se mantienen en la misma proporción en todos los estratos
Aumentan hacia la superficie: Dsg 1, Dsg 4, Dsc 1 y PKP 1 aumentan su presencia al subir hacia el estrato córneo
Disminuyen hacia la superficie: Dsg 2 y Dsc 2 (y Dsg 3 / Dsc 3 / PKP 2 en capas basales-medias) son abundantes en las capas basales y disminuyen progresivamente hasta desaparecer en los estratos superficiales

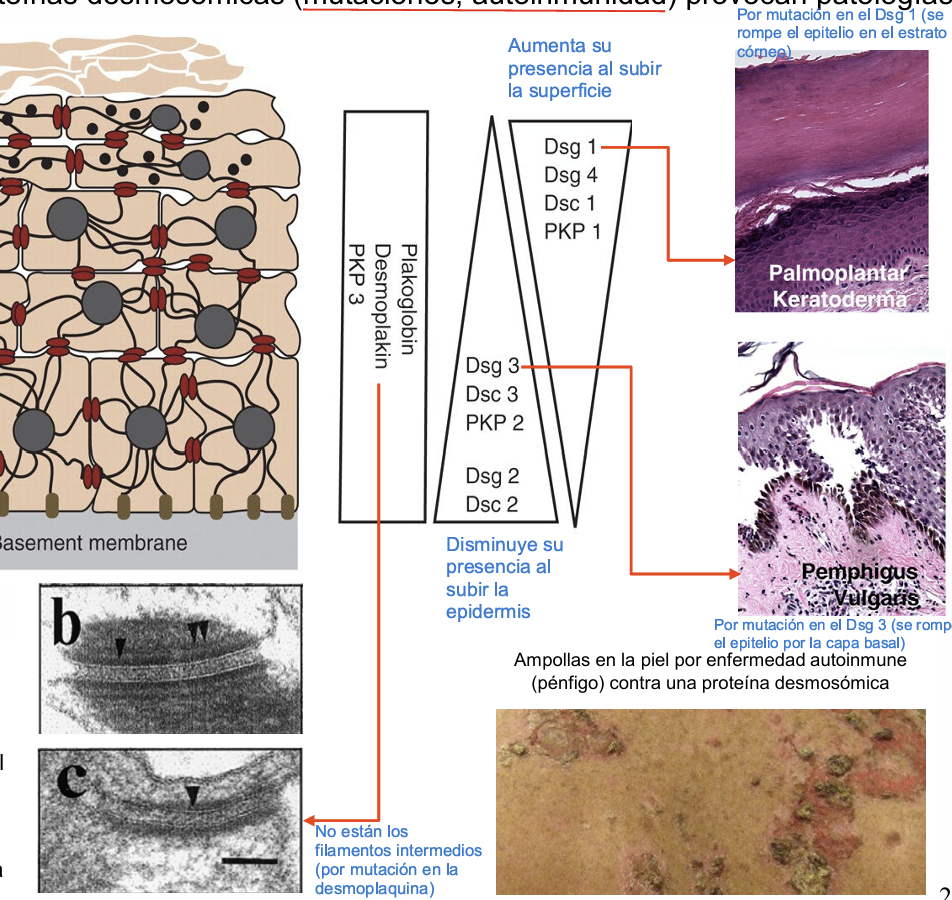
¿Qué patologías causan las mutaciones o ataques autoinmunes contra Dsg1, Dsg3 y Desmoplaquina?
Falta / mutación de Dsg1: Provoca rotura de las uniones en la zona más superficial de la epidermis (enfermedades más leves como la queratodermia palmoplantar, que afecta a palmas de las manos y plantas de los pies)
Falta / mutación / autoinmunidad contra Dsg3: Se rompen las conexiones intercelulares en la capa basal cerca de la lámina basal, originando cavidades y ampollas en la piel; se anula la impermeabilización y se evaporan/pierden líquidos, pudiendo ser mortal (ej. enfermedad autoinmune pemphigus vulgaris o pénfigo)
Mutación en desmoplaquina: Impide el anclaje de los filamentos intermedios al desmosoma, causando alteraciones graves en tejidos sometidos a tensión como el músculo cardíaco: cardiomiopatía arritmogénica del ventrículo derecho (ARVC)

¿Qué son los hemidesmosomas y cuál es su función?
Son uniones de anclaje célula–matriz extracelular (MEC) entre las células epiteliales y la lámina basal, implicadas en la integridad, resistencia del tejido y señalización
Diferencia con desmosomas: Aunque morfológicamente parecen «medios desmosomas» (semidiscos), molecularmente NO contienen cadherinas ni las mismas proteínas de placa

¿Cuál es la composición de los hemidesmosomas?
Proteínas transmembrana (receptores de laminina de la MEC): Integrina ɑ6β4 y colágeno transmembrana tipo XVII (BP180)
Proteínas de placa intracelular (plaquinas): Plectina (de la familia MAP) y BP230 (distonina), que conectan con los filamentos intermedios (queratinas)
Componentes basales asociados: Laminina 5 (filamentos de anclaje) y colágeno IV, perlecano, nidógeno y colágeno VII (fibrillas de anclaje) en la membrana basal


¿Qué son los contactos focales y cuáles son sus características principales?
Son complejos multiproteicos (hasta 100 proteínas) y subcelulares de adhesión célula–MEC que conectan la matriz extracelular con los filamentos de actina
Características clave: Son uniones puntuales, discretas, muy dinámicas y transitorias (efímeras) que se ensamblan y desensamblan continuamente (estado de flujo constante)
Funciones: Transmiten fuerzas mecánicas (generando tracción para la locomoción / motilidad celular y deformando la MEC) y actúan como sensores de señales reguladoras que afectan a la adhesión, morfología, ciclo celular, proliferación, supervivencia y diferenciación

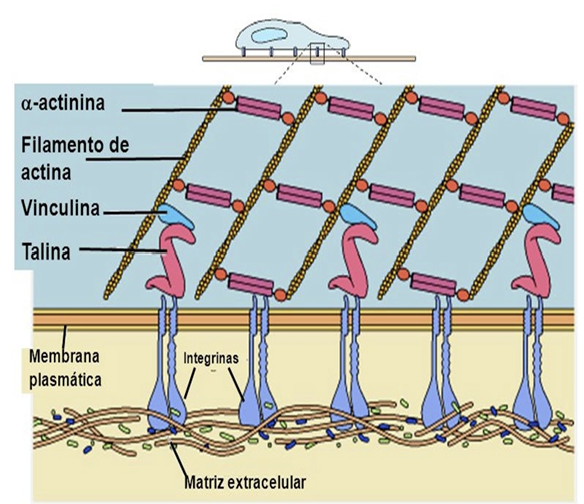
¿Cómo se organiza la arquitectura molecular de un contacto focal (de la MEC al citoesqueleto)?
MEC: Proteínas como fibronectina y colágeno
Membrana plasmática: Heterodímeros de integrinas (ɑ/β)
Proteínas adaptadoras intracelulares: La subunidad β de la integrina se une a la talina (que enlaza con vinculina y esta a los filamentos de actina) y a ɑ-actinina (que une directamente los filamentos de actina y los agrupa en haces)
Señalización y motilidad: Participan paxilina, FAK (quinasa de adhesión focal) y Src; además, se intercala miosina II entre los haces de actina generando contracción y trabajo mecánico para el avance celular

¿Qué otra función tienen los contactos focales aparte de anclar la célula a la matriz?
También detectan fuerzas mecánicas y rigidez del entorno (mecanosensibilidad) y las convierten en señales intracelulares que modifican el citoesqueleto, la expresión génica y el comportamiento de la célula
Esto lo consiguen mediante dos mecanismos: primero refuerzan el contacto focal (fibras de estrés) con Rho y talina y luego este estímulo mecánico activan quinasas que desencadenan cascadas hasta el núcleo

¿Cómo favorecen las proteínas Rho la formación de contactos focales?
Antes del contacto, las integrinas están repartidas por toda la membrana
Rho (vía ROCK) favorecen la fosforilación y formación de filamentos contráctiles de acto-miosina
Esa contracción provoca el reclutamiento y la agregación de integrinas
Así el contacto focal madura hasta formar fibras de estrés


¿Qué le ocurre a la fibronectina y a la talina cuando se aplica fuerza mecánica (estiramiento)?
Ambas cambian de conformación y se despliegan
La fibronectina expone sitios de unión que le permiten formar fibrillas
La talina expone sitios ocultos de unión para la vinculina


¿Qué papel tiene la vinculina en la maduración del contacto focal?
Se recluta a los sitios de la talina que se han desplegado por la fuerza
Enlaza más haces de actina, separados a la distancia óptima para que entre la miosina
Se forman así fibras de estrés contráctiles que permiten el desplazamiento celular


¿Qué hacen las quinasas FAK y Src en los contactos focales?
El estímulo mecánico recibido en los contactos focales activa a las quinasas FAK (Focal Adhesion Kinase) y Src, reclutadas mediante paxilina
Estas quinasas desencadenan cascadas de señalización intracelular que transmiten la señal hasta el núcleo, regulando la transcripción del ADN (expresión génica) y el comportamiento celular


¿Qué demostró el experimento de Engler et al. (2006)?
Las células madre mesenquimáticas detectan la rigidez del sustrato de colágeno I donde crecen
Su linaje de diferenciación depende de esa rigidez, sin cambiar las señales bioquímicas
Blanda (0,1-1 kPa): neuronal
Intermedia (8-17 kPa): muscular
Muy rígida (25-40 kPa): ósea
Esto tiene aplicación biomédicas muy interesantes ya que es fundamental para la ingeniería de tejidos y ayuda a explicar por qué los bultos del cáncer de mama son duros (las células tumorales cambian la rigidez de la matriz)


¿Qué son las uniones de oclusión, dónde se localizan y qué denominaciones reciben según el grupo animal?
Son contactos especializados exclusivos entre células epiteliales que forman un cinturón de sellado del espacio intercelular en la porción más apical de los complejos de unión (por encima de las uniones adherentes y desmosomas)
Actúan como una barrera de permeabilidad selectiva que regula el paso paracelular de agua y solutos
Son abundantes en epitelios de revestimiento, especialmente los que delimitan cavidades y conductos excretores/secretores
Denominaciones: En vertebrados se llaman uniones estrechas, uniones herméticas o tight junctions; en invertebrados se llaman uniones septadas (septate junctions)


¿Qué demostraron los experimentos de permeabilidad con lantano en el epitelio intestinal?
Se colocó una molécula trazadora fluorescente o electrodensa (lantano, muy oscuro en microscopía) a un lado del epitelio:
Si se añade en el lado apical (lumen), el lantano penetra hasta un punto exacto entre las células donde se detiene bruscamente (la unión se ve clarita porque no pasa)
Si se añade en el lado basolateral, ocurre lo contrario: el lantano difunde hacia arriba hasta el mismo punto exacto y no puede pasar hacia el lumen
Conclusión: Las uniones estrechas sellan herméticamente el espacio intercelular impidiendo la difusión libre en ambos sentidos


¿Qué son los cordones selladores y cómo se observan mediante criofractura y microscopía electrónica (TEM)?
Son una red ramificada de hileras de partículas proteicas transmembrana que rodean a las células en forma de banda, uniendo las membranas plasmáticas adyacentes
En criofractura: Se ven como líneas ramificadas anastomosadas entre sí: en la cara P tienen forma de cresta/surco con bolitas proteicas, mientras que en la cara E tienen forma de valle/surco complementario
En TEM (corte ultrafino): Se observan como puntos de contacto focales (focal connections) donde las hojas externas de las dos membranas plasmáticas se fusionan o acercan al máximo, anulando el espacio intercelular
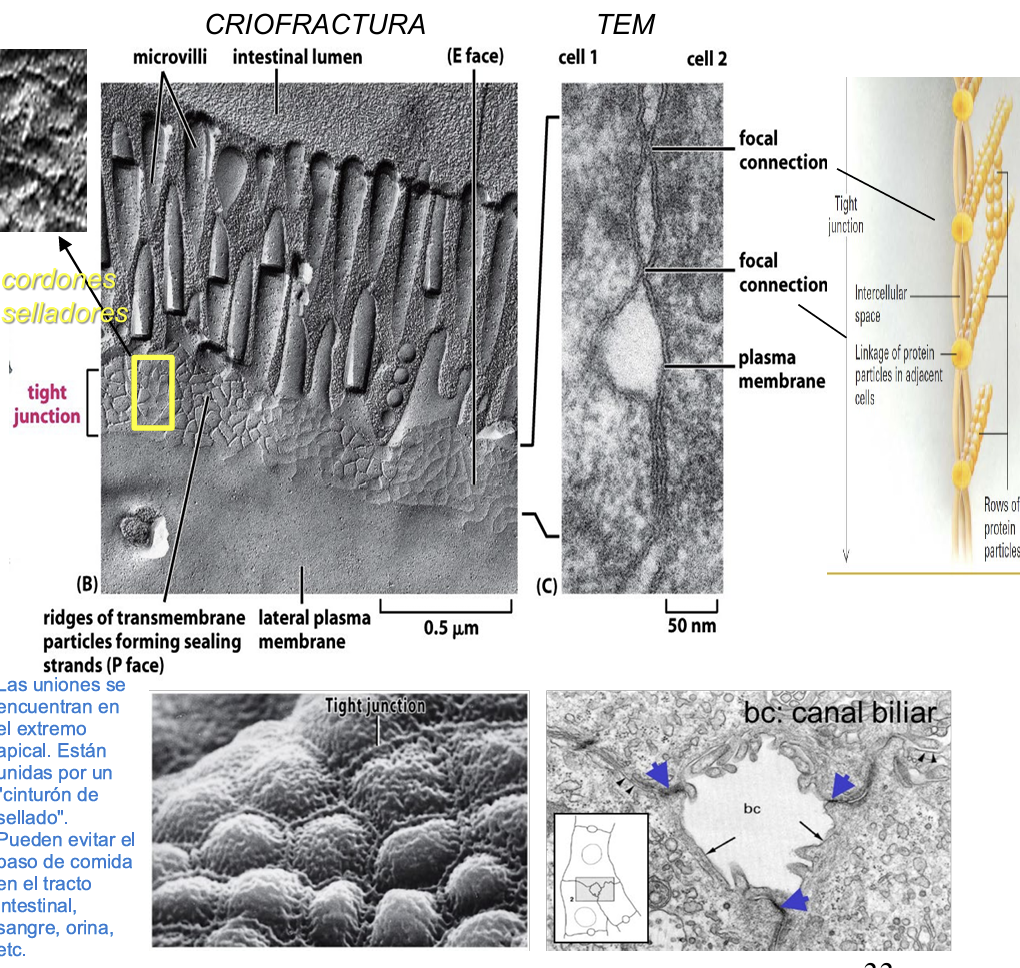
¿Qué ejemplos fisiológicos importantes ilustran la función de sellado de las uniones estrechas?
Canalículo biliar (bc): Los hepatocitos se unen entre sí formando un pequeño lumen llamado canalículo biliar donde secretan la bilis; las uniones de oclusión sellan este lumen para evitar que la bilis se escape hacia los espacios intercelulares o la sangre
Otros ejemplos: Evitan el paso indiscriminado de sustancias en el tracto intestinal, sangre (barrera hematoencefálica), orina (vejiga/túbulos renales), etc

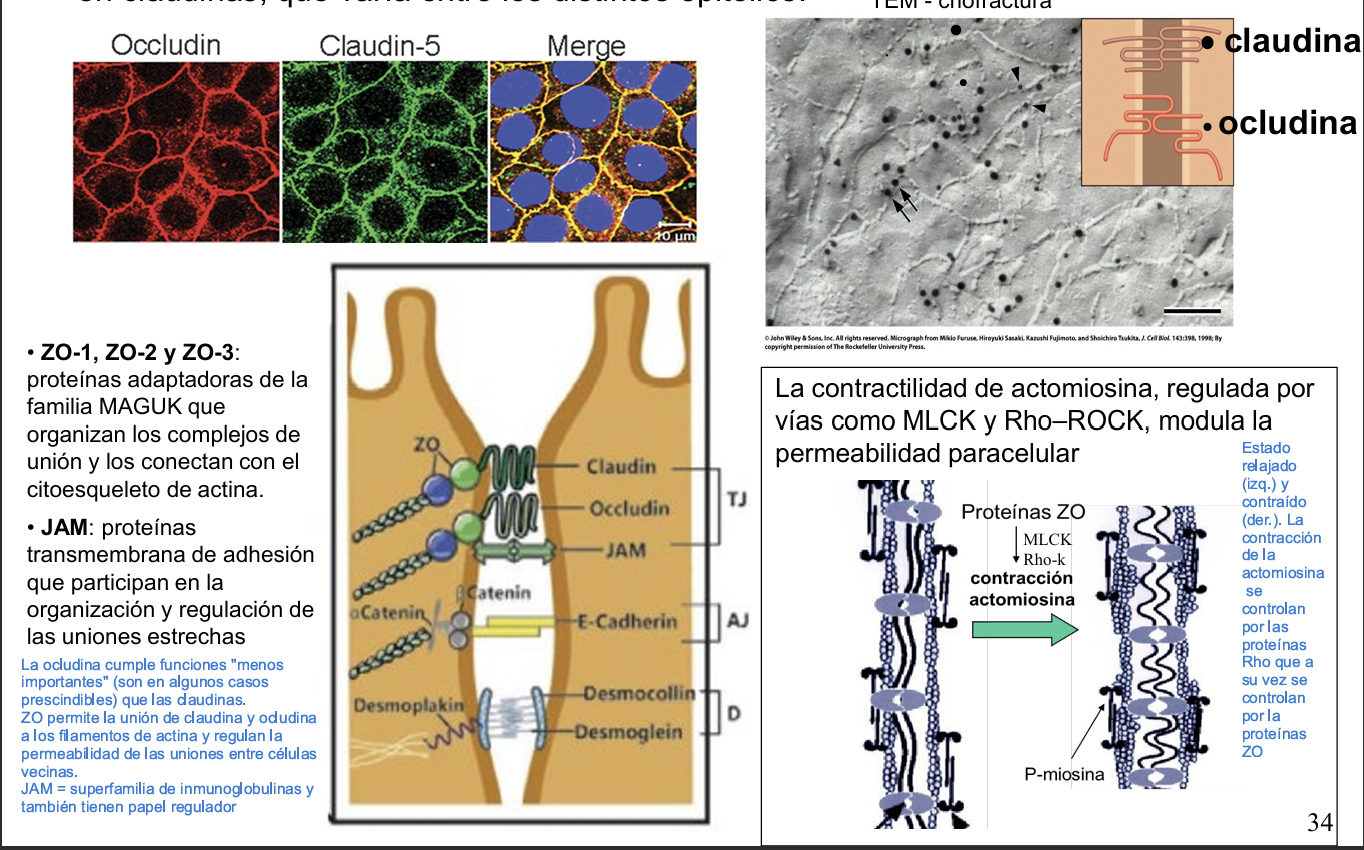
¿Cuáles son las dos proteínas transmembrana mayoritarias de los cordones selladores y qué función cumple cada una?
Claudinas: Son los componentes principales de los cordones selladores. La especificidad tisular de la permeabilidad (qué iones, agua o pequeñas moléculas apolares pueden pasar por vía paracelular) depende de la composición específica de claudinas del tejido. Las mutaciones en claudinas causan enfermedades
Ocludinas: Participan en los cordones selladores estableciendo contacto y conexión entre las células. Cumplen funciones menos críticas para la integridad básica (en algunos casos prescindibles y sus mutaciones no suelen causar las mismas patologías que las claudinas)


¿Qué son las proteínas JAM (Junction-Associated Membrane proteins) en las uniones estrechas?
Son proteínas transmembrana de adhesión pertenecientes a la superfamilia de las inmunoglobulinas (IgSF)
Participan en la organización y regulación de las uniones estrechas e interaccionan con las células (como leucocitos) que atraviesan las uniones estrechas durante procesos como la extravasación
