udvikling af biofilm, celle-celle signalering og metabolisme
 Call Kai
 Learn
 Practice Test
 Spaced Repetition
 Match
 Flashcards
 Knowt Play
1/53

There's no tags or description
Looks like no tags are added yet.
54 Terms
hvad er pelliklen og hvad består den af?
Pelliclen er en meget tynd proteinfilm, der dannes på emaljeoverfladen få minutter efter tandrensning.
Den dannes af stoffer fra spyttet:
Består især af glykoproteiner. men også fosfoproteiner, statherin, prolinrige peptider, svovlholdige aminosyrer og lipider
hvad er pelliklens str og hvor lang tid tager den om at blive dannet
Er færdigdannet efter ca. 90-120 minutter.
Er ca. 20-700 nm tyk.
kan pelliklen fjernes?
Tandbørstning fjerner ikke pelliclen helt.
Professionel tandrensning kan fjerne den.
Efter fjernelse dannes den hurtigt igen.
hvad gør pelliklen overordnet?
Pelliclen fungerer som et lag mellem emaljen og bakterierne.
Den:
beskytter emaljen mod syreangreb og slid
fungerer som holder for bakterier. bakterier binder til pelliklen
hvordan udvikles biofilm?
Emaljen dækkes af pellicl.
De første bakterier binder sig til pelliclen.
Flere bakterier binder sig både til pelliclen og til hinanden.
Bakterierne danner et organiseret samfund = biofilm (plak).
hvilke vigtige funktioner har pelliklen?
1. Diffusionsbarriere (fysisk barriere)
Pelliclen danner et tyndt lag oven på emaljen.
Det betyder, at stoffer ikke så nemt kan bevæge sig frem og tilbage mellem emaljen og mundhulen.
Fx:
Syrer får sværere ved at nå emaljen.
Calcium og fosfat fra spyttet holdes tæt på tandoverfladen.
Altså: Pelliclen beskytter emaljen mod direkte syreangreb.
2. Buffer og mineralreservoir
Pelliclen indeholder blandt andet:
calcium (Ca²⁺)
fosfat (PO₄³⁻)
Det er de samme stoffer, som findes i hydroxyapatit i emaljen.
Derfor kan pelliclen:
binde calcium og fosfat tæt ved tanden
modvirke demineralisering
hjælpe remineralisering
Altså: Pelliclen hjælper med at beskytte og reparere emaljen.
3. Bestemmer bakteriers kolonisering
Pelliclen indeholder receptorer, som bakterier kan binde sig til.
Ikke alle bakterier kan binde sig til alle receptorer.
Derfor bestemmer pelliclens sammensætning:
hvilke bakterier der kan sætte sig først
hvordan biofilmen udvikler sig
Altså: Pelliclen fungerer som "landingsplads" for bakterier og er med til at bestemme sammensætningen af den orale mikrobiota.
hvilke kræfter påvirker pelliklen og bakterierne?
kaldes reversibel adhærence fase 1
Både bakterien og pelliclen er normalt negativt ladede.
Derfor opstår der en elektrostatiske frastødning:
negativ + negativ → frastøder hinanden
Så bakterien kan ikke bare sætte sig fast med det samme.
Samtidig findes der dog svage tiltrækningskræfter, de såkaldte van der Waals-kræfter.
de skyldes små, midlertidige dipoler i molekylerne
de trækker bakterien mod pelliclen
Når bakterien stadig er lidt væk fra pelliclen, er bindingen svag og reversibel. Derfor kaldes det den reversible adhærencefase.
Det betyder:
bakterien kan hæfte sig løst til overfladen
bakterien kan stadig skylles væk af spyt eller mekaniske kræfter
Først senere kommer specifikke adhesiner og receptorer i kontakt, og så bliver bindingen stærk og irreversibel.
forklar irreversibel adhærence fase 2
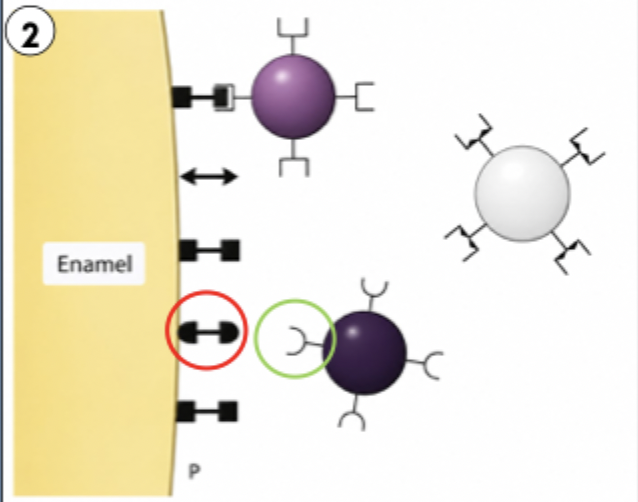
Her er bakterien kommet så tæt på pelliclen (ca. 10-20 nm), at de specifikke bindinger kan dannes.
I den reversible fase blev bakterien kun holdt fast af svage fysiske kræfter. Nu sker der noget nyt:
Bakterien har nogle overflademolekyler, som kaldes adhesiner.
Pelliclen har receptorer (ofte salivakomponenter i pelliclen).
Adhesinerne binder specifikt til receptorerne, lidt som en nøgle der passer til en lås.
Når denne binding opstår:
bakterien sidder fast på tanden
spyttet kan ikke længere så let skylle den væk
adhæsionen bliver irreversibel (permanent)
hvilke muligheder er der for bakterien at sætte sig fast
I den irreversible adhærencefase kan receptoren sidde to forskellige steder:
a) Værtskomponenter, oftest salivakomponenter
Her sidder receptoren i pelliclen. Pelliclen består af proteiner og glykoproteiner fra saliva.
Eksempel:
Bakterien har et adhesin.
Pelliclen har en receptor.
Adhesinet binder til receptoren.
b) Bakteriekomponenter
Her binder en bakterie ikke til pelliclen, men til en anden bakterie, som allerede sidder fast.
hvad består receptorerne af?
I den irreversible adhærencefase er receptorerne ofte en del af pelliclen.
Pelliclen består af forskellige salivakomponenter, fx:
glykoproteiner
fosfoproteiner
svovlholdige aminosyrer
statherin
prolinrige proteiner/peptider
amylase
lysozym
Disse molekyler stikker små strukturer ud, som bakteriernes adhesiner kan genkende og binde til.
hvis der er prolin rige peptider i spyttet hvorfor binder bakterien så ikke bare til det i spyttet i stedet for i pelliklen
En kryptitop er en receptor, som er "skjult" på et protein.
Når PRP ligger frit i saliva:
er receptoren skjult
bakteriens adhesin kan ikke binde til den
Når PRP adsorberes til emaljen og bliver en del af pelliclen:
proteinet ændrer form (konformation)
den skjulte receptor blottes
der opstår en kryptitop
Nu kan bakteriens adhesin genkende receptoren og binde.
beskriv et eksempel på PRP princippet bare med fibronectin
Fibronectin findes i saliva og væv.
S. mitis-gruppen kan ikke binde til frit fibronectin.
Men hvis fibronectin binder til kollagen, fx ved en læsion:
fibronectin ændrer struktur
nye receptorer eksponeres
S. mitis kan nu binde
beskriv et eksempel på PRP princippet bare med muciner
Muciner er store glykoproteiner med mange kulhydratkæder.
Yderst på disse kæder sidder ofte sialinsyre.
Nogle bakterier genkender specifikt sialinsyre:
S. mitis binder til sialinsyre på epitelceller.
S. sanguinis binder til sialinsyre i pelliclen.
Hvis et enzym (neuraminidase) fjerner sialinsyren:
sialinsyren forsvinder
galaktose nedenunder blotlægges
Nu kan andre bakterier binde:
Actinomyces
flere gram-negative stave
hvad er adhæsiner
Adhæsiner er ofte proteiner på bakteriens overflade.
De gør, at bakterien kan binde sig til fx tænder, slimhinder eller andre celler.
Uden adhæsion bliver bakterier lettere skyllet væk af spyt, slim osv.
beskriv gram positive bakteriers adhæsiner
Har typisk adhæsiner som overfladeproteiner.
Teichoinsyrer og lipoteichoinsyrer kan også bidrage til binding.
beskriv gram negative bakteriers adhæsiner
Har overfladeproteiner som adhæsiner.
Derudover findes lipopolysakkarid (LPS) i den ydre membran.
hvilke andre typer adhæsiner findes?
Pili: længste trådformede strukturer. Kan fungere som adhæsiner ved at binde til værtsceller. 1-2 mikrometer
Fibriller: kortere og tyndere udløbere, hjælper også med adhæsion. mindre end 1 mikrom
Fimbriae: meget små hårlignende strukturer, som især bruges til at hæfte bakterien fast. mindre end 0,5 mikrom
beskriv hvilke bakterier, der koloniserer tandoverfladen efter dannelsen af pelliklen.
De første timer:
De vigtigste pionerbakterier er fakultativt anaerobe streptokokker.
Især S. mitis-gruppen dominerer tidligt.
Efter de første timer:
Flere bakterier kan nu hæfte sig til de allerede fastsiddende streptokokker.
Her ses bl.a.:
Actinomyces naeslundii
Neisseria
Haemophilus parainfluenzae
beskriv hvordan plak/biofilm udvikler sig efter de første pionerbakterier har sat sig fast på tanden
Pionerbakterierne begynder at dele sig og danner små grupper kaldet mikrokolonier.
Samtidig bliver bakterierne omgivet af et lag ekstracellulære polysakkarider (sukkerstoffer) og komponenter fra spyt. Dette fungerer som en slags "lim" og matrix omkring bakterierne.
Derefter:
Andre bakterier binder sig til pionerbakterierne i stedet for direkte til tanden.
Dette kaldes coadhesion.
Bakterierne kan også binde sig til de polysakkarider, som allerede er dannet.
beskriv tidsforlæbet over biofilmen
bakteriekolonier: 8 timer - 3 døgn
sammenhængende biofilm: 1-3 døgn
beskriv den videre udvkiling af biofilm
De ekstracellulære polysakkarider (matrixen omkring bakterierne) bliver mere udviklede og organiserede.
Flere og flere bakteriearter kommer til, så biofilmen bliver mere kompleks.
"Klimakssamfund 7-14-21 dage":
Efter ca. 7-14-21 dage er biofilmen blevet et modent bakteriesamfund med mange forskellige arter.
Sammensætningen ændrer sig dog hele tiden, derfor står der "dynamisk".
hvordan kommunikerer bakterien?
Quorum sensing er bakteriers måde at "snakke sammen" på.
Hver bakterie udskiller små signalmolekyler, kaldet autoinducere (her nævnes AI-2).
Når der er få bakterier, spredes signalmolekylerne væk, så koncentrationen bliver lav.
Derfor opfører bakterierne sig individuelt.
Når der kommer mange bakterier:
Der udskilles mere og mere signalstof.
Koncentrationen stiger omkring bakterierne.
Bakterierne registrerer signalstoffet og "forstår", at de er mange samlet.

Når koncentrationen når en bestemt tærskel:
Der sker ændringer i genekspressionen.
Mange bakterier tænder eller slukker de samme gener samtidig.
Dermed kan de opføre sig som en gruppe.
beskriv hvordan Aggregatibacter actinomycetemcomitans (Aa) bruger signalmolekylet AI-2 til kommunikation.
Når koncentrationen af AI-2 stiger, øges produktionen/aktiviteten af leukotoksin.
AI-2 giver tredoblet leukotoksisk aktivitet.
beskriv hvordan Porphyromonas gingivalis bruger quorum sensing til kommunikation.
Quorum sensing fører til øget produktion af arginin-proteaser
Det forbedrer bakteriens adgang til jern, som den har brug for til vækst.
beskriv quorum sensing for s. mutans
signalstoffet CSP (Competence Stimulating Peptide) bruges.
Mange S. mutans er til stede.
Alle bakterierne producerer og frigiver CSP til omgivelserne.
CSP ophobes gradvist, fordi der er mange bakterier, der udskiller det.
Når koncentrationen af CSP når en tærskelværdi, binder CSP til receptoren ComD på bakteriernes overflade.
Dette aktiverer regulatoren ComE, som tænder en række kompetence-gener.
En del af bakterierne bliver nu kompetente. Det betyder, at de får evnen til at optage frit DNA fra omgivelserne.
Samtidig stimulerer CSP autolyse/fratricide hos nogle andre bakterier. De går til grunde og frigiver deres DNA.
De kompetente bakterier optager det frigivne DNA.
På den måde kan S. mutans erhverve nye gener fra sine omgivelser.
beskriv en anden form for bakteriel kommunikation
Her handler det om overførsel af plasmider mellem bakterier:
Plasmidfrie bakterier frigiver et feromon (signalstof).
Feromonet er specifikt for en bestemt type plasmid, så signalet kun opfanges af bakterier med det relevante plasmid.
En bakterie med plasmidet registrerer signalet.
Dette aktiverer gener på plasmidet, som gør bakterien klar til konjugation.
Ved direkte cellekontakt overføres en kopi af plasmidet til den plasmidfrie bakterie.
vigtigt:
Når modtageren har fået plasmidet, begynder den at producere plasmidkodede hæmmere.
Hæmmerne dæmper responsen på feromonet.
Derfor fortsætter bakterien ikke med at signalere, at den mangler plasmidet.
beskriv adhæsion via lektinbindinger
den egentlige adhæsion sker ofte via lektinbindinger.
Lektiner er kulhydratbindende proteiner.
Et bakterieprotein binder til et kulhydrat på værten eller i pelliklen.
hvad er de første pionerbakterier
De første pionerbakterier binder sig til pelliklen:
S. sanguinis
S. oralis
S. mitis
A. naeslundii
Neisseria
Haemophilus
hvor får bakterier sukker fra udover kosten?
bakterier ikke kun får sukker fra kosten, men også fra kroppen selv (endogene sukkerkilder).
I spyt og gingivalvæske findes der mange proteiner.
På disse proteiner sidder der kulhydratkæder (glykoproteiner).
Bakterier kan producere enzymer kaldet glykosidaser.
Glykosidaserne klipper kulhydratkæderne af proteinerne.
De frigivne kulhydrater kan bakterierne derefter bruge som energikilde.
beskriv kosten som kilde til bakteriens sukker
sakkarolytiske bakterier får eksogene sukkerkilder, altså kulhydrater der kommer fra kosten.
Monosakkarider er simple sukkerarter, fx glukose og fruktose.
Disakkarider består af to sukkerarter bundet sammen, fx sukrose (almindeligt sukker).
Stivelse er et komplekst kulhydrat. Det nedbrydes af enzymet amylase til mindre sukkerarter.
Laktose (mælkesukker) nedbrydes af enzymet beta-galaktosidase.
hvad kan de sakkarolytiske bakterier bruge kulhydrater til og beskriv hvordan
Sakkarolytiske bakterier kan omsætte kulhydrater til energi.
Glukose kan de normalt omsætte med konstitutivt udtrykte gener. Det betyder, at de nødvendige enzymer hele tiden produceres og derfor altid er klar til brug.
For de fleste andre sukkerarter bruges inducible gener. Her produceres enzymerne først, når bakterien møder den pågældende sukkerart.
Det sparer energi, fordi bakterien ikke behøver lave en masse enzymer, som den måske aldrig får brug for.
beskriv hvordan bakterier omsætter glukose til energi gennem glykolysen.
Glukose optages i bakterien og nedbrydes trin for trin gennem glykolysen.
Undervejs dannes flere mellemprodukter:
Glukose-6-fosfat
Fruktose-1,6-difosfat
Glyceraldehyd-3-fosfat
Fosfoenolpyruvat
Pyruvat
Under glykolysen dannes ATP, som bakterien bruger som energikilde til sine cellulære processer.
Der dannes også NADH, som fungerer som elektronbærer og skal "afleveres" igen senere i metabolismen.
Slutproduktet af glykolysen er pyruvat.
Hvad der sker med pyruvat bagefter afhænger af omgivelserne, især iltforholdene.
Ved forgæring kan pyruvat omdannes til forskellige slutprodukter, fx laktat eller ethanol.

hvilke måder kan bakterier kan få energi fra glukose på? kun navn
forgæring
respiration.
beskriv forgæring som måde at få energi fra glukose
Pyruvat omdannes til fx laktat eller ethanol
NADH oxideres tilbage til NAD⁺.
NAD⁺ kan derefter bruges i en ny omgang glykolyse.
Der dannes ikke ekstra ATP efter glykolysen.
Så ved fermentation kommer energien stort set kun fra glykolysen:
Glukose → 2 ATP + fermenteringsprodukter
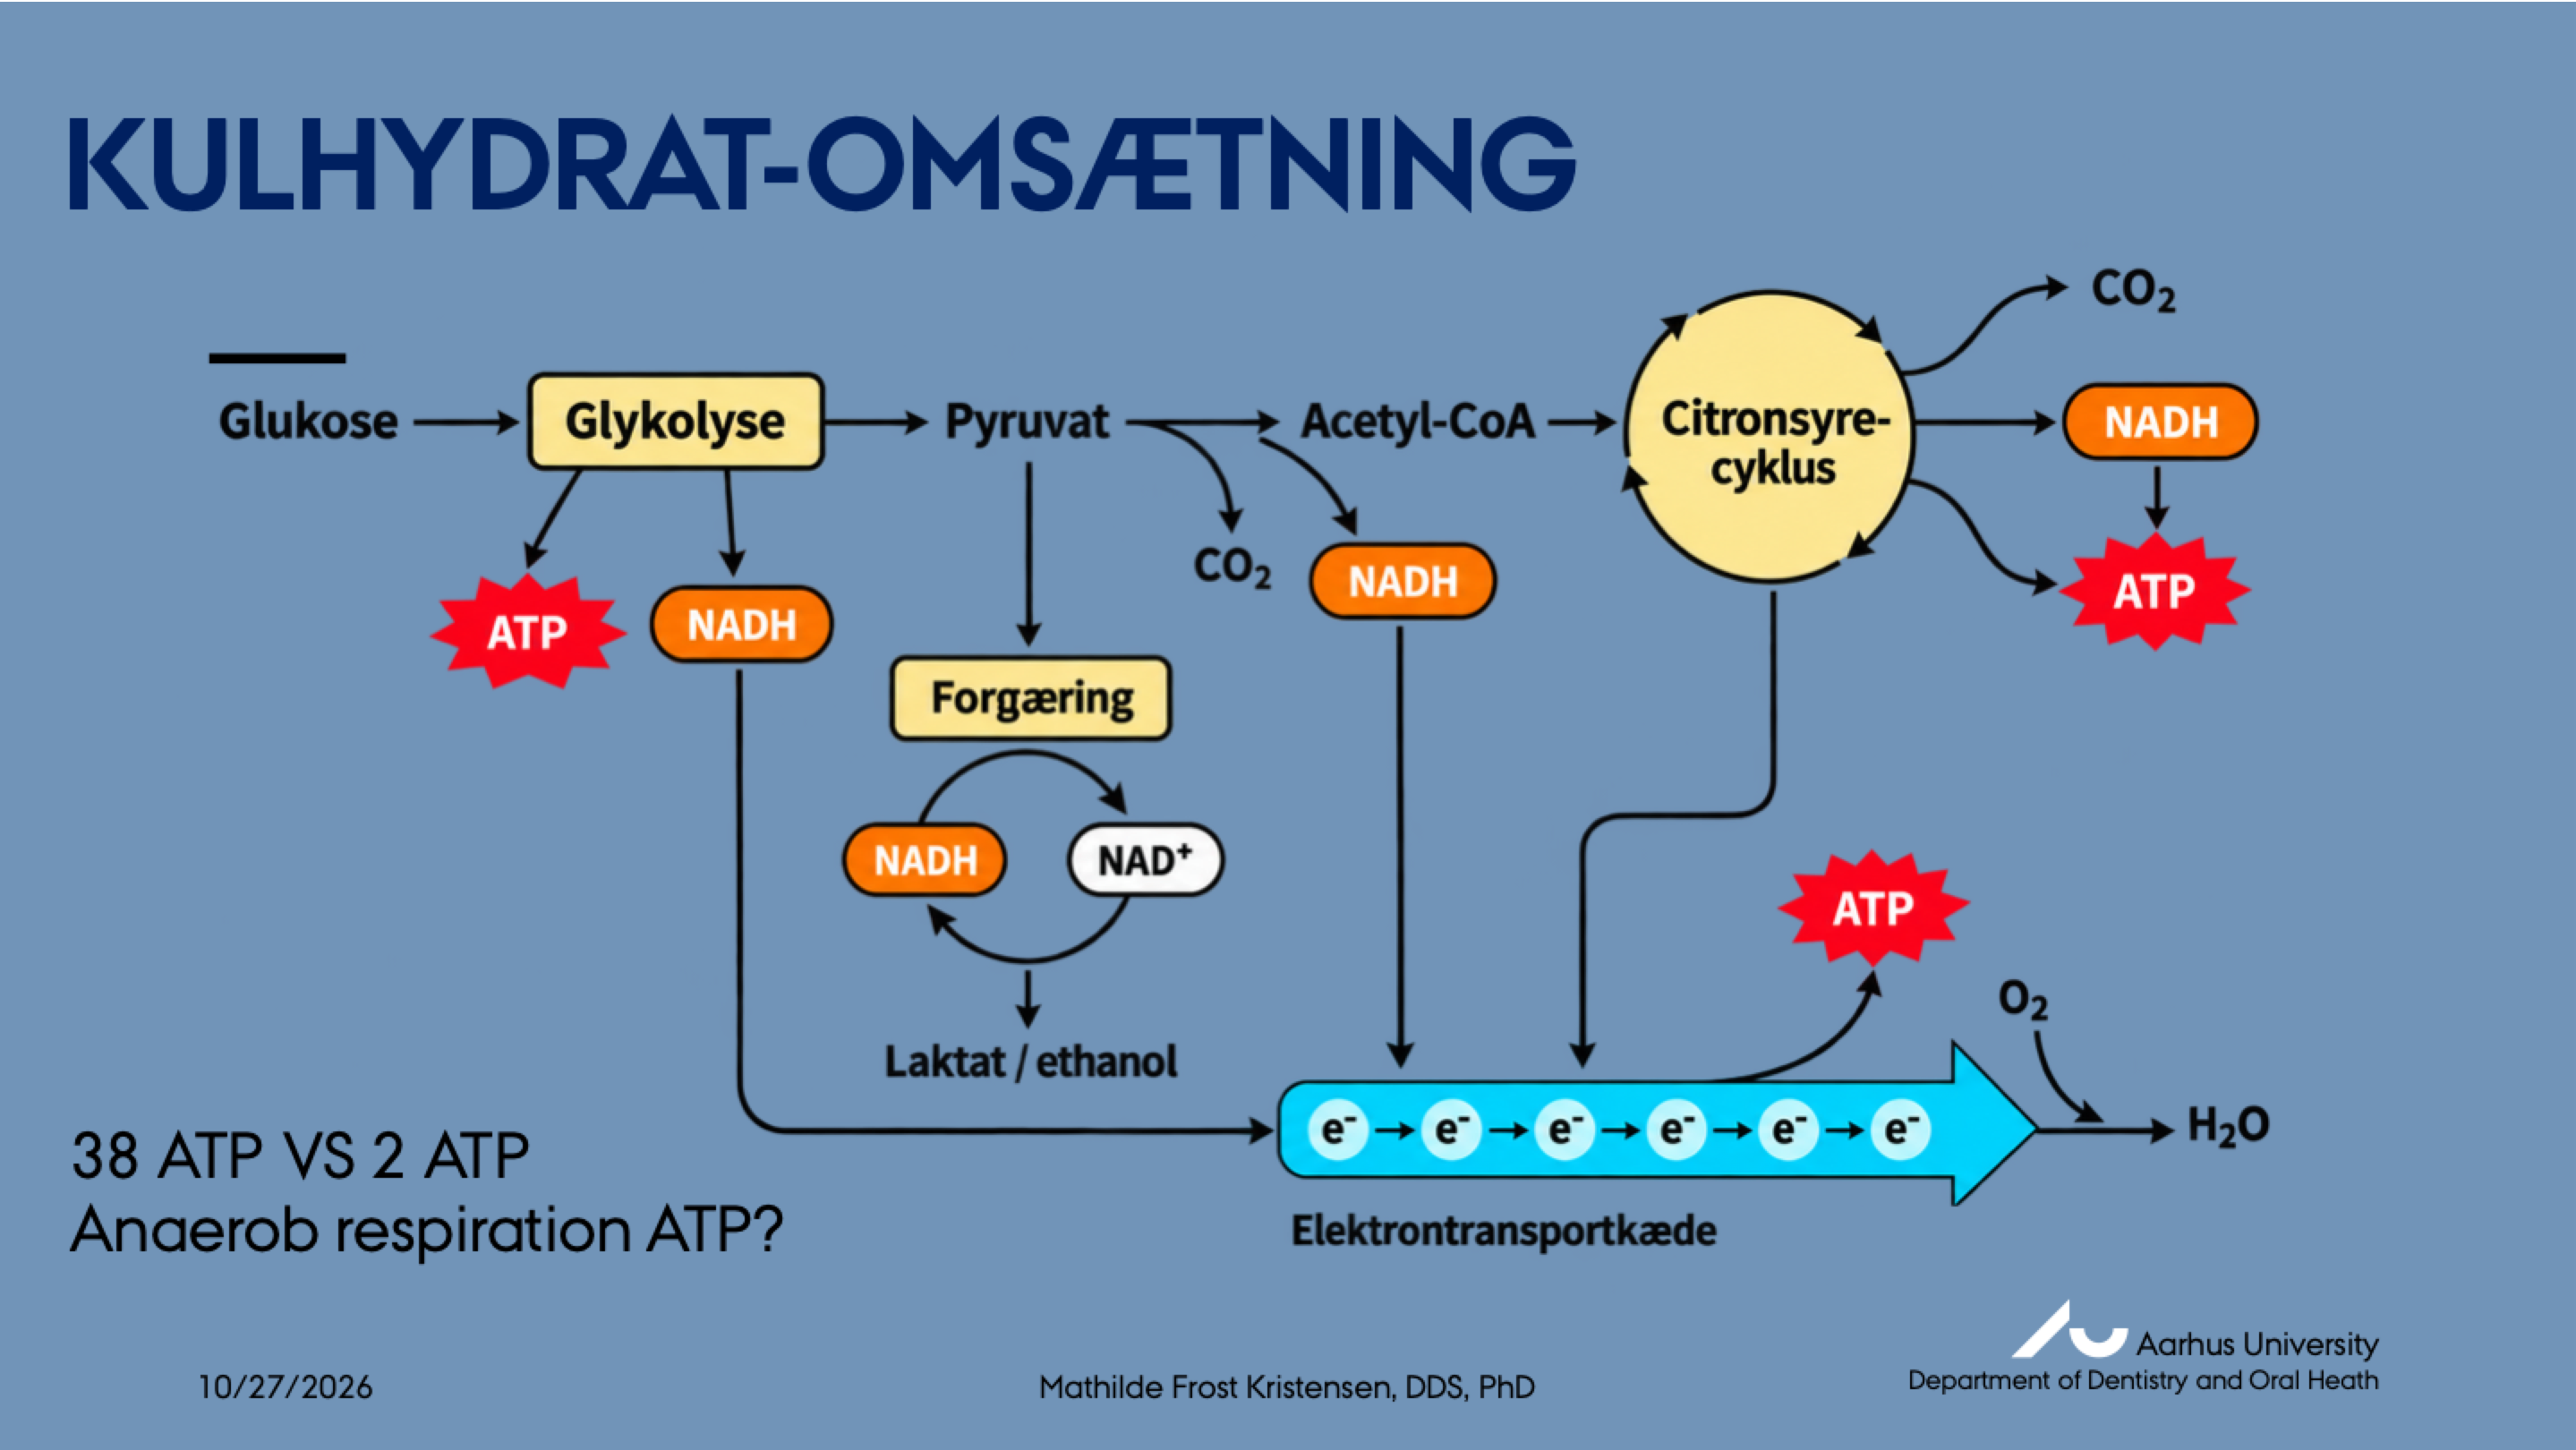
beskriv respiration som måde at få energi fra glukose
Pyruvat omdannes først til acetyl-CoA.
Under denne omdannelse dannes CO₂ og NADH.
Acetyl-CoA går ind i citronsyrecyklus.
Citronsyrecyklus danner mere CO₂, NADH og lidt ATP.
Elektrontransportkæden
NADH afleverer sine elektroner til elektrontransportkæden.
Elektronernes energi bruges til at danne ATP.
Til sidst skal elektronerne modtages af en terminal elektronacceptor.
Ved aerob respiration:
O₂ er terminal elektronacceptor.
Der dannes H₂O.
Anaerob respiration bruger andre stoffer, fx nitrat (NO₃⁻) eller sulfat (SO₄²⁻).
forskel i ATP?
forgæring: ca. 2 ATP pr. glukose.
respiration: op til ca. 38 ATP pr. glukose.
Respiration udnytter altså glukosen langt mere effektivt end fermentation.
hvilke typer forgæring findes. navn kun
homofermentation og heterofermentation
beskriv homofermentation
Her omdannes glukose via pyruvat næsten udelukkende til laktat.
Der dannes derfor ét dominerende slutprodukt.
Denne type ses bl.a. hos mange streptokokker og visse laktobaciller.
Laktat er en syre, som bidrager til pH-fald i plak.
ved sukkerunderskud danner S. mutans og S. sanguinis heterofermentation (format, acetat og ethanol)
beskriv heterofermentation
Her dannes flere forskellige slutprodukter samtidig.
I stedet for kun laktat dannes en blanding af fx:
CO₂
format
acetat
propionat
butyrat
laktat
succinat
Denne type ses bl.a. hos Actinomyces, propionibakterier og nogle laktobaciller.
beskriv hvordan orale streptokokker ændrer deres stofskifte afhængigt af, om der er sukkeroverskud eller sukkerunderskud.
Ved sukkeroverskud
Der er meget sukker til stede, så bakterien optager mere glukose, end den har brug for her og nu.
Noget af glukosen omsættes gennem glykolysen til pyruvat og videre til laktat (mælkesyre).
Samtidig omdanner bakterien en del af sukkeret til intracellulært glykogen og ekstracellulært glukan/fruktan.
Glykogen fungerer som et sukkerlager.
den intracellulære koncentration vil blive 100 mM så 100 gange mere end den normale konc
Ved sukkerunderskud (venstre figur)
Der er kun lidt sukker i omgivelserne.
Bakterien kan derfor ikke få nok energi direkte fra omgivelserne.
I stedet nedbryder den sit glykogenlager.
Glykogen omdannes til glukose-6-fosfat (G6P), som føres ind i glykolysen.
På den måde kan bakterien fortsætte med at producere energi, selv når der er mangel på sukker.

hvilke måder findes for orale bakterier at optage sukker fra omgivelserne, så det kan bruges i glykolysen og energiproduktionen.
PEP-PTS-systemet
er et meget almindeligt sukkeroptagelsessystem hos orale bakterier som streptokokker, Actinomyces naeslundii og Lactobacillus-arter.
Glukose-permease-systemet
Msm-systemet
Msm står for multiple sugar uptake system.
Hos Streptococcus mutans kan systemet bl.a. optage:
sukrose
melibiose
raffinose
forklar PEP-PTS systemet
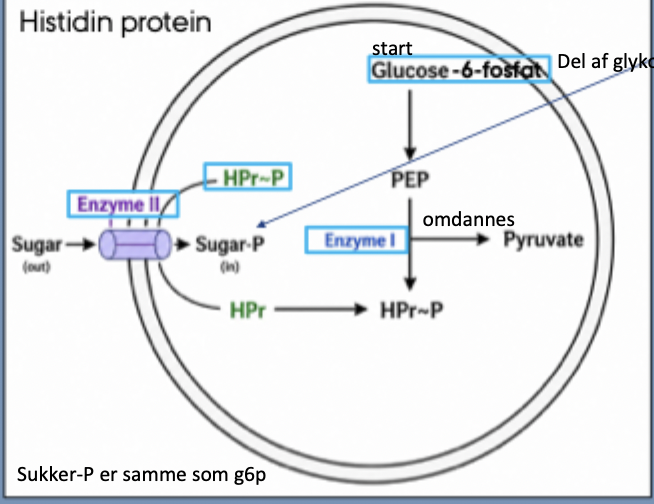
Inde i cellen findes PEP (fosfoenolpyruvat), som er et mellemprodukt fra glykolysen altså nedbrydning af G6P.
PEP afleverer sin fosfatgruppe til Enzym I.
Når PEP mister fosfatgruppen, omdannes det til pyruvat.
Enzym I sender fosfatgruppen videre til HPr-proteinet.
HPr-P (fosforylerede HPr) sender fosfatgruppen videre til Enzym II.
Enzym II sidder i cellemembranen og fungerer både som transportør og enzym.
Glukose uden for cellen passerer gennem Enzym II.
Samtidig med transporten overføres fosfatgruppen fra Enzym II til glukosen.
Glukosen bliver dermed til G6P.
beskriv hvorfor PEP-PTS systemet er smart
Bakterien slipper for først at transportere glukose ind og derefter bruge ATP på at fosforylere den.
Sukkeret er straks klar til at indgå i glykolysen.
G6P → ... → PEP → pyruvat
Så PEP er et molekyle, der alligevel ville aflevere sin fosfatgruppe og ende som pyruvat.
Bakterien udnytter derfor energien i PEP til noget nyttigt:
PEP afleverer fosfatgruppen.
Fosfatgruppen sættes på den glukose, der kommer ind.
Glukosen bliver straks til G6P.
G6P kan nu fortsætte gennem glykolysen og danne nyt PEP senere.
hvornår virker PEP-PTS systemet mest optimalt?
systemet fungerer optimalt ved:
Lav sukkerkoncentration.
Neutralt pH.
Langsom vækst.
Det gør systemet velegnet i mundhulen, hvor sukker ofte findes i lave koncentrationer mellem måltiderne.
beskriv glukose-permease-systemet