7: membranski proteini in prenos signalov
 Call Kai
 Learn
 Practice Test
 Spaced Repetition
 Match
 Flashcards
 Knowt Play
1/22

There's no tags or description
Looks like no tags are added yet.
Name | Mastery | Learn | Test | Matching | Spaced | Call with Kai | Chat |
|---|
No analytics yet
Send a link to your students to track their progress
23 Terms
debeline membran
lipidni del 4-5,5 nm (3-4,5 nm hidrofobni del)
cela membrana 7-10 nm (poleg lipidov še glikokaliks + proteini)
daljše in bolj nasičene mk, holesterol → debelejša membrana
manj nasičene → tanjša, bolj fluidna membrana
vrste membranskih proteinov
integralni - so notri v membrani - lahko transmembranski (skozi celo mem) ali monotopični (ne grejo skozi in skozi) - lahko ena ali več alfa vijačnic, lahko tudi beta sodček (zunanje membrane)
periferni - vezani gor na integralne prot
sidrani na membrano - ne grejo notr v mem, so pa vezani na maščobno kislino v membrani
pristopi za ekstrakcijo proteinov iz membrane
detergenti → amfipoli, nanodiski ali liposomi
SMALPs
GPMVs
pristopi glede na protein in tudi na metodo (detergent naredi veliko ozadja pri krioEM, nanodiski nemorejo kristalizirat, lipidne mezofaze also nemoreš kiroEM)
detergenti
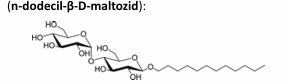
najpogosteje DDM (n-dodecil-beta-D-maltozid) - za proteine s TM alfa heliksi
ekstrakcija je učinkovita če je [detergent]>CMC - 2x ponavadi (CMC je critical micelle concentration- minimum koncentracija lipida da se molekule v tekočini oblikujejo v micele)
če je detergenta veliko več kot je CMC, pride do destabilizacije strukture, če ga je manj, je slaba ekstrakcija
SMALP
lipidni delci iz stirena in maleinske kisline (naključna porazdelitev stir in mal delov)
direktna ekstrakcija - ne rabimo detergenta
ohranijo se nativni lipidi
basically ovijejo se okrog proteina in njemu sosednjih lipidov v membrani in zaajmejo ta shit
amfipoli
amfipatični polimeri
ovijejo se okrog proteina → ga zaklenejo v določeno konformacijo
lahko direkt ekstrakcija ali pa najprej z detergentom in potem zamenjava (ker nemorejo vsi amfipoli ekstrahirat + taka ekstrakcija je stabilnejša za prot)
nativni lipidi se včesih ne ohranijo
nanodiski
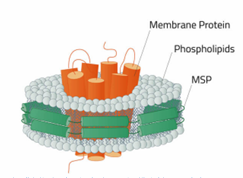
na osnovi MSP (membrane scaffolding protein) - basically mamo lipide okrog želenega proteina, ki so obkroženi/zajeti skupi z MSP (2 antiparalelni verigi MSPja na disk)
najprej ekstrakcija prot iz mem z detergentom → ga zamenjamo z lipidi + MSP
protein ohrani veliko konformacijsko svobodo, ostane funkcionalen
lahko krioEM in NMR, nemoremo kristalografije
lipidne nanostrukture na osnovi sapozina
sapozini so majhni proteini (80ak ostankov), , držijo lipide skupikofaktorji za lizosomske hidrolaze, sapozin A najpogostejši
najprej ekstrakcija prot z detergenti, nato jih zamenjamo s sapozini
lahko krioEM in NMR, nemore kristalografije
metoda ekstrakcije glede na metodo določanja strukture
krioEM - možni različni, ponavadi ne detergent
NMR - detergenti ali amfipoli (nanodiski redko ker so veliki)
kristalografija: detergent ali lipidna kubična faza→ 3D, v lipidnem dvosloju → 2D
bakteriorodopsin
pri halofilnih arhejah, vijola barve
podoben rodopsinu v mrežnici - konvergentna evolucija
protonska črpalka - absorbira foton → prehod iz trans v cis → proton se prečrpa
delovanje: v hidrofobnem kanalu bakteriorodopsina je rodopsin vezan na N od Lys v trans stanju → pride foton notr in stanje gre v cis → pri tem se odda proton na COO- od nearby Asp85 → Asp96 odda svoj proton iz COOH na Lys-rodopsin (schiffova baza) → proton iz Asp85 gre po kanalčku dalje → na Asp96 pride nov proton, Lys-rodopsin gre nazaj v trans stanje

porini
TM beta ploskve v zunanji membrani pri gram- bakterijah (v notranji mem so TM prot večinoma iz alfa heliksov)
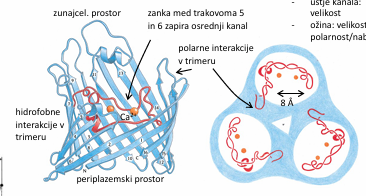
tvorijo z vodo napolnjen kanal → difuzija (omejena velikost da toksini nemorejo notr), vseeno dokaj velik kanal - snovi ne grejo direkt v citosol
zvitje gori-in-dol beta sodček, ponavadi 16 trakov, naklon 40°
ionski kanalčki
zelo ozek in selektiven kanal
kalijev kanalček: tetrameri (2 ali 6 TM vijačnic na podenoto), skoraj prosta difuzija K+ ionov - samo tej lahko grejo skozi kanalček, Na'+ nemorejo ker so s hidratacijskim ovojem preveliki

bakterijski fotosintezni reakcijski center
iz 4 polipeptidnih verig: Light, Heavy, Medium, citokrom (L in M homologni, po 5 TM vijačnic (A, B, C, D, E); H 1 TM vijačnica)
TM vijačnice (pod kotom 20-25°) oba para D+E tvorita snop 4 vijačnic, stabiliziran s Fe
notranjost centra so fotosintezni pigmenti (4 klorofili, 2 feofitina, 2 ubikinona), orientirani okrog psevdo-dvoštevne osi
TM vijačnice lahko napovemo z diagramom hidrofobnosti, ostanki ki tvorijo kontakte s klorofili so >60% ohranjeni

prenos elektronov po fotosinteznem centru
posebni par klorofilov absorbira foton → se vzbudi in preko drugega klorofila prenese e- na feofitin → prenese e- na kinon A → kinon B → citokrom (nad posebnim parom klorofilov jima donira še en e- → tudi ta se prenese do kinona B → kinon B z dvema e- oddisocira in ju prenese na protonsko črpalko
majhna verjetnost da foton zadane center - žetveni kompleksi (iz alfa in beta verig, vmes so klorofili) lovijo fotone in jih prenašajo na fotosintetski center

prenos signala
potrebna je: specifičnost (samo določen signal sproži odziv), fleksibilnost (1 signalna pot lahko aktivira/inhibira drugo), prilagodljivost (z evolucijo lahko nastanejo nove variante brez vpliva na obstoječe poti)
kooperativnost: vezava enga liganda omogoči vezave še drugih
vidiki signaliziranja: specifičnost, ojačitev signala (vsak encim aktivira več encimov naprej v kaskadi), integracija (signali se združijo oz se vsi upoštevajo), adaptacija (aktivacija receptorja sproži povratno zanko → se sklopi samega sebe signal)
membranski receptorji kateri so
ionski kanalčki
z G proteini sklopljeni receptorji (=GPCR)
z encimi povezani receptorji (Tyr kinaze in gvanilil ciklaze)
adhezijski receptorji
GPCR in G proteini
največja skupina mem receptorjev, delimo na 6 družin (glede na pozicijo in obliko vezavnega mesta za ligand)
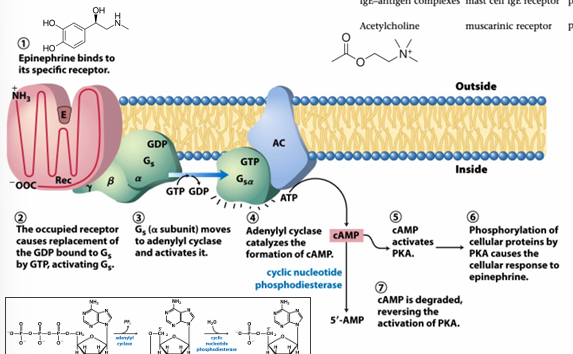
na GPCR se veže ligand → preko 7 TM vijačnic se signal prenese v celico → ojačitev zaradi asociiranih G proteinov
G protein je heterotrimer (alfa beta gama podenote) → po aktivaciji se Galfa odcepi (GTPazna aktivnost)→ prenese signal na cAMP → gre dalje signal
G proteini
alfa in gama podenoti sidrani v membrano z lipidnim sidrom
beta je asociran z gama (perimembransko) - hitra razgradnja če se ločita)
ko se ligand veže na GPCR se konf spremeni TM del → aktivacija G proteinov → na aktiviran GPCR se lahko veže nov trimer G
toksini blokirajo GTPazno aktivnost alfe → neprestana aktivacija → transport dosti signala
podobnost GPCR z Ras
Ras = Rat sarcoma virus
Ras nima GTPazne aktivnosti → aktivira jih izmenjava GDP za GTP, za izklop rabijo GAP protein
idk man upm d nebo tega
GPCR in G proteini: stikalo
primer transducin (G protein, prenača signal od rodopsina do cGMP fosfodiestraze)
GTPazna domena Galfa, notr ima “stikala” + ogrodna vijačnica - “pokrov”, ki zapre GTP → za izmenjavo se mora odpreti
stikalo je mesto interakcije z Gbetagama → ko se veže GTP namesto GDP, se stikali I in II premakneta proti gama fosfatni skupini GTPja, stikalo III pa tvori solne mostičke s stikalom II

Gbetagama
Gbeta je 7-krilni beta propeler z alfa vijačnico na N-koncu
Ggama je vijačnica, s hidrofobnimi interakcijami se veže na Gbeta vijačnico → obviti vijačnici
Galfa se veže na drugo stran Gbeta propelerja kot Ggama → vezava onemogoči izmenjavo GDP→GTP, ko se ob aktivaciji veže GTP pride do konf sprememb v stikalih → Gbetagama se oddisociira iz Galfe

fosducin
sodeluje pri prilagajanju vida na jakost svetlobe
v temi je fosforiliran - neaktiven → možna tvorba Galfabetagaam
na svetlobi je aktiven → vezava na Gbetagama → translokacija kompleksa iz membrane
receptor za rastni hormon GHR
rastni hormon je peptidni hormon (snop 4 vijačnic, hidrofobna notranjost)
receptor iz 2 domen, imunoglobulinsko zvitje, 2 domeni, med njima povezovalna regija ki veže GH
na en GH se vežeta 2 GHR - na dve različni vezavni mesti
ko je dosti GHja se tvorijo 1:1 kompleksi z GHR (preko A-D regije na hormonu) → dimerizacija GHR preko C-končne domene → vezava GH preko A-C regije
vezava GH na povezovalno regijo s solnimi mostički Arg - Glu, vezava GH na Ig domeno poveča Zn afiniteto
