EME III - Tema 16: Interacciones proteína-ligando
 Call Kai
 Learn
 Practice Test
 Spaced Repetition
 Match
 Flashcards
 Knowt Play
1/79

There's no tags or description
Looks like no tags are added yet.
Name | Mastery | Learn | Test | Matching | Spaced | Call with Kai | Chat |
|---|
No analytics yet
Send a link to your students to track their progress
80 Terms
¿Qué es un ligando?
Una molécula unida de manera reversible por una proteína (puede ser cualquier tipo de molécula, incluidas otras proteínas)
¿Por qué la mayoría de las proteínas dependen de la unión reversible de ligandos para cumplir sus funciones biológicas?
Porque para ser funcionales requieren interactuar con otras moléculas de forma transitoria en sitios específicos. Esta naturaleza transitoria y reversible es crítica para la vida, ya que permite al organismo responder de manera rápida y adaptable a los cambios del medio ambiente
¿Qué roles asumen la proteína (P) y el ligando (L) en catálisis, señalización, transporte y sistema inmunológico?
Catálisis: P = enzima; L = sustrato, activador o inhibidor
Señalización: P = receptor; L = hormona / molécula señal
Transporte: P = transportador; L = oxígeno (O2), lípido, azúcar, etc…
Sistema inmunológico: P = anticuerpo; L = antígeno
¿Es el ligando siempre una molécula de menor tamaño que la proteína receptora?
No. Aunque a menudo es una molécula pequeña, también puede ser otra proteína o un ácido nucleico. Un ejemplo claro son los factores de transcripción (proteínas), donde los ácidos nucleicos (DNA) actúan como el ligando de mayor tamaño relativo
¿Cómo depende el sitio de unión (región específica y bien definida) del estado de plegamiento de la proteína y qué ocurre si se desnaturaliza?
El sitio de unión depende estrictamente de la estructura tridimensional nativa de la proteína (mantenida por interacciones débiles). Si la proteína está desplegada o se desnaturaliza (inactiva), pierde su conformación espacial y, por consiguiente, desaparece el sitio de unión, imposibilitando la asociación con el ligando

¿Cómo se comportan frente al ligando las proteínas intrínsecamente desestructuradas?
De forma natural se encuentran en una estructura flexible y variable donde no existe un sitio activo preformado; sin embargo, al entrar en contacto e interaccionar con el ligando específico, adoptan su conformación funcional activa
¿Se transforman químicamente la proteína y el ligando en el complejo PL tras su interacción?
La proteína no se transforma químicamente de forma neta (no hay cambios permanentes en los grupos funcionales de sus radicales y puede ser reusada), aunque sí puede experimentar pequeños cambios conformacionales o modificaciones de aminoácidos para su regulación
El ligando generalmente no se transforma, salvo en las enzimas, donde actúa como sustrato y es transformado catalíticamente en un producto
¿A qué corresponde generalmente la especie biológicamente activa en la interacción proteína-ligando?
Corresponde al complejo PL (que es flexible y dinámico), de modo que la actividad biológica es directamente proporcional a la concentración del complejo PL formado
¿Qué es el sitio de unión (o centro activo en enzimas) y por qué debe ser accesible desde el exterior?
Es un lugar o hendidura específica en la superficie de la proteína donde se une el ligando. Debe ser accesible desde el exterior porque el ligando procede del medio extracelular o citosólico acuoso; una vez que entra en contacto, el sitio suele adaptarse o cerrarse sobre él
¿Por qué la unión proteína-ligando se establece a través de enlaces débiles y qué excepción existe respecto a cationes metálicos?
Se establece mediante múltiples enlaces débiles (enlaces de hidrógeno, electrostáticos/iónicos, de Van der Waals) para garantizar que la unión sea reversible. Si fuesen enlaces covalentes fuertes, se formaría un complejo demasiado estable y rígido, muy difícil de disociar o modificar. Como excepción reversible no clásica, en ciertas proteínas (como las hemoproteínas) la unión depende de enlaces de coordinación con cationes metálicos
¿En qué consiste la complementariedad química y estérica del sitio de unión con su ligando?
Química: Debe existir afinidad intermolecular precisa (disposición adecuada de donadores/aceptores de puentes de hidrógeno, pares iónicos, grupos apolares)
Estérica: El ligando debe encajar físicamente por forma y tamaño en la cavidad ("tiene que caber"). Un ligando pequeño solo se une eficazmente a un sitio pequeño para permitir interacciones de estabilización múltiples con toda la superficie de la hendidura
¿Qué es la adaptabilidad (ajuste inducido) del sitio de unión?
Es la capacidad dinámica de la proteína para modificar su conformación tridimensional cuando el ligando entra en la cavidad, cerrándose o reorganizándose para maximizar la complementariedad estructural y las interacciones estabilizadoras
¿Cómo influye el microentorno del sitio de unión en su reactividad química y en el estado de ionización de los aminoácidos?
El sitio de unión provee un microentorno acuoso particular donde los grupos presentan propiedades diferentes al exterior: la proximidad y orientación adecuada de grupos catalíticos aumenta la reactividad, y la presencia de residuos cercanos puede alterar los valores de pKa locales, logrando que grupos ionizables se encuentren neutros cuando normalmente estarían cargados (o viceversa) según el pH de la disolución. En enzimas, este entorno especial es el que facilita y acelera la transformación química del sustrato
¿Con qué nivel(es) de estructura se relacionan la organización y las características del sitio de unión de ligandos?
Estructura terciaria: determina la conformación tridimensional de una cadena polipeptídica y, por tanto, la disposición espacial de los aminoácidos que forman el sitio de unión al ligando
Estructura cuaternaria: interviene cuando la proteína está formada por varias cadenas polipeptídicas (subunidades) y el sitio de unión depende de la asociación entre ellas
La estructura primaria también puede estar relacionado indirectamente ya que a veces se vincula la existencia de determinados sitios de unión con algún patrón específico de secuencia (pero no es la principal responsable)
¿A qué crees que se debe el entorno “especial” de los sitios de unión de ligando, a diferencias en el solvente en esa zona o a la estructura proteica?
A la estructura tridimensional de la proteína, que crea un microambiente con características específicas de carga, polaridad, hidrofobicidad y geometría, que favorece la unión selectiva del ligando. El solvente influye en las interacciones, pero no es el factor determinante
¿Cuáles son las premisas generales válidas para todos los casos de clasificación de sitios de unión de ligandos?
Se refieren a un solo tipo determinado de proteína
Aunque en disolución coexisten muchas moléculas de proteína, la definición de los tipos de sitio se refiere a una sola molécula de proteína
Cada sitio individual puede acoger como máximo una única molécula de ligando
¿Cómo se pueden clasificar los sitios de unión?
Sitio único
Múltiples sitios
Equivalentes (dependientes e independientes)
No equivalentes (alostéricos y no alostéricos)
¿Cómo se definen los sitios de tipo «Sitio Único» y qué organización cuaternaria suele presentar la proteína?
Definición: Cada molécula de proteína une como máximo un único ligando específico, en un solo sitio
Estructura: La proteína es generalmente monomérica

¿Cómo se define el modelo de «Múltiples Sitios» en una proteína?
Cada molécula individual de proteína puede unir más de un ligando de manera específica en más de un sitio de unión
¿Qué define a los sitios «Equivalentes» y cuáles son sus características estructurales y energéticas?
Son más de un sitio específicos para el mismo tipo de ligando (un solo tipo)
Presentan idénticas características estructurales entre ellos
Para un estado de ocupación determinado, todos los sitios equivalentes vacíos presentan exactamente la misma afinidad por el ligando
Dentro de los sitios equivalentes, ¿en qué se diferencian los sitios «Dependientes» de los «Independientes»?
Dependientes: La afinidad de cualquiera de los sitios depende del estado de ocupación de los demás (comportamiento cooperativo)
Independientes: La afinidad de cualquiera de los sitios NO depende del estado de ocupación de los demás
¿Qué conformación o estructura suele presentar una proteína con sitios equivalentes?
La proteína es generalmente multimérica, y al menos homodimérica (con subunidades idénticas P1, P2)
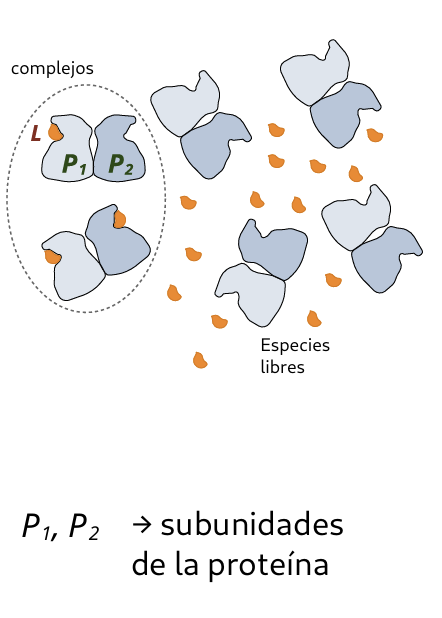
¿Qué define a los sitios «No Equivalentes» y cómo son sus características estructurales?
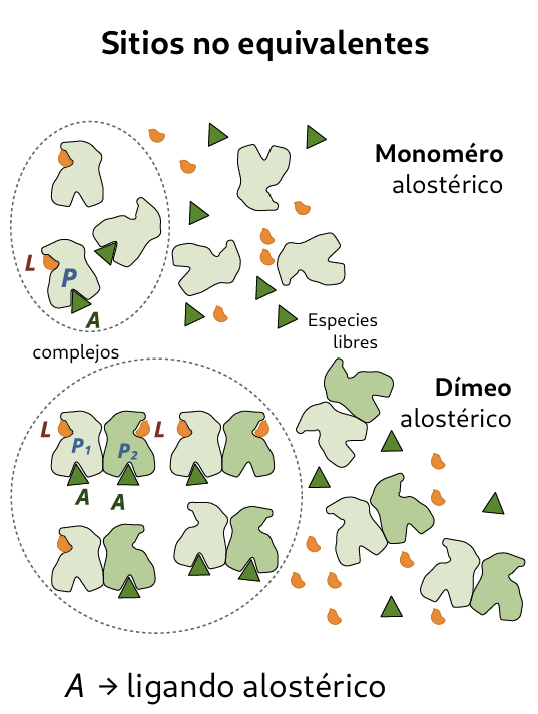
Son sitios específicos para distintos tipos de ligandos presentes en la misma proteína
Los sitios no equivalentes difieren en sus características estructurales entre sí
Dentro de los sitios no equivalentes, ¿en qué se diferencian los sitios «Alostéricos» de los «No Alostéricos»?
Alostéricos: La ocupación de los sitios de un tipo afecta a la afinidad de los sitios del otro tipo (interacción o regulación heterotrópica)
No Alostéricos: La ocupación de los sitios de un tipo NO afecta a la afinidad de los del otro tipo (son poco comunes)
¿Qué organización cuaternaria puede adoptar una proteína con sitios no equivalentes y qué representa el ligando A en sus modelos?
La proteína puede ser tanto monomérica (monómero alostérico) como multimérica (dímero/oligómero alostérico)
En los esquemas, L representa el ligando primario o sustrato y A representa el ligando alostérico o efector
¿Cómo se define matemáticamente la fracción de saturación (Y)?
Como la proporción de sitios ocupados respecto al total y permite conocer los sitios libres remanentes:
Y = [Sitios ocupados] / [Sitios totales] = [PL] / [P] + [PL]
Cumpliéndose que 0 ≤ Y ≤ 1

¿Cómo se formula la constante de disociación en el equilibrio (Kd) para el complejo proteína-ligando ( P + L ←→ PL)?
Se define como la relación entre la velocidad de disociación hacia la izquierda (kd) y la de asociación hacia la derecha (ka):
Kd = [P][L] / [PL]
Las constantes de velocidad (ka y kd) son constantes de proporcionalidad que indican la fracción del total de reactivo que reacciona por unidad de tiempo
A partir de este equilibrio, la relación entre proteína unida y proteína libre ([PL] / [P]) es directamente proporcional a la concentración de ligando [L]

¿Bajo qué condición experimental la concentración de ligando libre [L] se considera constante e invariable tras la unión a la proteína?
Cuando la concentración de ligando es mucho mayor que la concentración de proteína ([L] >> [P]). En este régimen de exceso de ligando, la fracción secuestrada por la proteína no disminuye de forma apreciable la reserva total de ligando libre
¿Cómo influye la concentración de ligando [L] en la sensibilidad del sistema receptor-ligando a lo largo de la curva hiperbólica?
A baja concentración de ligando ([L] << Kd): El sistema exhibe su máxima sensibilidad (pendiente máxima); pequeños incrementos en [L] provocan aumentos significativos en la fracción de saturación Y
A alta concentración de ligando ([L] >> Kd): El sistema entra en la zona de saturación (poca sensibilidad); la curva se aplana horizontalmente (Y ≈ constante, por lo que variaciones en [L] apenas provocan respuesta adicional

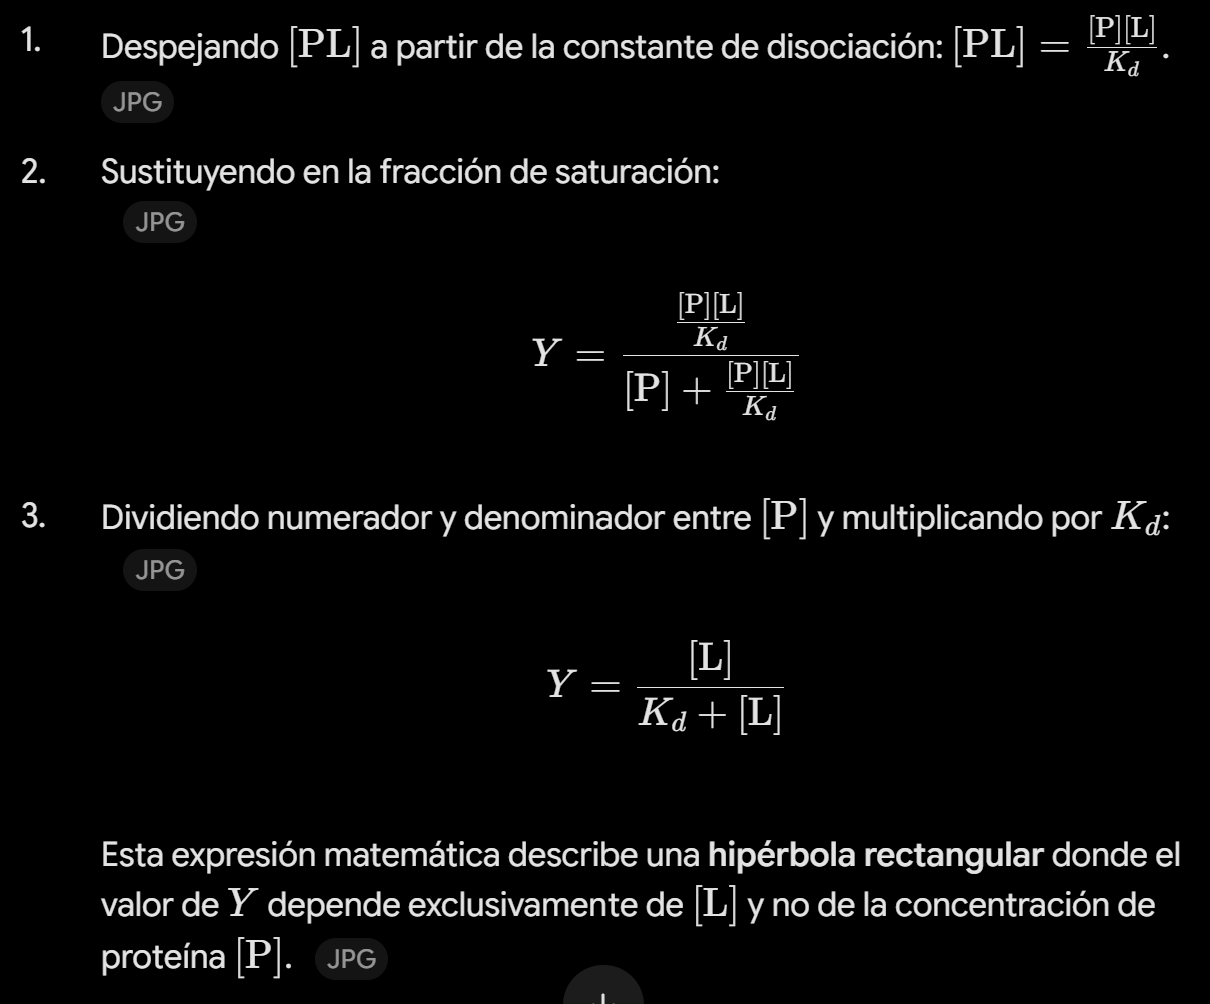
¿Cómo se deduce la ecuación hiperbólica de saturación combinando las expresiones de Kd e Y para un solo sitio?
Usando la ecuación de Kd se despeja [PL], se sustituye en la ecuación de Y y se simplifica. Para simplificarlo se multiplica numerados y denominador por Kd y se cancela [P] para que quede:
Y = [L] / Kd + [L]
¿Cuál es la definición biofísica de la constante Kd (L1/2) en una curva de unión y cómo se demuestra algebraicamente?
Es la concentración de ligando libre a la cual se alcanza la mitad de la saturación máxima (semisaturación, Y = 0.5 o 1/2)
½ = L1/2 / Kd + L1/2 → Kd + L1/2 = 2L1/2 → Kd = L1/2
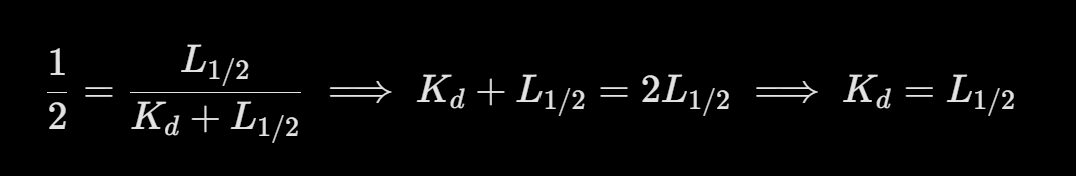
¿Cuál es la relación inversa entre el valor de Kd y la afinidad de la proteína por su ligando?
Mayor Afinidad → Menor Kd (menos L1/2): Se requiere muy poca concentración de ligando para ocupar la mitad de los sitios; la curva hiperbólica asciende con gran pendiente inicial y se desplaza a la izquierda (curva de unión más fuerte)
Menor Afinidad → Mayor Kd (mayor L1/2): Se necesita una elevada concentración de ligando para semisaturar el sistema; la curva se desplaza a la derecha (curva de unión más débil)

¿Por qué teóricamente es imposible alcanzar una saturación absoluta (Y = 1) y por qué se recurre a la Kd (L1/2)?
Porque según la función hiperbólica, Y tiende asintóticamente a 1 únicamente cuando la concentración de ligando tiende a infinito (L = ∞).
Al ser la saturación total un límite asintótico inalcanzable experimentalmente, se utiliza la Kd (L1/2) como parámetro estandarizado de referencia para cuantificar y comparar afinidades con exactitud
¿Qué significa biológicamente el concepto de «saturación» en un sistema de unión proteína-ligando?
Es el estado en el que todos los sitios de unión de todas las moléculas de proteína están ocupados por ligando. Llegados a este punto, la adición de nuevas moléculas de ligando al medio no puede traducirse en una mayor unión proteica. Los sistemas con alta afinidad (baja Kd) alcanzan esta saturación a concentraciones sustancialmente menores de ligando
¿A qué tipo de proteínas es estrictamente aplicable el modelo hiperbólico Y = [L] / Kd + [L] y qué limitación presenta in vivo?
Es matemáticamente exacto únicamente para proteínas con un solo sitio de unión por molécula (modelo monomérico sin cooperatividad, el cual resulta biológicamente poco común)
Muchas proteínas fisiológicas poseen múltiples sitios de unión, requiriendo modelos más complejos para describir posibles fenómenos alostéricos o dependientes
¿Cómo se definen los equilibrios microscópicos sucesivos para una proteína P con n sitios indistinguibles y equivalentes?
Se definen mediante una serie de pasos secuenciales de adición de ligando L:
P + L ← (K1) → PL
PL + L ← (K2) → PL2
PL2 + L ← (K3) → PL3 ….
Pn-1 + L ← (Kn) → PLn
donde cada paso posee su propia constante microscópica de disociación (K1, K2, … , Kn)

¿Qué caracteriza al caso sencillo de n sitios equivalentes e independientes (Caso I) y cuál es su ecuación de saturación?
La unión de un ligando a un sitio no afecta para nada al siguiente.
Todas las constantes microscópicas son idénticas: K1 = K2 = K = L1/2
Cada sitio actúa como si estuviese en una proteína aislada (situación que prácticamente no ocurre en la realidad biológica).
Su comportamiento sigue una función hiperbólica idéntica a la de un solo sitio: Y = [L] / K + [L]
¿En qué consiste el modelo teórico de «supercooperatividad positiva» (Caso II) y qué implica a nivel molecular?
Los n sitios son dependientes; al unirse la primera molécula de ligando, la afinidad de los restantes aumenta de forma infinita/extrema, de manera que los n sitios se ocupan simultáneamente
No existen en disolución especies parcialmente saturadas (PL, PL2, …), solo proteína totalmente libre (P) o totalmente saturada (PLn)
Este límite teórico (c = n) nunca se alcanza en la práctica, pues el valor real siempre es menor que el número de sitios físicos de unión
¿Cuál es la formulación matemática del equilibrio y la ecuación de Hill para el caso extremo de supercooperatividad positiva?
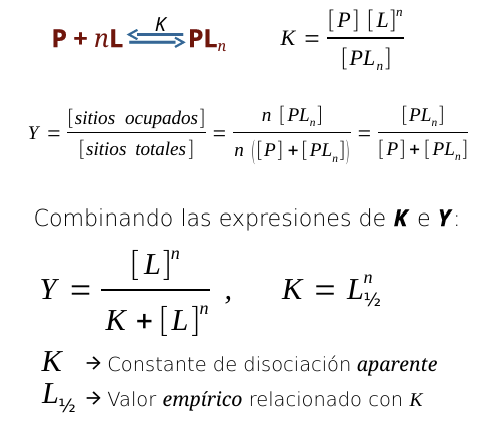
Reacción global: P + nL ←(K)→ PLn, con constante de disociación aparente K = [P][L]n / [PLn]
Fracción de saturación: Y = n[PLn] / n([P] + [PLn]) = [PLn] / [P] + [PLn]
Ecuación combinada (no hiperbólica): Y = [L]n / K + [L]n donde K = L1/2n
K es la constante de disociación aparente de todos los sitios a la vez y L1/2 es el valor empírico de semisaturación
En el caso general de cooperatividad, ¿qué significa que los n sitios sean dependientes y cuál es la ecuación general de Hill?
Significa que la unión de L a un sitio modifica conformacionalmente la afinidad por los sitios aún vacíos de la misma molécula, por lo que las constantes microscópicas no son iguales (K1 ≠ K2 ≠ … ≠ Kn)
Al ser una situación intermedia entre independencia (n = 1) y supercooperatividad (n), se describe mediante la ecuación de Hill con exponente intermedio c (coeficiente de Hill):
Y = [L]c / K + [L]c = [L]c / L1/2c + [L]c
donde K = L1/2c y K ≠ (K1, K2, … , Kn)

¿Cuáles son las condiciones matemáticas de las constantes de disociación y del coeficiente de Hill (c) en la cooperatividad positiva?
La afinidad aumenta conforme avanza la ocupación de sitios (el primer sitio unido es el de menor afinidad y el último el de mayor afinidad)
Relación de constantes de disociación (se vuelven cada vez menores):
K1>K2>K3>…>Kn
Coeficiente de Hill: 1 < c < n

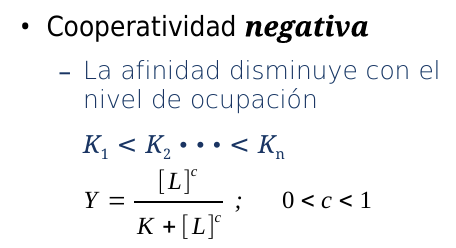
¿Cuáles son las condiciones matemáticas de las constantes de disociación y del coeficiente de Hill (c) en la cooperatividad negativa?
La afinidad disminuye conforme se van ocupando los sitios (la unión del primer ligando dificulta la entrada de los siguientes)
Relación de constantes de disociación (se vuelven cada vez mayores):
K1<K2<K3<…<Kn
Coeficiente de Hill: 0 < c < 1
¿Por qué la cooperatividad entre sitios equivalentes se define como un efecto homotrópico?
Porque se establece entre sitios equivalentes que unen exactamente el mismo tipo de ligando (el propio ligando actúa como modulador alostérico de su propia unión)
¿Cuáles son las características estructurales y moleculares de un sistema con efecto homotrópico / cooperativo?
Se da entre sitios distintos pero con características químicas y estructurales comunes (idénticos en estado libre)
Las moléculas de ligando no muestran preferencia inicial por ninguno de los n sitios (la primera unión es aleatoria)
La ocupación de un sitio induce un cambio conformacional que afecta al resto de sitios contiguos alterando su afinidad
Típicamente ocurre en proteínas multiméricas con al menos dos subunidades idénticas (como homodímeros con subunidades PA y PB)
¿En qué situaciones se puede dar cooperatividad sin que intervenga estructura cuaternaria?
Homooligómero, una proteína multidominio con dominios muy parecidos con sitio indistinguibles. Cuando están libres los sitios de unión, la preferencia de unión por el ligando es la misma. Es una situación poco relevante, pues no se da en la realidad
Una proteína no homooligomérica pero con cadenas que se parecen mucho entre ellas como en la hemoglobina
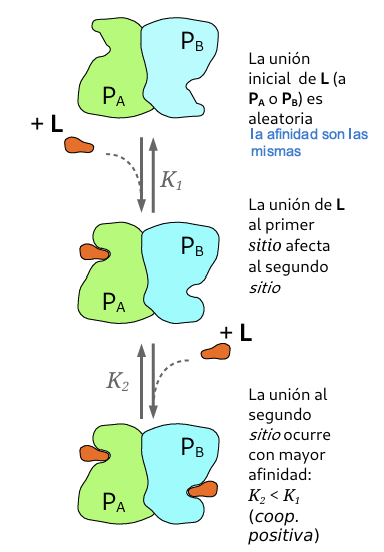
En una proteína homodimérica con cooperatividad positiva, ¿cómo transcurre paso a paso la unión del ligando según el modelo de subunidades PA y PB?
Unión inicial: El ligando L se une aleatoriamente a PA o PB con constante K1 (la afinidad por ambos sitios vacíos es idéntica)
Efecto conformacional: La unión al primer sitio transmite un cambio conformacional a la subunidad vecina
Segunda unión: La fijación del segundo ligando al sitio vacante ocurre con una afinidad significativamente mayor, cumpliéndose que K2 < K1
¿Por qué la curva de unión de cooperatividad positiva adopta forma sigmoidea en función de las afinidades de los sitios?
Porque resulta de la superposición de dos hipérbolas teóricas extremas:
PNG
A baja concentración de ligando ([L] pequeña), la curva se aproxima a la hipérbola de baja afinidad / unión débil (correspondiente al primer sitio ocupado en cada proteína)
A alta concentración de ligando ([L] grande), la curva converge hacia la hipérbola de alta afinidad / unión fuerte (correspondiente al último sitio ocupado)
La afinidad global no es estática, sino que aumenta conforme se van ocupando los sitios de la molécula

¿Cómo se interpreta la curva sigmoidea en términos de los estados conformacionales alostéricos T y R?
Se concibe como una curva híbrida que refleja la transición progresiva desde un estado conformacional de baja afinidad (estado T, tenso) hacia un estado conformacional de alta afinidad (estado R, relajado). La proteína muestra su máxima sensibilidad a variaciones de [L] precisamente en el intervalo de máxima pendiente, que coincide con el momento de mayor transición del estado T al R
¿Qué representa el parámetro L1/2 en un sistema con cooperatividad positiva y por qué no es correcto denominarlo Kd?
Es un valor empírico que refleja una afinidad "media" o "global" del conjunto de los n sitios para alcanzar la semisaturación (Y = 0.5)
No cabe hablar de Kd porque no existe una única constante microscópica de disociación; en un sistema dependiente, cada sitio sucesivo presenta una afinidad y constante individual distinta (K1 > K2 > … > Kn) a medida que se une el ligando
¿Cómo evoluciona la sensibilidad del sistema cooperativo a lo largo de las distintas zonas de la curva sigmoidea?
A baja [L]: La sensibilidad es reducida (pendiente suave o pequeña).
En torno a L1/2: Se alcanza la sensibilidad máxima (pendiente máxima de la curva), donde pequeños incrementos de ligando causan grandes variaciones en la ocupación.
A alta [L] (zona de saturación): La pendiente vuelve a disminuir y se aplana, perdiendo sensibilidad al aproximarse al máximo de saturación

¿Cómo se vería la curva de cooperatividad en el caso de cooperatividad negativa?
La curva de saturación Y frente a la concentración de ligando [L] tiene una forma hiperbólica más aplanada que la curva de unión no cooperativa, en lugar de la forma sigmoidea pronunciada de la cooperatividad positiva
¿Cómo se define matemáticamente la función de saturación (ν, "nu") y qué mide biológicamente?
Se define como la relación entre la concentración de ligando unido y la concentración total de proteína:
v = [ligando unido] / [proteína total] = [L]unido / [P]total
Representa el número promedio de moles de ligando unidos por mol de proteína
¿Qué relación cuantitativa existe entre la función de saturación (v) y la fracción de saturación (Y) en una proteína con un solo sitio frente a una con n sitios?
Para un solo sitio (n = 1): Ambas funciones coinciden exactamente (v = Y):
v = [L]unido / [P]total = [PL] / [P] + [PL] = [sitios ocupados] / [sitios totales] = Y
Para n sitios: La relación general es:
Y = [L]unido / n[P]total = v / n → v = n · Y

¿Cuál es la formulación de la función de saturación (v) aplicada a la ecuación de Hill para n sitios cooperativos y cuáles son sus límites asintóticos?
Sustituyendo la ecuación de Hill en v = n · Y:
v = n[L]c / K + [L]c (1 < c < n)
Límites de saturación cuando [L] → ∞:
Y → 1 (la fracción de sitios ocupados nunca supera 1)
v → n (la función de saturación tiende al número total de sitios de unión n por molécula de proteína)
En el punto de semisaturación ([L] = L1/2), Y = 0.5 y v = n/2
¿Qué ventaja metodológica determinante aporta representar la función de saturación (v) frente a la fracción de saturación (Y) al analizar una proteína monomérica vs. oligomérica?
En la gráfica de fracción de saturación (Y frente a [L]): Ambas curvas tienden invariablemente a una asíntota de 1. La única diferencia reside en la forma (hipérbole para monómero, sigmoide para oligómero cooperativo), lo que resulta muy difícil de discriminar visualmente cuando se dispone de pocos puntos experimentales, además de que no aporta información sobre el número de sitios (n)
En la gráfica de función de saturación (v frente a [L]): Cada proteína tiende a un límite asintótico numéricamente distinto que es igual a su número de sitios (n = 1 para un monómero, n = 2 para un dímero, n = 3 para un trímero...). Permite determinar directamente el número de sitios de unión/subunidades de la proteína, incluso con pocos datos experimentales
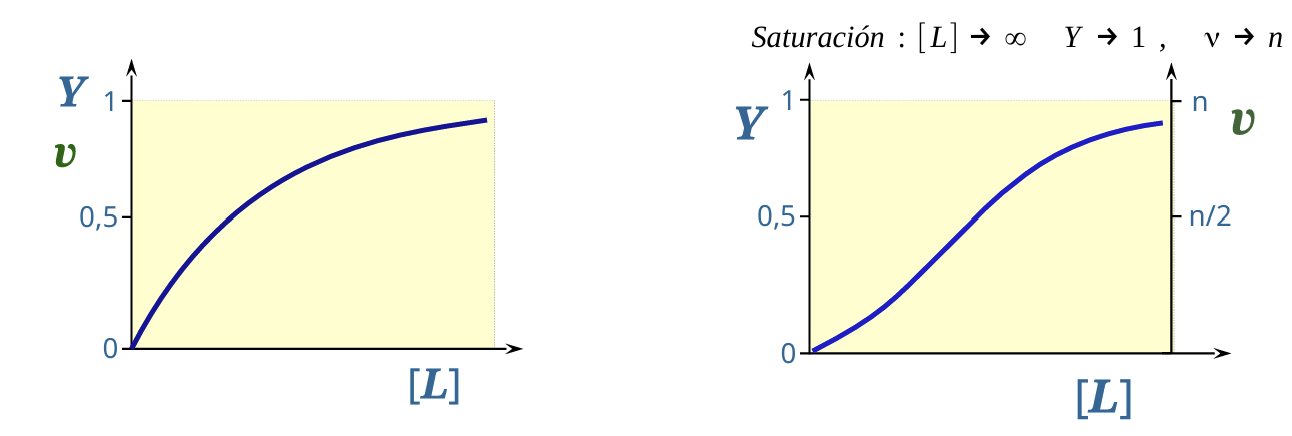
¿Cómo se comportaría gráficamente un dímero en el que sus n sitios fuesen estrictamente independientes?
En la gráfica de fracción de saturación (Y), no mostraría cooperatividad y su curva sería una hipérbole regular idéntica a la de un monómero en lugar de una curva sigmoidea
En la gráfica de función de saturación (v), mantendría el perfil hiperbólico no sigmoide pero su asíntota máxima alcanzaría v = 2
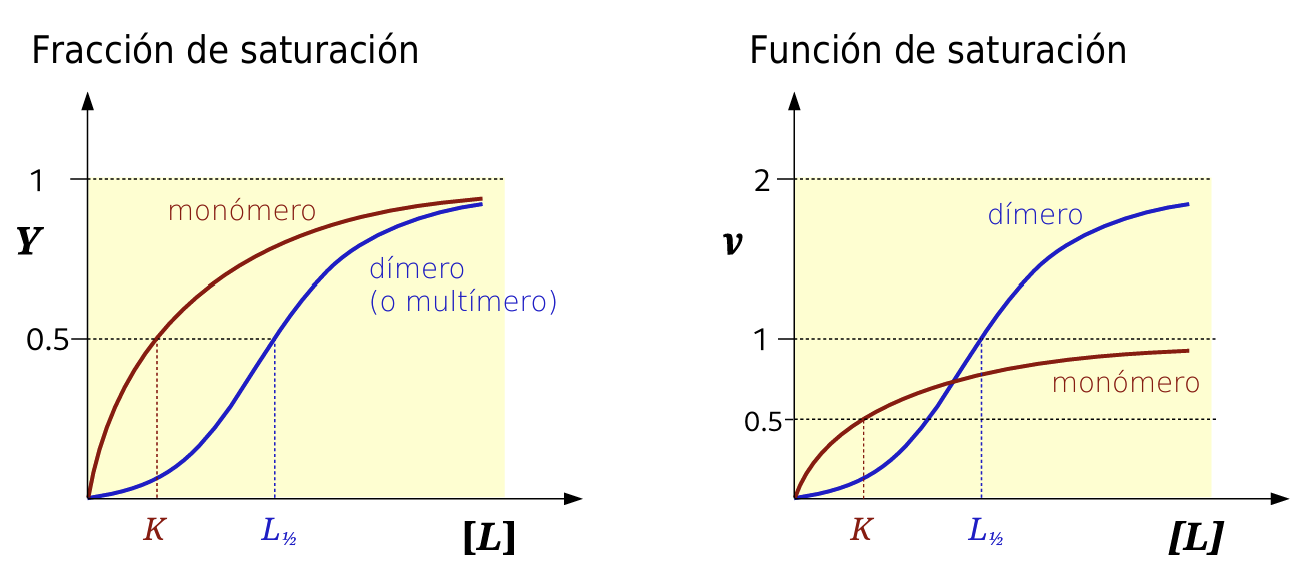
¿Cuál es el objetivo analítico de la ecuación de Hill y por qué es necesaria su linealización?
Se emplea para determinar experimentalmente el coeficiente de Hill (c) y caracterizar cuantitativamente el efecto cooperativo
Se requiere una linealización porque la curva sigmoidea directa no permite una lectura inmediata de la cooperatividad ni de los parámetros termodinámicos de afinidad

¿Cómo se deduce algebraicamente la ecuación de la recta de Hill a partir de la fracción de saturación?
Partiendo de Y=K+[L]c[L]c:
Y1=[L]cK+[L]c=[L]cK+1
Y1−1=[L]cK⟹Y1−Y=[L]cK
1−YY=K[L]c
log(1−YY)=clog[L]−logK
log(1−YY)=clog[L]−clogL1/2
que corresponde a una recta y = mx + b (donde y = cx - cb)

En la representación de Hill con datos experimentales reales, ¿en qué tramo se sitúa la recta con pendiente c y qué ocurre en los extremos?
La recta con pendiente c se encuentra exclusivamente en la parte central de la curva (alrededor de la semisaturación)
En los extremos (valores a muy baja saturación y valores cercanos a la alta saturación), los puntos se desvían de la recta central y se produce una curvatura cuyas asíntotas tienden a rectas de pendiente 1
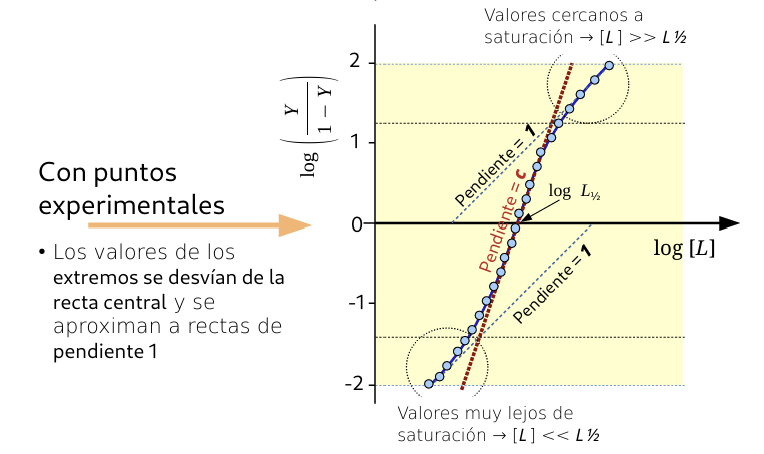
¿Cuál es la causa biofísica de que los extremos de la representación de Hill presenten pendiente igual a 1?
Una pendiente igual a 1 representa ausencia de cooperatividad (comportamiento no cooperativo)
A concentraciones muy bajas de ligando ([L] << L1/2): Todos los sitios están libres; la unión de un ligando a una molécula de proteína ocurre de forma aislada, de modo que la proteína se comporta como si sus n sitios fuesen independientes (además de presentar baja afinidad inicial y mayor error experimental).
A concentraciones muy altas de ligando ([L] >> L1/2): Casi todos los sitios están ocupados excepto el último de cada molécula; la entrada del último ligando ocurre también de manera no cooperativa en un sitio libre final aislado
¿Cómo se utiliza el valor del coeficiente de Hill (c) obtenido de la pendiente central para evaluar la cooperatividad y qué requisito estructural impone c > 1?
Se toma el valor de c de la pendiente en la parte central y se compara con el número teórico de sitios de unión (n)
Si c > 1, existe cooperatividad positiva
Para que c > 1 y exista cooperatividad, la proteína debe tener obligatoriamente al menos dos sitios de unión (n ≥ 2)

¿Qué información termodinámica proporciona el punto de corte con el eje X de la parte central en la representación de Hill?
En el eje X, log(Y / 1 - Y) = 0 (lo que implica semisaturación, ya que Y / 1 - Y = 1 → Y = 0.5
Al igualar la ecuación central a cero:
clog[L]−clogL1/2=0⟹log[L]=logL1/2
El punto de corte central en el eje X da directamente el valor de log L1/2 (afinidad global o media del sistema)
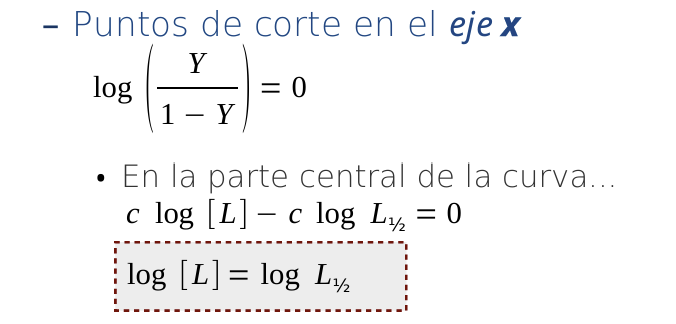
¿Cómo se obtienen las constantes microscópicas de disociación del primer y último ligando (K1 y Kn) a partir de las rectas asintóticas de los extremos?
Trazando las prolongaciones de las rectas de pendiente = 1 hasta cortar el eje X (log(Y / 1 - Y) = 0, donde log[L] = logK):
La recta asintótica inferior (baja concentración de ligando, todos los sitios libres) corta en el eje X en logK1, que define la constante termodinámica de unión del primer ligando (menor afinidad).
La recta asintótica superior (cerca de la saturación) corta en el eje X en logKn, que define la constante de unión del último ligando (mayor afinidad, Kn < K1 en cooperatividad positiva)
¿Cómo se calcula la variación de energía libre estándar asociada específicamente al efecto cooperativo Δ(ΔGº)?
A partir de las energías libres estándar de fijación del primer ligando (ΔG10 = -RTlnK1) y del último ligando (ΔGnº = -RTlnKn):
Δ(ΔG0)=−RT(lnK1−lnKn)=RT(lnKn−lnK1)
Δ(ΔG0)=RTln(K1Kn)
Esta magnitud termodinámica cuantifica la diferencia neta de energía libre originada por la interacción cooperativa entre sitios

¿Cuáles son los dos estados conformacionales asumidos en los modelos de cooperatividad y cómo influye la unión del ligando (L)?
Estado T (tenso): De baja afinidad por el ligando L (representado comúnmente con forma cuadrada)
Estado R (relajado): De alta afinidad por el ligando L (representado comúnmente con forma circular)
La unión progresiva de L induce una transición conformacional del estado T al estado R (T → R), lo que disminuye progresivamente la proporción T/R en el sistema. En la actualidad se sabe que ambos modelos son válidos parcialmente y los sistemas reales suelen presentar comportamientos intermedios
¿Qué establece el Modelo Concertado (Monod, Wyman y Changeux - MWC, 1965) respecto al equilibrio y a la simetría de las subunidades?
Equilibrio permanente: Siempre existe un equilibrio dinámico entre las formas T y R, tanto en presencia como en total ausencia de ligando
Conservación estricta de la simetría: Todas las subunidades dentro de un mismo oligómero se encuentran simultáneamente en el mismo estado conformacional (todas sus subunidades cambian de forma a la vez). No existen estados ni especies híbridas intermedias dentro de una misma molécula

¿Qué es la constante alostérica (L o c) en el modelo concertado (MWC)?
Es la constante de equilibrio que define la relación o cociente entre la concentración de la forma T y la forma R en ausencia total de ligando: L0 = [T0] / [R0]
En condiciones basales basales suele haber mucha más cantidad de forma T que de R (alta proporción [T]/[R])
¿Cómo explica el modelo concertado (MWC) el desplazamiento del equilibrio por el principio de Le Chatelier?
Aunque el ligando se puede unir tanto a T como a R, tiene una afinidad mucho mayor por la conformación R. La unión de L a la forma R retira moléculas de R libres del equilibrio basal; por el principio de Le Chatelier, el sistema responde desplazando el equilibrio general de T → R para reponerlas, aumentando progresivamente la proporción de oligómeros en estado R conforme aumenta la concentración de ligando
¿Por qué la cooperatividad en el modelo concertado (MWC) se considera un efecto macroscópico?
Porque el aumento de afinidad aparente no se debe a un cambio en la afinidad intrínseca de las subunidades, sino al desplazamiento del equilibrio conformacional hacia el estado R, de mayor afinidad
¿Qué postula el Modelo Secuencial (Koshland, Némethy y Filmer - KNF, 1966) sobre el estado de la proteína en ausencia de ligando y en saturación total?
En ausencia de ligando solo existe el estado T (toda la proteína se encuentra en baja afinidad)
La proteína con estructura donde todas las subunidades son R solo existe en el estado de saturación completa
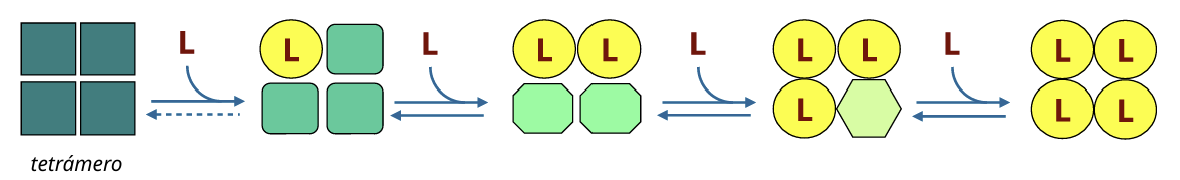
En el modelo secuencial (KNF), ¿qué ocurre con la simetría y la existencia de híbridos en los estados de saturación intermedios?
A diferencia del modelo MWC, en los estados de saturación intermedios la estructura no es simétrica y SÍ existen híbridos conformacionales (moléculas donde conviven subunidades en estado T junto a subunidades en estado R o intermedias)
¿Cuál es el mecanismo de transmisión de la cooperatividad paso a paso en el modelo secuencial (KNF)?
La unión del ligando a una subunidad individual en forma T induce un ajuste conformacional directo que la convierte a la forma R
Este cambio altera la estructura cuaternaria a través de las superficies de interacción entre subunidades vecinas
Dicha tensión induce cambios en la estructura terciaria de las subunidades adyacentes, aumentando su afinidad por el ligando de manera paulatina o secuencial antes de que se unan a él
¿Por qué la cooperatividad en el modelo secuencial (KNF) se define como un efecto microscópico?
Porque el cambio se produce a nivel de cada molécula individual, donde la unión sucesiva de cada ligando varía paso a paso la estructura interna y la afinidad de las subunidades vecinas de esa misma proteína a medida que se satura
¿Cómo se define el alosterismo o efecto heterotrópico en su concepción clásica?
Es un mecanismo de regulación molecular que se produce cuando una proteína presenta sitios de unión no equivalentes, permitiendo que diversos ligandos distintos interactúen con ella, cada uno en su propio sitio específico
El término alostérico alude a un efecto que se origina en un sitio determinado de la proteína pero actúa modificando las propiedades de unión de otro sitio distinto y distante
¿Qué tipos de ligandos reguladores o efectores alostéricos existen y qué efecto funcional inducen sobre la proteína?
Los moduladores interconvierten a la proteína entre formas más activas y menos activas mediante cambios conformacionales
Efector positivo (activador, A): Facilita la unión del ligando principal/sustrato (L) y favorece la conformación o estado R (activa)
Efector negativo (inhibidor, I): Dificulta la unión de L y favorece la conformación o estado T (inactiva/menos activa)
¿Cómo opera el alosterismo en proteínas monoméricas ante un activador frente a un inhibidor?
Activador: En estado basal el sitio para el sustrato no es funcional/accesible; la unión previa del ligando activador en su sitio induce un cambio conformacional que genera o expone el sitio específico donde ya puede entrar el sustrato
Inhibidor: El sustrato se une de forma normal a la proteína nativa; no obstante, al unirse el inhibidor a su propio sitio, desencadena un cambio conformacional que modifica la cavidad del sustrato, impidiendo que este pueda seguir unido o vuelva a acoplarse

En proteínas multiméricas, ¿cómo se explica el efecto alostérico según la alternativa del modelo concertado (desplazamiento del equilibrio T–R)?
Se basa en desplazar el equilibrio preexistente entre las poblaciones de oligómeros simétricos T y R:
El activador (efector positivo) se une preferentemente al estado R (mayor afinidad), desplazando el equilibrio hacia R (RA), lo que incrementa la proporción de sitios de tipo R y eleva la afinidad macroscópica global por L
El inhibidor (efector negativo) se une preferentemente al estado T (menor afinidad), desplazando el equilibrio hacia T (TA), lo que incrementa la proporción de sitios de tipo T y reduce la afinidad macroscópica por L
Limitación clave: Esta formulación concertada solo es capaz de explicar el alosterismo en proteínas multiméricas, no en monómeros

¿Cómo explica el modelo secuencial la acción de un efector en proteínas multiméricas?
Postula que el ligando alostérico o activador, al unirse directamente a una subunidad en estado T, induce una modificación estructural local directa, convirtiéndola a la forma R (forma que no existía previamente sin activador) y transmitiendo sucesivamente esa activación hacia las subunidades vecinas
¿En qué consiste el concepto moderno de «transición alostérica» (análogo al modelo KNF)?
Define el alosterismo no como un simple recuento de subunidades o simetrías fijas, sino como un cambio conformacional inducido directamente por la unión del efector que se transmite mecánicamente a través de la matriz proteica hacia sitios distantes o remotos
Puede tener efecto regulador positivo o negativo sobre la actividad en dichos sitios distantes

¿Cuáles son las tres ventajas y alcances teóricos del concepto moderno de transición alostérica frente al alosterismo clásico?
Validez universal: Resulta plenamente aplicable tanto a proteínas monoméricas como a proteínas multiméricas (ej. tetrámeros)
Unificación mecanística: Es capaz de explicar bajo un mismo principio biofísico tanto el efecto heterotrópico (alosterismo clásico entre sitios distintos) como el efecto homotrópico (cooperatividad clásica entre sitios equivalentes del mismo ligando)
Generalización conceptual: Permite ampliar y extender la definición de fenómeno alostérico a otros procesos biológicos y macromoleculares más diversos