Organización de la célula - Tema 3: El citoesqueleto
 Call Kai
 Learn
 Practice Test
 Spaced Repetition
 Match
 Flashcards
 Knowt Play
1/113

There's no tags or description
Looks like no tags are added yet.
Name | Mastery | Learn | Test | Matching | Spaced | Call with Kai | Chat |
|---|
No analytics yet
Send a link to your students to track their progress
114 Terms
¿Cómo está constituido el citoesqueleto y en qué funciones celulares clave participa?
Está formado por una red de proteínas citosólicas esenciales para la organización intracelular, el tráfico de orgánulos y la división celular
¿A qué propiedades mecánicas y dinámicas del citoplasma celular contribuyen los componentes del citoesqueleto?
Contribuyen a la viscosidad, resistencia, elasticidad, contractilidad y remodelación del citoplasma
¿Cómo se define el ensayo de viscosímetro (fuerzas de estiramiento) para analizar las propiedades mecánicas de los polímeros del citoesqueleto?
Es una técnica en la que redes de filamentos (a igual concentración) se someten a fuerzas de cizalla o estiramiento (deforming force / shear force) en una cámara para medir el grado de deformación (deformation / degree of stretch) y el punto de rotura de cada polímero
¿Cómo se comportan los microtúbulos en el viscosímetro ante la aplicación de fuerzas deformantes?
Se deforman con mucha facilidad con fuerzas bajas (curva con pendiente vertical acusada), pero son los primeros en romperse (al estirarse más del 150% de su longitud original) y comienzan a fluir sin límite

¿Cómo se comportan los filamentos de actina en el viscosímetro ante la aplicación de fuerzas deformantes?
Son mucho más rígidos (se deforman muy poco ante tensiones iniciales), pero también se rompen con facilidad cuando la fuerza supera un umbral crítico

¿Cómo se comportan los filamentos intermedios (ej. vimentina) en el viscosímetro frente a fuerzas deformantes?
Se deforman con facilidad al inicio pero son los más resistentes a la tracción y deformación: son los únicos que no se rompen al aplicar grandes fuerzas, soportando grandes tensiones sin fracturarse para mantener la integridad mecánica celular
¿Por qué la rigidez no es la propiedad principal del citoesqueleto a pesar de aportarla a la célula?
Porque sus componentes son altamente dinámicos y cambiantes, debiendo adaptarse continuamente a la actividad funcional de la célula. Los cambios estructurales están finamente regulados por proteínas accesorias en respuesta a señales celulares (ej. remodelación de microtúbulos y filamentos de actina durante la división celular)

¿Mediante qué mecanismo se reorganiza dinámicamente el citoesqueleto y en qué componentes se aplica?
Se reorganiza mediante procesos acoplados de polimerización y despolimerización en equilibrio reversible entre pequeñas subunidades solubles (monómeros proteicos, small soluble subunits) y largos polímeros filamentosos (large filamentous polymers). Es característico tanto de los microfilamentos de actina como de los microtúbulos

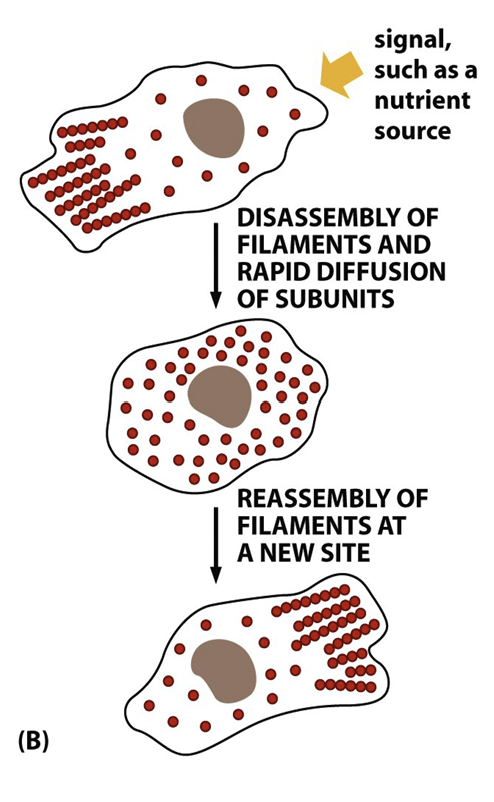
Ante una señal externa (ej. una fuente de nutrientes), ¿cuál es la secuencia de eventos en el desensamblaje y reensamblaje del citoesqueleto para la migración celular?
Se produce el desensamblaje de los filamentos preexistentes (disassembly) y la rápida difusión citosólica de las subunidades solubles libres
Ocurre la repolimerización orientada (reassembly) hacia la dirección en la que la célula va a avanzar (hacia la fuente de la señal)
Todo el proceso está coordinado por cascadas de señalización intracelular que controlan con precisión la velocidad y la respuesta celular específica para cada señal
¿En la polimerización, cómo se unen las subunidades para formar los filamentos del citoesqueleto y qué consecuencia tiene su asociación lateral?
Las subunidades (monómeros de actina o dímeros de tubulina) se unen mediante uniones no covalentes y forman filamentos que se asocian lateralmente, originando estructuras muy dinámicas en sus extremos (donde la velocidad de polimerización depende directamente de los extremos)
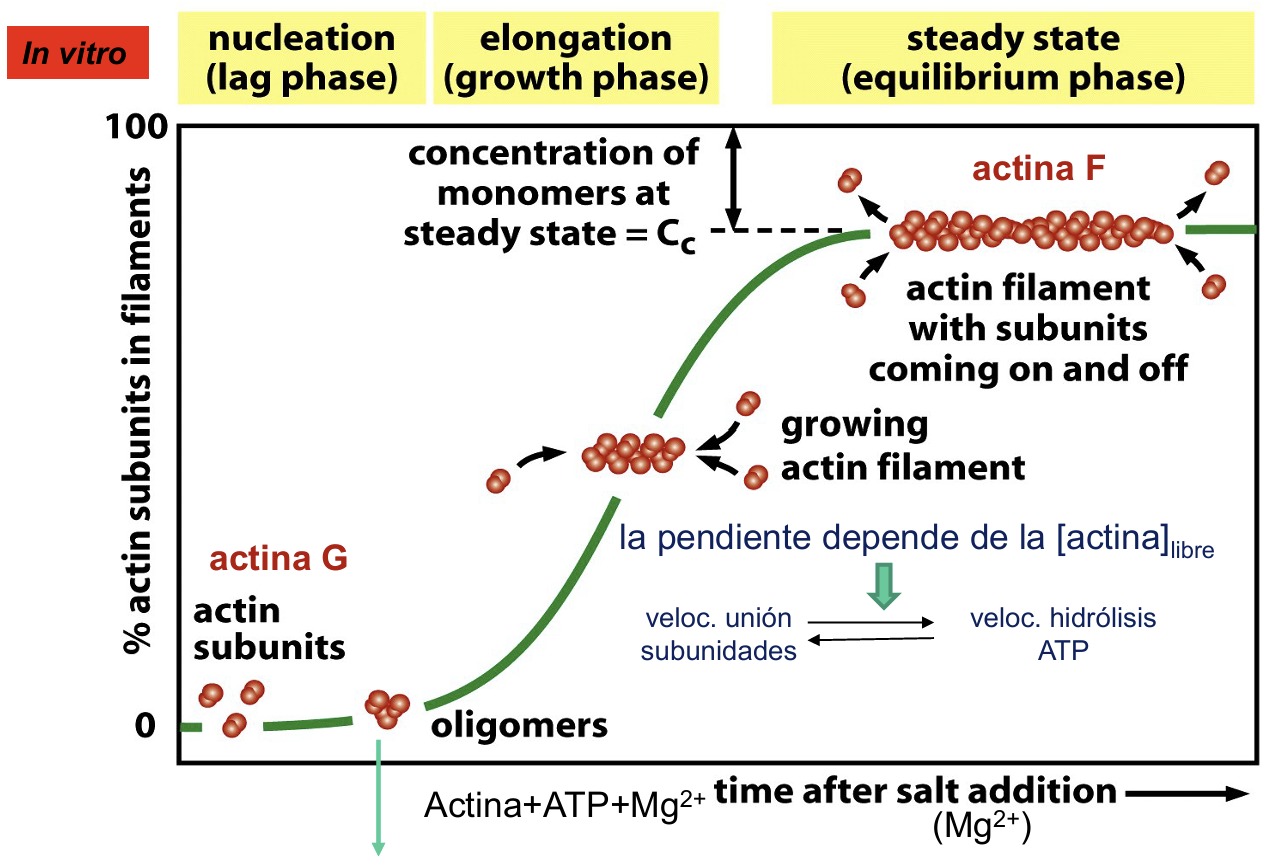
¿En qué consiste el ensayo in vitro para medir la cinética de formación de filamentos de actina?
Consiste en mezclar tampón fosfato, una sal (fosfato + Mg2+), nucleótidos trifosfato (ATP o GTP) y, finalmente, los monómeros correspondientes (actina G), monitorizando a lo largo del tiempo el porcentaje de subunidades incorporadas a los filamentos tras la adición de la sal
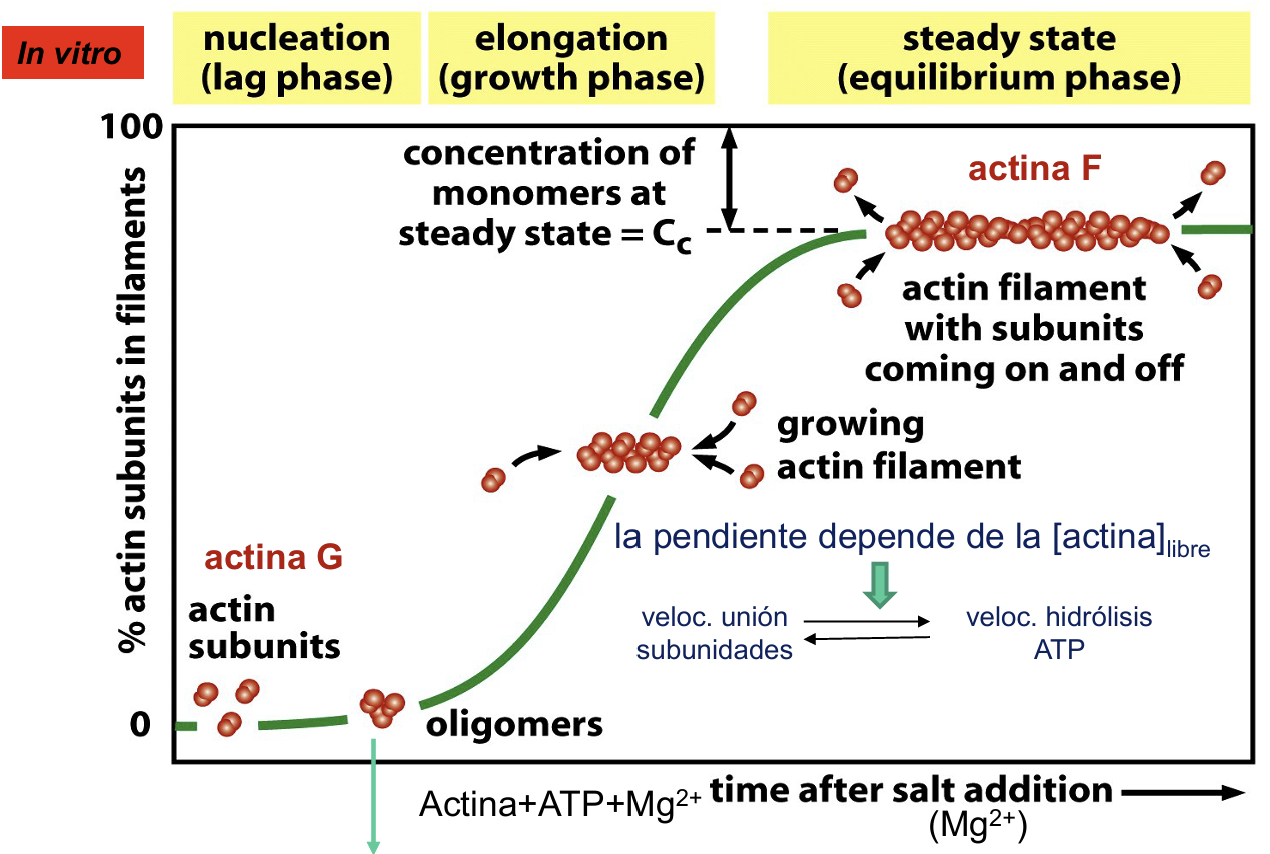
¿Cuáles son las tres fases de la curva de polimerización de actina in vitro y qué ocurre en cada una?
Fase lag o de nucleación (nucleation): Curva inicial muy lenta donde los monómeros colisionan entre sí hasta formar pequeños agregados u oligómeros
Fase de crecimiento o elongación (growth phase): Una vez formados los oligómeros, la incorporación de subunidades se acelera exponencialmente alargando el filamento. Su pendiente depende de la [actina]libre (balance entre velocidad de unión de dímeros/subunidades y velocidad de hidrólisis de ATP)
Fase de equilibrio o estado estacionario (steady state / equilibrium phase): Se alcanza una meseta de equilibrio dinámico entre la concentración de actina libre (actina G monomérica) y la actina integrada en filamentos (actina F polimérica), donde las subunidades entran y salen a la misma velocidad (subunits coming on and off)

¿Qué es la concentración crítica de actina (Cc) y de qué depende en la célula?
Es la concentración fija de monómeros de actina libre a la cual se alcanza el estado estacionario (equilibrio entre polimerización y despolimerización). Esta concentración depende de la cantidad total de monómeros disponibles en la célula
¿Qué es el intercambio rotatorio?
El proceso mediante el cual un filamento proteico polimérico mantiene constante su longitud añadiendo subunidades proteicas en un extremo y perdiendo subunidades por el extremo opuesto
¿Por qué la formación de los agregados iniciales crea una barrera cinética y cómo aprovecha la célula esta propiedad?
Los oligómeros iniciales son termodinámicamente muy inestables y tienden a desensamblarse, lo que genera una barrera cinética que convierte a la nucleación en la etapa limitante del proceso. La célula aprovecha esta barrera como mecanismo de control para iniciar la polimerización exclusivamente en lugares y momentos determinados
¿Qué estrategias emplea la célula in vivo para iniciar la polimerización con rapidez y eficacia en sitios concretos sin sufrir la fase lag?
Despolimeriza sus redes únicamente hasta la formación de oligómeros (a partir de fragmentos de filamentos preexistentes), evitando volver a monómeros aislados (“semillas preformadas”)
Utiliza proteínas reguladoras / auxiliares que facilitan activamente la nucleación en localizaciones subcelulares específicas
Nucleación: proceso por el cual unas pocas subunidades de una proteína se unen y forman un pequeño agregado inicial, llamado núcleo, a partir del cual puede crecer un filamento
¿Qué ocurre con la curva de polimerización cuando se añaden «semillas preformadas» (preformed filament seeds) y qué valor permanece inalterado?
Se elimina por completo la fase de nucleación (no hay fase lag), iniciándose un crecimiento exponencial directo desde el tiempo cero
La concentración crítica permanece inalterada

¿Por qué el citoesqueleto debe considerarse un «sistema unitario»?
Porque sus tres componentes principales (microtúbulos, microfilamentos y filamentos intermedios) no funcionan de manera aislada, sino que se co-regulan mutuamente coordinando la mecánica, arquitectura y señalización celular
¿Cuáles son las subunidades, el diámetro y la arquitectura estructural de los Microtúbulos?
Subunidades: Heterodímeros de tubulina (ɑ-tubulina y ʙ-tubulina)
Diámetro: 25 nm exterior (15 nm interior)
Estructura: Tubo cilíndrico hueco cuya pared está formada por 13 protofilamentos paralelos (cadena lineal de subunidades proteicas unidas extremo con extremo, que se asocia de forma lateral con otras cadenas)
Polaridad: Presentan extremos polares bien definidos: extremo (+) y extremo (-)

¿Cuáles son las funciones celulares específicas de los Microtúbulos?
Organización y mantenimiento de la forma y de la polaridad en células animales
Movimiento y segregación de los cromosomas (huso mitótico)
Transporte intracelular y movimiento de orgánulos / tráfico de vesículas
Motilidad celular mediada por el axonema (cilios y flagelos)
¿Cuáles son las subunidades, el diámetro y la arquitectura estructural de los Microfilamentos (Filamentos de actina)?
Subunidades: Monómeros globulares de actina G
Diámetro: 7-8 nm
Estructura: Dos cadenas lineales de actina F entrelazadas helicoidalmente formando un filamento
Polaridad: Presentan extremos polares estructurales: extremo (+) y extremo (-)

¿Cuáles son las funciones celulares específicas de los Microfilamentos de actina?
Contracción muscular
Locomoción / motilidad celular ameboide
Movimiento de corrientes citoplasmáticas (cytoplasmic streaming)
Citocinesis (anillo contráctil de división)
Mantenimiento de la forma celular en células animales
Transporte y tráfico vesicular intracelular
¿Cuáles son las subunidades, el diámetro y la arquitectura estructural de los Filamentos Intermedios?
Subunidades: Proteínas fibrilares diversas organizadas en dímeros (que forman tetrámeros y protofilamentos)
Diámetro: 8–12 nm
Estructura: 8 protofilamentos unidos por sus extremos mediante superposiciones escalonadas empaquetadas fuertemente
Polaridad: NO tienen polaridad (carecen de extremos (+) o (-) debido a la disposición antiparalela y simétrica de sus tetrámeros)

¿Cuáles son las funciones celulares específicas de los Filamentos Intermedios?
Soporte estructural mecánico y mantenimiento de la forma de la célula animal
Formación de la lámina nuclear y andamiaje del núcleo celular
Refuerzo estructural de células nerviosas a nivel del axón (neurofilamentos / NF proteins)
Mantenimiento y alineamiento de las fibras musculares (desmina)
¿Cuál es la estructura física básica, el diámetro y la localización celular predominante de los filamentos de actina (microfilamentos)?
Son polímeros helicoidales de dos cadenas de la proteína actina, con estructura flexible y un diámetro de 5 a 9 nm (típicamente 7-8 nm)
Aunque se dispersan por toda la célula en forma de haces lineales (bundles), redes bidimensionales y geles tridimensionales, están altamente concentrados en el córtex celular, justo por debajo de la membrana plasmática

¿Qué es un «haz de filamentos» de actina y qué relación guarda la actina con otras proteínas celulares?
Un haz es un conjunto o grupo de filamentos de actina que se disponen orientados en la misma dirección
La actina es una de las proteínas más abundantes de la célula e interacciona con numerosas proteínas accesorias integradas en redes masivas que regulan procesos como la división celular, polaridad, gemación, secreción, endocitosis y dinámica de filamentos

¿Qué procesos celulares fundamentales dependen directamente de los cambios dinámicos del citoesqueleto de actina?
Contractilidad celular (junto a la miosina)
Migraciones celulares (fuerza de contracción/empuje para el desplazamiento)
Fagocitosis (emisión de pseudópodos)
Invasión bacteriana (patógenos intracelulares que se impulsan mediante la polimerización de colas de actina en su parte trasera)
Crecimiento y guía del cono axónico neuronal
Movimiento/diapédesis de linfocitos T a través de las fibras de colágeno tras una inflamación

¿Cómo se define la transición entre actina G y actina F y qué característica de polaridad adquiere el filamento?
Los monómeros globulares solubles (actina G) se activan y ensamblan para formar filamentos poliméricos (actina F)
La propia subunidad monomérica de actina G posee intrínsecamente dos polos estructuralmente diferenciados; al polimerizar en la misma orientación cabeza-cola, esta asimetría se transfiere y conserva a lo largo de todo el filamento de actina F, generando un extremo positivo (plus end) y un extremo negativo (minus end)

¿Cuál es la disposición geométrica precisa y los parámetros periódicos de la doble hélice de actina F?
El filamento está formado por dos protofilamentos paralelos que se enrollan uno sobre otro con rotación dextrógira (giro hacia la derecha)
El paso de rosca o medio giro helicoidal mide 36-37 nm, lo que equivale aproximadamente a 13.5 monómeros de actina por repetición estructural

¿Qué nucleótido une la actina G y en qué extremo del filamento se localiza preferentemente antes de la hidrólisis?
Cada monómero de actina G une un nucleótido en una hendidura central: se une en forma de ATP en el extremo positivo (plus end), que es por donde se produce de manera predominante la polimerización. Tras ensamblarse en el polímero, el ATP se hidroliza de forma espontánea convirtiéndose en ADP hacia el cuerpo del filamento

¿Cómo se emplean filamentos decorados de miosina para estudiar la polimerización de la actina?
Se purifica miosina nativa
Se realiza una proteólisis enzimática controlada inicial (dividiéndola en meromiosina pesada - HMM y ligera - LMM)
Se aplica un tratamiento prolongado con la proteasa tripsina, escindiendo los dominios globulares de las cabezas para aislar los fragmentos S1 (Subfragment-1)
Los fragmentos S1 purificados se añaden a los filamentos de actina como reactivo de marcaje esteoroselectivo

¿Qué patrón estructural generan los fragmentos S1 de miosina al unirse a la actina y cómo diferencian ambos extremos al microscopio electrónico?
Las cabezas S1 se unen de manera estereoespecífica con inclinación oblicua a lo largo del filamento, generando un «patrón en punta de flecha» (arrowhead pattern / filamentos decorados):
Extremo barbado o romo (barbed end): Corresponde al extremo (+) (plus end)
Extremo puntiagudo (pointed end): Apunta hacia la dirección de la flecha y corresponde al extremo (−) (minus end)

En un experimento de elongación a partir de semillas decoradas con miosina (decorated seed), ¿qué se observa respecto a la velocidad de crecimiento de ambos extremos?
Se observa que la polimerización es marcadamente asimétrica: el extremo bar lentobado (+) crece a una velocidad mucho mayor y con un filamento nuevo mucho más largo, mientras que el extremo puntiagudo (-) muestra un crecimiento notablemente menor y más lento
¿Por qué el extremo (+) es cinéticamente más dinámico que el extremo (-) en los filamentos de actina?
Porque el extremo (+) presenta mayores tasas cinéticas tanto de asociación (kon) como de disociación (koff) de subunidades:
Polimeriza y despolimeriza a mucha mayor velocidad que el extremo (-) debido a la conformación tridimensional y accesibilidad de la hendidura del monómero en ese polo
En las gráficas de elongación frente a la [actina], la recta del extremo barbado (+) muestra una pendiente mucho más pronunciada que la del extremo puntiagudo (-)
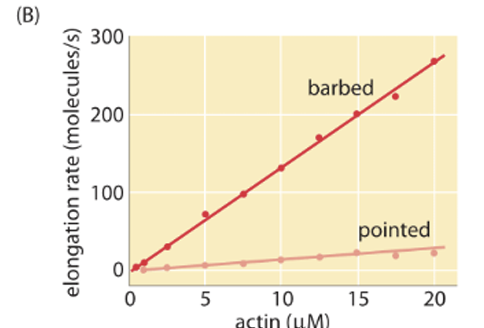
¿Cómo aprovecha termodinámicamente la célula los procesos espontáneos de polimerización y despolimerización de la actina para realizar trabajo mecánico?
La célula aprovecha las variaciones en la energía libre (ΔG) desprendidas de la hidrólisis de nucleótidos y del ensamblaje / desensamblaje espontáneo para realizar trabajo mecánico que requiere energía. Esto permite, por ejemplo, empujar físicamente la membrana celular hacia adelante en el frente de migración (lamelipodios) o arrastrar cargas moleculares y vesículas ancladas al filamento
¿Qué ocurre en el estado estacionario (steady state) de un filamento de actina y por qué se mantiene constante su longitud?
Las subunidades se ensamblan en el extremo (+) y se desensamblan en el extremo (−) a velocidades exactamente idénticas. Como la tasa de polimerización en un extremo se iguala con la de despolimerización en el otro, no hay crecimiento neto y se mantiene la longitud del polímero

¿Cómo se define formal y cinéticamente la concentración crítica (Cc) de actina?
Es el nivel de concentración de actina G libre en el cual la dinámica de adición y eliminación de monómeros no produce modificación neta en la longitud del filamento (equilibrio dinámico entre actina G y actina F)
A partir de este valor, los filamentos comienzan a polimerizar netamente
Matemáticamente se define como el cociente de constantes de velocidad:
Cc=konkoff
Cada extremo tiene sus propias constantes (kon y koff) y, por tanto, cada extremo posee su propia Cc
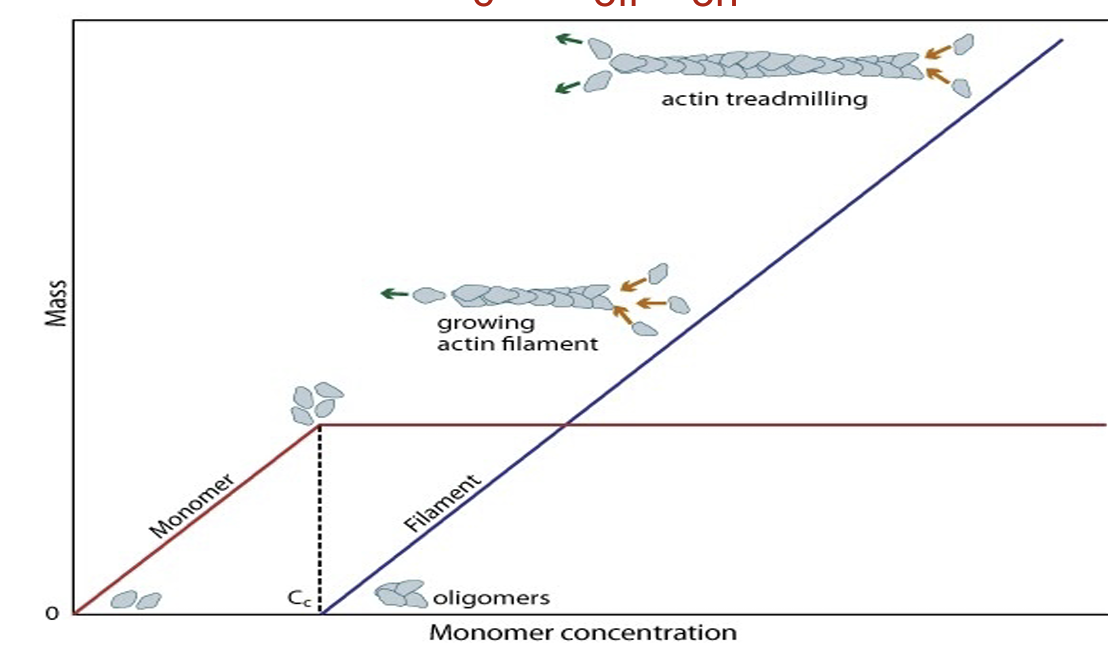
¿En qué consiste el fenómeno de recambio rotatorio (treadmilling) de la actina y bajo qué condiciones de concentración ocurre?
Ocurre a concentraciones de subunidades libres intermedias, situadas entre la concentración crítica del extremo barbado y la del extremo puntiagudo: Cc(+) < [actina]libre < Cc(-)
Se genera un flujo neto continuo de subunidades que entran por el extremo (+) y salen por el extremo (-) a través del filamento sin alterar su longitud total

¿Cómo se demuestra experimentalmente el recambio rotatorio (treadmilling) mediante marcaje con fluorocromos?
Se añade un pulso corto de monómeros marcados con un fluorocromo rojo intenso. Con el tiempo, se observa que los monómeros marcados entran por el extremo (+) y se van desplazando progresivamente a lo largo del cuerpo del filamento hasta salir finalmente por el extremo (-), demostrando el flujo unidireccional sin variación de la longitud global
¿Qué son las ABPs (Actin Binding Proteins) y cuáles son sus cinco funciones reguladoras principales?
Son proteínas accesorias que modulan espacial y temporalmente la dinámica de polimerización, organización y recambio de los filamentos de actina. Sus cinco funciones son:
Nucleación de filamentos
Secuestro de monómeros
Estabilización / desestabilización de filamentos
Formación de haces y redes de filamentos
Anclaje a la membrana plasmática
¿Qué proteínas participan en la nucleación de filamentos de actina y qué tipo de arquitectura genera cada una?
Complejo ARP (ARP complex): Nuclea el ensamblaje manteniéndose unido al extremo (-) y genera ramificaciones con cierta angulación para constituir redes tridimensionales (webs)
Formina (formin): Nuclea el ensamblaje manteniéndose asociada al extremo (+) en crecimiento, dirigiendo la formación de polímeros lineales paralelos

¿Cómo regulan el conjunto de monómeros libres la timosina y la profilina, y cuál de ellas suele predominar en la célula?
Timosina (thymosin): Se une a los monómeros de actina G secuestrándolos; evita o retarda la polimerización al impedir la hidrólisis del ATP y su incorporación al filamento
Profilina (profilin): Ejerce la acción contraria; se une a las subunidades y favorece y acelera la polimerización / elongación facilitando su adición al extremo (+)
En la mayoría de las células predomina la timosina, manteniendo una reserva abundante de monómeros solubles sin que se polimericen espontáneamente

¿Qué funciones desempeñan la cofilina, la gelsolina, las proteínas caperuza y la tropomiosina en la dinámica y estabilidad de los filamentos?
Cofilina (cofilin): Se une a filamentos de ADP-actina y acelera activamente su despolimerización / desensamblaje
Gelsolina (gelsolin): Corta y fragmenta los filamentos de actina y se une al nuevo extremo (+) generado
Proteínas caperuza o de encasquetamiento (capping protein): Se unen al extremo (+) ("cubriéndolo") y previenen tanto el ensamblaje como el desensamblaje por dicho extremo
Tropomiosina (tropomyosin): Se une a lo largo de los lados del filamento de actina ya formado y lo estabiliza mecánicamente

¿Qué proteínas intervienen en la organización de haces y redes de actina, y de qué depende su función?
Intervienen fimbrina (fimbrin), ɑ-actinina (ɑ-actinin) (para haces compactos o contráctiles) y filamina (filamin) (para entrecruzamiento en redes laxas bidimensionales / tridimensionales)
Su actuación depende del estado fisicoquímico del citoplasma y de la función requerida en cada región específica de la célula
¿Qué proteínas median el anclaje del citoesqueleto de actina a la membrana plasmática?
La espectrina (spectrin) y el complejo de proteínas ERM (Ezrina, Radixina, Moesina)
¿Cuáles son las tres estructuras principales de haces o redes de actina en una célula (como un fibroblasto) y qué ABP organiza cada una?
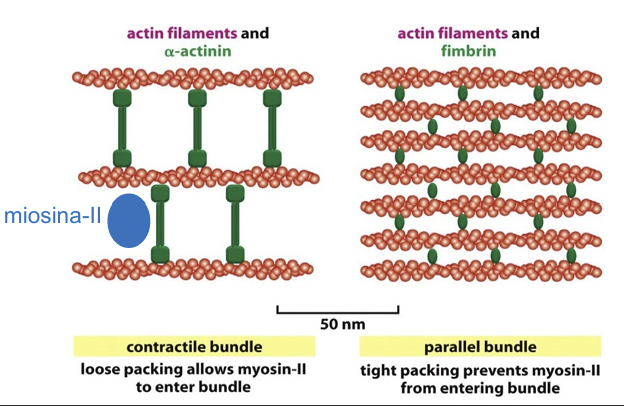
Fibras de estrés (contractile bundle): Haces contráctiles organizados por ɑ-actinina, que separan más los filamentos entre sí
Red del córtex celular (gel-like network): Malla tridimensional cortical organizada por dímeros de filamina
Filopodios (tight parallel bundle): Haces paralelos densos organizados por fimbrina

¿Qué son los filopodios, de dónde se originan y cuál es su orientación de polaridad?
Son prolongaciones digitiformes puntiagudas que surgen a partir del lamelipodio (prolongación laminar transitoria del frente de migración celular rica en actina)
Sus filamentos van todos en una misma dirección empaquetados por fimbrina, por lo que presentan polaridad orientada

¿Por qué los haces unidos por ɑ-actinina permiten la contracción muscular/celular con miosina mientras que los de fimbrina no?
Los dímeros de ɑ-actinina son más largos, dejando una separación amplia entre filamentos de actina que permite que entre e interaccione la miosina-II, posibilitando la contracción del haz
La fimbrina es monomérica, corta y compacta; genera un empaquetamiento apretado (tight packing) donde no cabe la miosina, impidiendo cualquier actividad contráctil
¿Cómo está estructurado el dímero de filamina y qué tipo de entramado genera en el córtex celular?
Está formado por dos subunidades polipeptídicas alargadas unidas por un extremo que configuran un brazo flexible en forma de "V" con una angulación marcada
Al unirse sus extremos a filamentos de actina en direcciones casi perpendiculares, forma redes tridimensionales laxas tipo gel en lugar de haces paralelos, confiriendo integridad mecánica al córtex celular
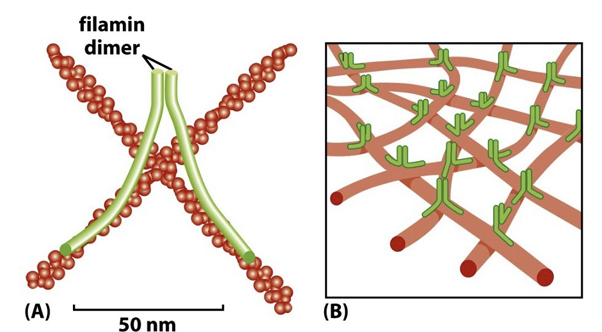
¿Qué función tienen las ABPs de entrecruzamiento de actina?
Un subtipo de ABPs (ej. filamina, fimbrina, Arp 2/3) y unen entre sí los filamentos de actina, formando haces o redes que contribuyen a la estructura y motilidad celular
¿Cómo se une el dímero de filamina a los filamentos de actina?
Se une en sentidos inversos, entrecruzando los filamentos y dejando espacio entre ellos
¿Qué permite el espacio generado por la filamina entre los filamentos de actina?
Permite la entrada de moléculas de miosina, cuya interacción con la actina produce contracción
¿Qué complejo de ABPs participa en la nucleación de nuevos filamentos de actina?
El complejo ARP2/3, que favorece la formación de nuevos filamentos y acelera la formación de redes ramificadas en el córtex celular
¿Por qué los monómeros aislados Arp2 y Arp3 no pueden formar parte ni ensamblarse directamente en el filamento de actina?
Debido a diferencias estructurales con la actina nativa, especialmente marcadas en su extremo menos (-), lo que les impide incorporarse de forma estándar al polímero
¿Cómo se activa el complejo ARP 2/3 y qué cambio experimenta para permitir la nucleación?
Requiere la unión de un factor de activación (como proteínas de la familia WASP (proteínas reguladoras que activan el complejo Arp2/3, promoviendo la nucleación y ramificación de filamentos de actina, lo que favorece la motilidad celular)). Esta unión desencadena un cambio conformacional en el complejo que aproxima y orienta a Arp2 y Arp3 junto a otras proteínas accesorias, adoptando una estructura que los monómeros de actina reconocen para iniciar la polimerización

En un filamento nucleado por ARP 2/3, ¿por qué extremo se produce la adición de monómeros de actina y dónde queda ubicado el complejo?
Los monómeros de actina se unen y polimerizan por el extremo más (+) (plus end)
La nucleación ocurre en el extremo menos (-) (minus end), permaneciendo el complejo ARP anclado de forma fija a dicho polo

¿Cómo se estructura la ramificación que forma el complejo ARP 2/3 sobre un filamento de actina preexistente (contacto molecular y ángulo)?
El complejo activo establece contacto lateral con 3 subunidades de actina del filamento preexistente, el cual sirve de soporte estructural base
El nuevo filamento crece lateralmente proyectándose con una angulación exacta de 70° respecto al filamento previo

¿Cómo se coordina la dinámica de polimerización, encasquetamiento y desensamblaje mediada por ABPs en el lamelipodio?
Frente de avance (leading edge): Ocurre la nucleación por ARP 2/3 y la incorporación activa de monómeros por el extremo (+)
Límite de crecimiento: Las proteínas caperuza (capping protein) bloquean los extremos (+) de filamentos más viejos para evitar una elongación descontrolada.
Zona posterior: La cofilina induce la despolimerización y desensamblaje de los filamentos envejecidos ricos en ADP-actina (disassembly behind leading edge)
Difusión: Los monómeros liberados difunden hacia el frente de migración para volver a ser polimerizados
¿Qué ocurre con los complejos ARP cuando el filamento se despolimeriza?
Los complejos ARP se desestabilizan y se inactivan. No obstante, una vez libres pueden dirigirse nuevamente hacia el frente celular para reactivarse y reutilizarse en nuevas rondas de nucleación
¿De qué manera la polimerización de actina ramificada genera fuerza mecánica para el avance de la membrana plasmática?
La energía derivada de la hidrólisis de ATP acoplada a la adición rápida de monómeros en el extremo (+) de las redes ramificadas genera una fuerza física de propulsión que empuja directamente la membrana celular hacia adelante
¿Cómo evade la degradación lisosomal y se desplaza intracelularmente la bacteria Listeria monocytogenes?
Tras invadir la célula mediante una vacuola/fagosoma, escapa al citoplasma antes de ser ingerida por los lisosomas
Al carecer de actina propia, secuestra la actina de la célula hospedadora para propulsarse por el citosol e invadir células vecinas en el tejido formando protrusiones en la membrana

¿Qué proteína de superficie utiliza Listeria monocytogenes para interactuar con ARP 2/3 y cuál es la dinámica de su "cola de cometa"?
Expresa en un polo la proteína ActA, la cual mimetiza a las proteínas WASP activadoras del complejo ARP 2/3
ARP 2/3 induce una nucleación continua con polimerización por los extremos barbados (+) inmediatamente detrás de la superficie bacteriana (zona con la densidad de filamentos nuevos más alta)
Los filamentos permanecen estacionarios formando una estela o cola propulsora cuya parte distal se despolimeriza aleatoriamente por cofilina, impulsando a la bacteria hacia adelante

¿Cómo participan las forminas en la nucleación de actina, en qué extremo actúan y qué estructuras biomecánicas originan?
Nuclean filamentos lineales en haces cerca de la membrana plasmática uniéndose a fosfoinosítidos
El dímero de formina se ancla y permite el crecimiento continuado en el extremo (+)
Producen fibras de estrés contráctiles de acto-miosina que anclan sus terminales en los contactos focales mediadas por integrinas

¿De qué manera cooperan los dominios whisker de la formina con la profilina para acelerar el crecimiento del filamento?
Los formina whiskers contienen sitios específicos de unión para la profilina unida a monómeros de actina-ATP
Capturan estos complejos del citosol circundante y los transfieren al extremo (+) («como si comiese con dos manos»), incrementando la velocidad de adición de subunidades

¿Cómo coordinan las células los procesos de nucleación, ramificación, encasquetamiento y secuestro de actina durante la motilidad?
Mediante la integración de señales: moléculas señalizadoras regulan la actividad funcional de las ABPs en respuesta a estímulos externos, coordinando reorganizaciones globales del citoesqueleto
¿Cuáles son las dos clases principales de moléculas señalizadoras que regulan a las ABPs y qué mecanismo utiliza cada una?
Fosfolípidos de inositol (PIP2): Abundantes en balsas lipídicas (lipid rafts); ejercen regulación mediante unión directa con ABPs (ej. forminas)
Proteínas G monoméricas de la familia Rho (Rac, Rho, Cdc42): Ejercen regulación indirecta a través de cascadas intracelulares de transducción de señales
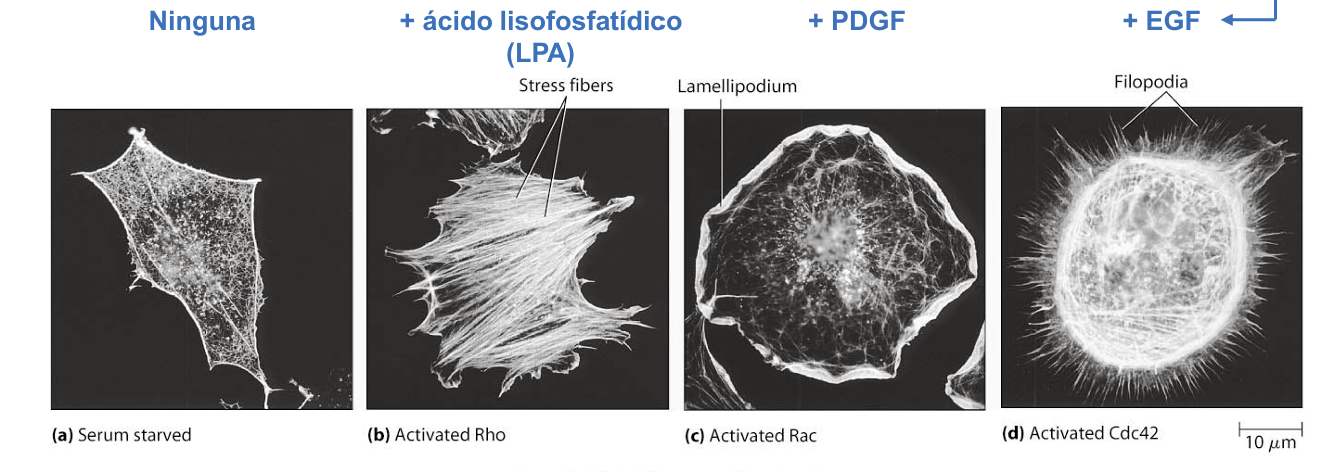
¿Qué estructuras del citoesqueleto se inducen específicamente por la adición de LPA, PDGF y EGF, y qué GTPasa Rho media cada respuesta?
LPA (ácido lisofosfatídico): Activa Rho → induce la formación de fibras de estrés contráctiles
PDGF (factor de crecimiento derivado de plaquetas): Activa la ruta de Rac → genera lamelipodios (redes ramificadas).
EGF (factor de crecimiento epidérmico): Activa Cdc42 → induce la emisión de filopodios (haces paralelos)

¿Cuál es la ruta efectora desencadenada por la activación de Rho (Rho-GTP)?
Se forman más fibras de estrés por un reclutamiento de integrinas (proteínas transmembrana que conectan la matriz extracelular con el citoesqueleto de actina, permitiendo la adhesión celular) por adhesión a contactos focales
Las Rho quinasas se encargan de los procesos de fosforilación y desfosforilación, es decir, activan o inhiben unas a otras. Mientras que, las forminas forman HACES de actina
El resultado de las Rho quinasas es la activación de la miosina, que se intercala entre los filamentos de actina, dando lugar a las fibras de estrés contráctiles

¿Cuál es la ruta efectora desencadenada por la activación de Rac (Rac-GTP)?
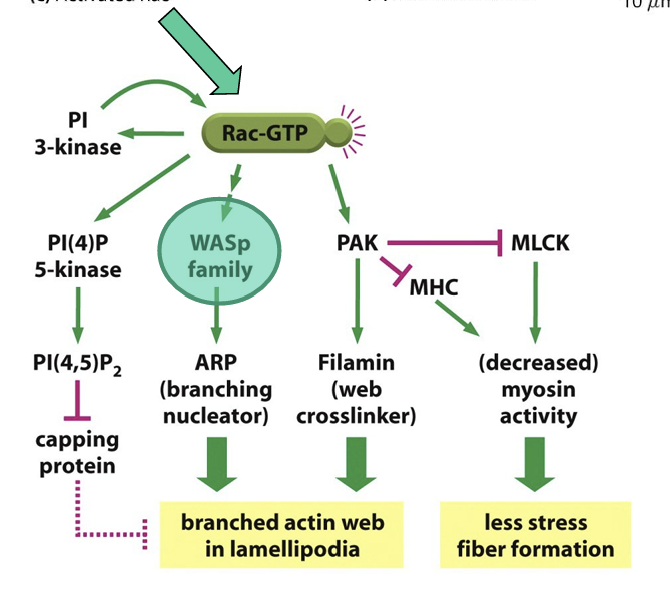
Activa la ruta PI 3-quinasa → PI(4)P 5-quinasa → PI(4,5)P2, inhibiendo las proteínas caperuza (capping protein) para desproteger los extremos de crecimiento.
Activa a miembros de la familia WASP, estimulando al complejo ARP para la nucleación y formación de la red ramificada de actina (branched actin web)
Activa a la filamina para entrecruzar los filamentos en mallas tridimensionales
Activa a PAK, que fovsforila e inhibe a MLCK, disminuyendo la actividad de la miosina y reduciendo la formación de fibras de estrés
Su finalidad global es la formación del lamelipodio
¿Cuál es la causa genética molecular del síndrome de Wiskott-Aldrich y qué alteraciones funcionales ocasiona en las plaquetas?
Está causado por mutaciones en la proteína WASP (la cual queda incapacitada para activar al complejo ARP 2/3)
Genera el desarrollo de plaquetas anormales que, al activarse, logran formar lamelipodios primarios para reptar pero son incapaces de reorganizar su citoesqueleto para emitir filopodios posteriores que consoliden su anclaje en la herida vascular

¿Qué consecuencias clínicas padecen los pacientes con síndrome de Wiskott-Aldrich a nivel hemostático?
Manifiestan un defecto severo de la coagulación (coagulan muy mal) y sufren problemas graves de hemorragias recurrentes, al fallar el cambio morfológico plaquetario indispensable para el sellado hemostático
¿Cuáles son algunos ejemplos de asociaciones estables de filamentos de actina?
Microvellosidades
Estereocilios
¿Qué son las microvellosidades, cómo están estructuradas internamente y qué función cumple la villina (villina)?
Son evaginaciones digitiformes de la membrana plasmática (hacia fuera) que incrementan la superficie de absorción
Su eje interno está compuesto por un haz de microfilamentos de actina paralelos fuertemente empaquetados
La villina es una proteína accesoria propia de estas estructuras que impide la nucleación/adición de más actina en el extremo (+) y contribuye activamente al control estricto de la longitud de la microvellosidad

¿Qué son los estereocilios, de qué filamentos están formados y por qué NO deben confundirse con cilios verdaderos?
Son microvellosidades gigantes y especializadas formadas por filamentos de actina
No son cilios: los cilios verdaderos están constituidos internamente por microtúbulos (axonema), mientras que los estereocilios están hechos exclusivamente de filamentos de actina
Se localizan en las células sensoriales del oído interno y son altamente sensibles a vibraciones mecánicas y ondas sonoras

¿Qué orgánulo regula la actividad de los microtúbulos y cuál es el principal centro organizador en células animales?
ensamblaje y dinámica están regulados por los centros organizadores de microtúbulos (MTOC). En las células animales, el MTOC principal es el centrosoma

Al microscopio electrónico de transmisión (MET) tras fijación con glutaraldehído, ¿cómo se observan los microtúbulos en sección transversal y qué representan las "rayas" que los interconectan?
Orientados de forma perpendicular al plano de corte, se visualizan como estructuras circulares con una pared electrodensa de protofilamentos que delimita una luz central clara
Los puentes o "rayas" que enlazan físicamente unos microtúbulos con otros corresponden a las MAPs (Microtubule Associated Proteins), encargadas de estabilizarlos y empaquetarlos en haces o paquetes organizados

¿Cuál es la composición macromolecular de la pared de un microtúbulo y cuáles son sus dimensiones características?
Está formada por heterodímeros de tubulina (ɑ y ʙ) polarizados que se asocian en sentido longitudinal formando protofilamentos
Varios protofilamentos establecen uniones laterales entre subunidades del mismo tipo (ɑ con ɑ, ʙ con ʙ) formando una pared cilíndrica helicoidal constituida por 13 protofilamentos paralelos
Sus dimensiones son: diámetro externo de 25 nm, diámetro interno (luz) de 15 nm y longitud variable

En el heterodímero de tubulina, ¿cómo se disponen las 2 moléculas de GTP y en qué se diferencian respecto a su capacidad de hidrólisis?
El heterodímero contiene dos sitios de unión para GTP no equivalentes:
Sitio N (en ɑ-tubulina): La molécula de GTP se encuentra atrapada/enterrada en la interfaz entre ɑ y ʙ-tubulina; NO se hidroliza nunca ni es intercambiable
Sitio E (en ʙ-tubulina): La molécula de GTP se localiza en la superficie expuesta del heterodímero; SÍ se puede hidrolizar a GDP tras la incorporación del dímero al microtúbulo

¿Cómo se define la polaridad estructural de un microtúbulo respecto a las subunidades expuestas en sus extremos?
El extremo positivo (+) finaliza con subunidades de ʙ-tubulina expuestas (polo de crecimiento rápido)
El extremo negativo (-) finaliza con subunidades de ɑ-tubulina expuestas (generalmente orientado hacia el MTOC o centrosoma)

¿Con qué están en equilibrio dinámico los microtúbulos?
Con la reserva de tubulina soluble del citosol (la concentración crítica (Cc) marca el nivel al cual los dímeros de alfa y beta tubulina están en equilibrio con los microtúbulos)
¿Cómo se comporta la curva de masa frente a concentración de dímeros libres respecto a la concentración crítica (Cc) en el equilibrio con microtúbulos?
Por debajo de la Cc, toda la tubulina se encuentra en forma de dímeros solubles libres (la masa de polímero es cero) porque el microtúbulo no es estable y la masa de dímero aumenta
Al alcanzar la concentración crítica (Cc), se inicia la polimerización y se forman microtúbulos.
Por encima de la Cc, la concentración de dímeros solubles libres en el citosol permanece constante (línea roja horizontal), pues cualquier dímero adicional añadido se incorpora a los microtúbulos, aumentando la masa total polimerizada en proporción directa a la tubulina total presente (recta azul ascendente)

¿Qué es la "caperuza de GTP" (GTP cap), en qué extremo se localiza y cómo se visualiza según el estado de hidrólisis de nucleótidos?
A altas concentraciones de dímeros libres, la velocidad de adición de heterodímeros supera a la velocidad de hidrólisis del GTP
Esto forma una capa protectora terminal de subunidades unidas a GTP (aún no hidrolizado a GDP) denominada caperuza de GTP (GTP cap), ubicada específicamente en el extremo (+)
En los esquemas se ilustra con tonos más oscuros en el extremo terminal (asociados a GTP intacto), mientras que el cuerpo interno del microtúbulo en tonos claros refleja las zonas donde el GTP ya se ha hidrolizado a GDP

¿Por qué los microtúbulos se definen como «estructuras efímeras» y qué propiedad funcional les permite reorganizarse rápidamente?
Porque presentan una gran variabilidad temporal en su longitud debida a la inestabilidad dinámica
Esta propiedad biológica permite a la célula reorganizar rápidamente el citoesqueleto celular y todas sus estructuras asociadas en respuesta a las necesidades fisiológicas

¿Cuáles son las tres fases secuenciales que componen el ciclo de inestabilidad dinámica de un microtúbulo?
Fase de crecimiento o elongación (growth): Polimerización activa por adición continua de subunidades de tubulina unidas a GTP
Fase de acortamiento o catástrofe (catastrophe): Despolimerización rápida del microtúbulo desencadenada por la pérdida de la caperuza de GTP
Fase de rescate (rescue): Recuperación de la caperuza de GTP y reinicio del crecimiento del microtúbulo, el cual puede reanudarse e incurrir en otra dirección espacial
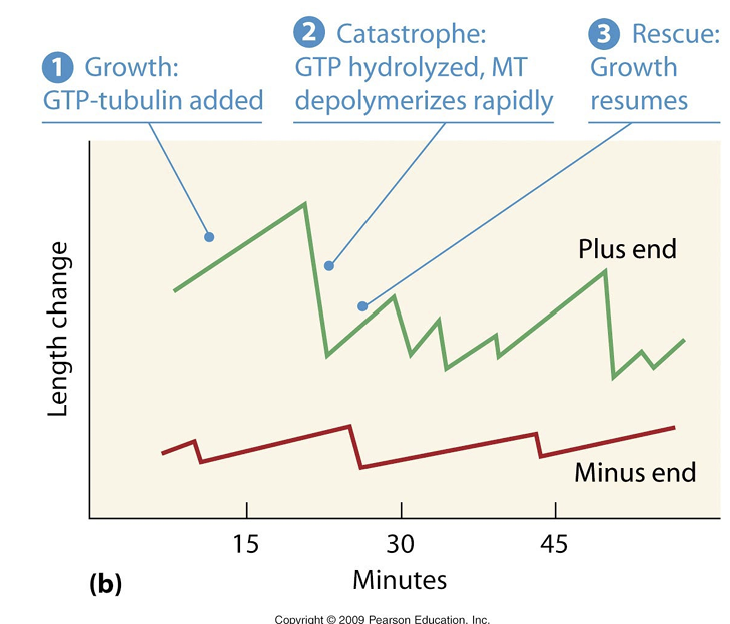
¿Cómo difieren el extremo (+) y el extremo (-) respecto a la cinética de la inestabilidad dinámica?
Ambos procesos (crecimiento y catástrofe) ocurren en ambos extremos
Sin embargo, en el extremo (-) ocurren a velocidades notablemente más lentas
El extremo (+) es el más dinámico: debido a diferencias conformacionales, es el polo que se acorta y crece mucho más rápidamente (presenta oscilaciones de longitud de gran amplitud en la gráfica longitud vs. tiempo)
¿Qué condición de concentración de tubulina libre determina la transición hacia la catástrofe?
A alta concentración de tubulina: la tasa de adición de dímeros de GTP-tubulina supera a la hidrólisis, conservándose la caperuza protectora (GTP cap) que mantiene el crecimiento continuo
A baja concentración de tubulina: la hidrólisis del GTP alcanza al extremo del microtúbulo antes de que se incorporen nuevos dímeros; esto agota la caperuza de GTP (depleting GTP cap), exponiendo subunidades unidas a GDP y desencadenando de forma inevitable la catástrofe
Durante el acortamiento rápido (shrinking) en la catástrofe, ¿qué dos fuerzas mecánicas intermoleculares se observan y cuál de ellas es más fuerte?
Coexisten dos tipos de interacciones:
Fuerza longitudinal dímero–dímero (a lo largo del mismo protofilamento)
Fuerza lateral entre protofilamentos adyacentes.
Las fuerzas dímero–dímero son más intensas/fuertes.
Debido a ello, cuando se pierde la caperuza, los protofilamentos se desgajan y separan entre sí hacia afuera pero los dímeros permanecen temporalmente unidos a lo largo de cada protofilamento individual curvado
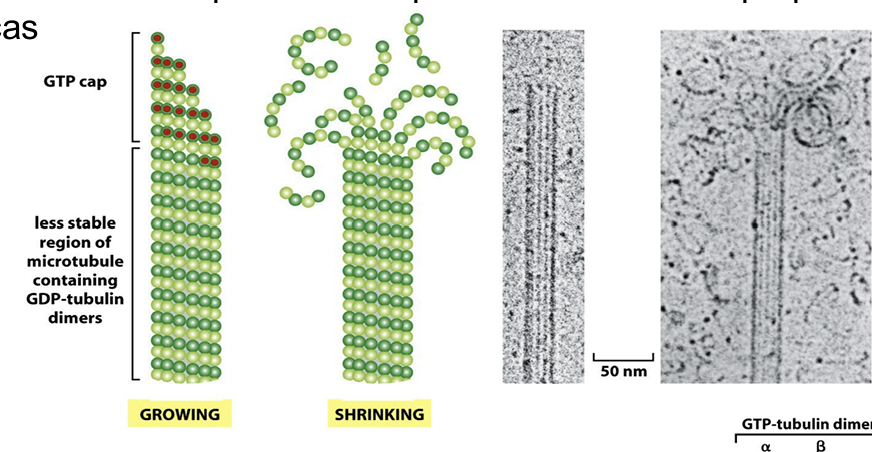
¿Cómo se produce el acoplamiento entre las propiedades bioquímicas (hidrólisis de GTP) y las propiedades mecánicas (forma del protofilamento) en los microtúbulos?
Dímeros unidos a GTP (en crecimiento): Inducen una conformación que mantiene a los protofilamentos completamente rectos (straight protofilament), favoreciendo uniones laterales estables que cierran la pared tubular cilíndrica
Dímeros tras la hidrólisis a GDP: El cambio conformacional inducido por la hidrólisis debilita las uniones del polímero y tiende a forzar mecánicamente una conformación curvada hacia afuera (curved protofilament)
Mientras exista la caperuza de GTP, esta tensión mecánica queda retenida; al perderse la caperuza, la energía elástica se libera y los protofilamentos de GDP-tubulina se curvan hacia el exterior desensamblándose a gran velocidad

¿Cómo se reciclan los dímeros de tubulina liberados tras la despolimerización del microtúbulo?
Los heterodímeros salen en forma de GDP-tubulina soluble; una vez en el citoplasma, se produce el intercambio de nucleótidos (GDP → GTP) en el sitio intercambiable de la ʙ-tubulina, regenerando dímeros activos cargados con GTP listos para incorporarse a un nuevo microtúbulo en crecimiento
¿Qué son los Centros Organizadores de Microtúbulos (MTOCs) y cuáles son sus tres funciones principales?
Son estructuras celulares que actúan como lugares de nucleación (las "semillas" de inicio de la polimerización)
Sus funciones esenciales son:
Nucleación para el ensamblaje de nuevos microtúbulos
Orientación espacial del crecimiento de los microtúbulos en el citoplasma
Estabilización de su extremo menos (-)
¿Cómo se disponen los extremos polares de los microtúbulos respecto al MTOC durante su polimerización?
El extremo menos (-) queda SIEMPRE en contacto con el MTOC, anclado y protegido, lo que impide el crecimiento o desensamblaje por este polo
Si los microtúbulos crecen o incorporan nuevas subunidades, lo hacen exclusivamente por su extremo más (+), que se proyecta libre hacia la periferia celular

¿Cuáles son los tres ejemplos canónicos de MTOCs según el estado o tipo celular?
El centrosoma en la célula en interfase
Los polos del huso mitótico cuando la célula se encuentra en división celular (mitosis)
El corpúsculo basal en las células ciliadas o flageladas
También se enuecntran MTOCs centrosomales y no centrosomales en fibroblastos humanos, células epidérmicas vegetales, células germinales de C. elegans, células epiteliales intestinales, levaduras, neuronas, etc.
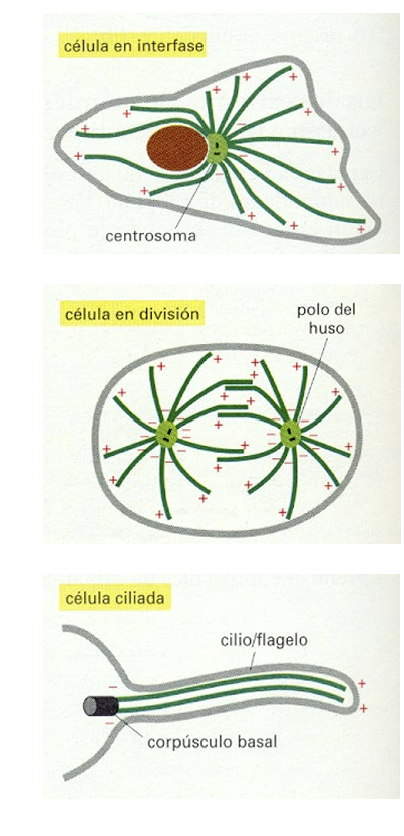
¿Cuál es la estructura interna del centrosoma animal?
Está formado por un par de centriolos dispuestos de manera perpendicular entre ellos (estructurados a su vez por microtúbulos/protofilamentos), embebidos en una masa amorfa y electrodensa denominada matriz centrosomal (centrosome matrix)
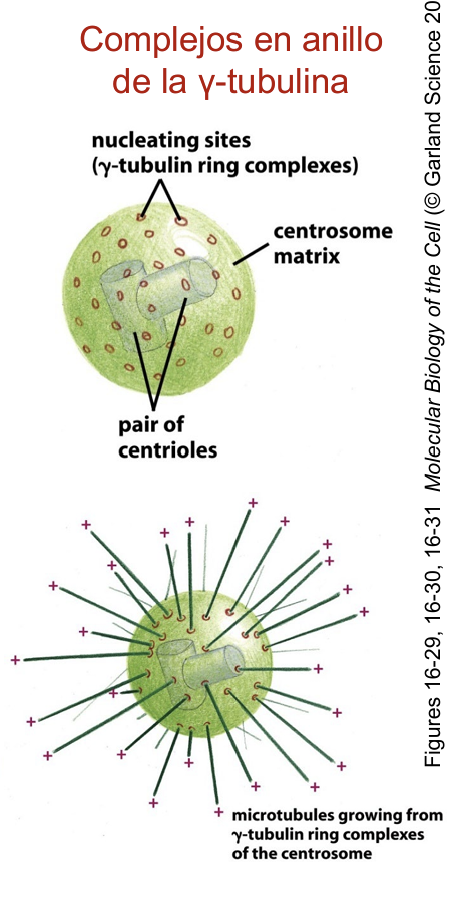
¿Dónde se originan los nuevos microtúbulos en el centrosoma y qué proteína especializada es esencial para este proceso?
Se forman a partir de asociaciones proteicas en forma de anillo situadas en la matriz pericentriolar/centrosomal (no a partir de los propios microtúbulos de los centriolos). La proteína central e indispensable es la γ-tubulina (gamma-tubulina)

¿Cómo interacciona la γ-tubulina con los heterodímeros de tubulina nacientes y qué extremo del microtúbulo reconoce?
La ɑ-tubulina del heterodímero es la que reconoce molecularmente a la y-tubulina, uniéndose de forma selectiva a ella. Como consecuencia, la y-tubulina se une y tapa específicamente el extremo menos (-) del microtúbulo

¿Cómo se organiza el complejo de y-tubulina (y-TuSC) y cuántas subunidades componen el anillo de nucleación helicoidal?
Dos moléculas de y-tubulina se asocian con proteínas accesorias formando un dímero proteico -(y-TuSC)
Se ensamblan 7 copias o dímeros del complejo (y-TuSC) dispuestos en una espiral helicoidal ("lock washer" spiral) que contiene un total de 14 moléculas de y-tubulina
Como la primera y la última subunidad se superponen espacialmente en la vuelta de la espiral, al observarlo en vista superior perpendicular se aprecian exactamente 13 moléculas de y-tubulina expuestas
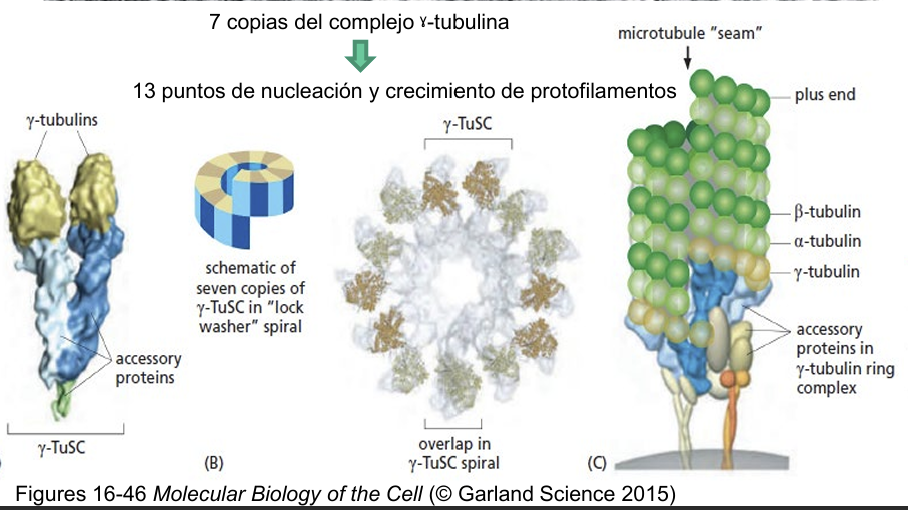
¿Cómo determina el complejo anular de y-tubulina (y-TuRC) la arquitectura de 13 protofilamentos del microtúbulo?
Las 13 moléculas expuestas de y-tubulina actúan como 13 puntos independientes de nucleación a partir de los cuales se inicia el crecimiento longitudinal de cada uno de los 13 protofilamentos que componen la pared cilíndrica
A medida que los protofilamentos crecen, las subunidades nacientes establecen enlaces químicos tanto longitudinalmente como con las unidades y protofilamentos vecinos para conferir y mantener la estabilidad de la estructura microtubular en torno a la línea de cierre o costura (microtubule seam)

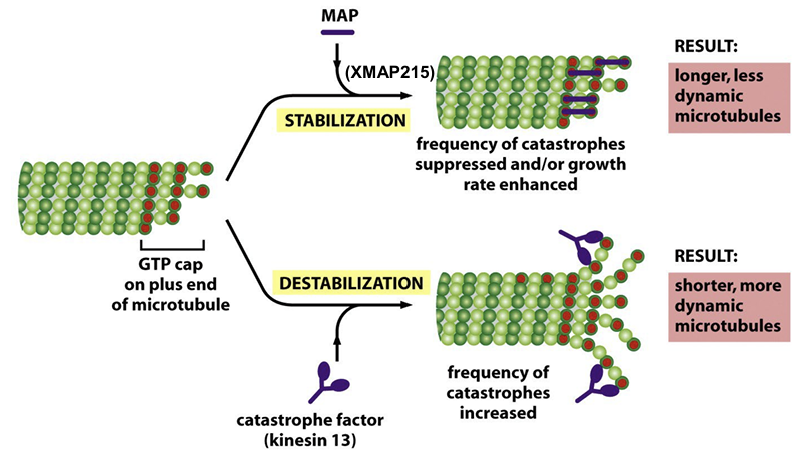
¿Cuáles son los dos mecanismos moleculares principales que regulan la estabilidad de los microtúbulos en una misma célula?
Modificaciones postraduccionales: Tales como la acetilación y la destirosinación de las subunidades de tubulina, entre otras
Unión de Proteínas Asociadas a los Microtúbulos (MAPs): Proteínas accesorias que modulan su polimerización, tasa de catástrofes y anclaje (ej. XMAP215, Kinesina 13, MAP2, MAPs motoras, etc.)
¿Cómo actúa XMAP215 sobre el extremo (+) de los microtúbulos y qué consecuencia tiene en su dinámica?
Es una proteína frecuentemente fibrilar que se une lateralmente a dímeros de tubulina para estabilizarlos en el extremo (+)
Suprime la frecuencia de catástrofes y potencia la velocidad de elongación (growth rate enhanced)
Resultado: Origina microtúbulos más largos, más estables y menos dinámicos
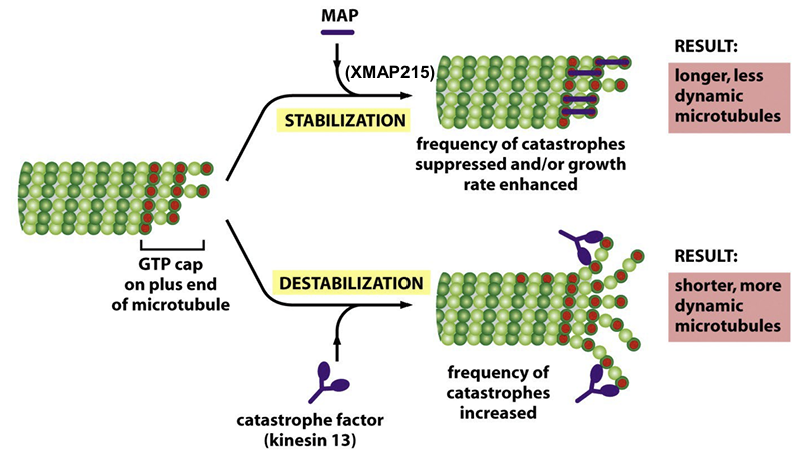
¿Cómo actúa la kinesina 13 (catastrophe factor) en la dinámica microtubular?
Actúa en el extremo (+) promoviendo activamente la desestabilización y el desensamblaje del polímero (disassembly)
Incrementa la frecuencia de catástrofes (frequency of catastrophes increased)
Resultado: Origina microtúbulos más cortos y mucho más dinámicos