Fisiologia Humana
 Call Kai
 Learn
 Practice Test
 Spaced Repetition
 Match
 Flashcards
 Knowt Play
1/1202

There's no tags or description
Looks like no tags are added yet.
1203 Terms
Cátions e ânions importantes no meio intra e extra celular

Líquido intersticial
Com 90% de água em sua composição - relativamente próxima ao do plasma -, o líquido intersticial serve para preencher a parte vazia entre as células e os vasos capilares sanguíneos. Sua presença tem como efeito favorecer a interação entre as duas estruturas. O excesso de líquido intersticial é tratado pelos capilares linfáticos, sendo transformados em linfa. Ela é, portanto, transportada até o pescoço, onde será reintegrada ao sistema sanguíneo pela veia subclávia esquerda.
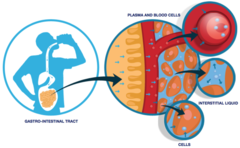
Distribuição da água nos compartimentos líquidos do corpo

Distribuição da água nos compartimentos líquidos do corpo 2

Aquaporinas
Estão sempre abertas
São canais formados por proteínas especiais que atravessam a membrana celular (proteínas integras) e conduzem seletivamente as moléculas de água para dentro e fora da célula
Osmolidade
A quantidade de água saindo e entrando precisa ser igual.

Difusão simples
Apenas substâncias pequenas e apolares passam pela membrana plasmática O₂ e CO₂. A água(partcialmente polar) também passa, mas em menor quantidade

Ph intra e extracelular

Velocidade da difusão simples e facilitada
A difusão facilitada, como qualquer outro tipo de transporte que depende de proteínas carreadoras, está sujeito a três regras básicas: Saturação (existe um número x de proteínas, independente da quantidade de substâncias), Estereoespecificidade (essas proteínas carreadoras são extremamente seletivas) (se carrega D-glicose, não carrega L-glicose) e Competição (se aceitar o transporte de mais de uma substância, elas podem competir entre si para passar). Por isso, quando falamos sobre velocidade de difusão, a difusão facilitada é mais eficiente que a simples quando a concentração da substância transportada não for muito grande. Quando a concentração da substância sobe, ela vai ficando mais lenta que a difusão facilitada, visto que as proteínas ficam saturadas (todas ocupadas), enquanto a difusão facilitada não sofre com esse problema, podendo atravessar a membrana mais facilmente.

GLUT
São proteínas de difusão facilitada da glicose

Coeficiente de reflexão osmótica

Filtração
Também é considerado um tipo de transporta passivo
A filtração também é um processo passivo que implica na passagem através dos poros da membrana, no entanto, aqui, soluto e solvente movem-se juntos pela membrana, a favor do gradiente de pressão, não havendo, portanto gasto energético pela célula
Capilares e o glomérulo renal são os principais locais de ocorrência deste processo de transporte por membranas; as forças responsáveis pela filtração são: pressão osmótica e hidrostática.
- Não dependem de um gradiente de concentração
- Dependem de um gradiente de pressão
- Processo passivo
- não é seletivo
- Depende dos poros da membrana de filtração

Classificação dos transportes (critério: proteínas abartas e fechadas)
Proteínas abertas: Canais de vazamento de potássio & equatorianas.
Proteínas fechadas:
Uniporte: transportam só um tipo de composto. Ex: glut(proteínas de transporte de glicose;)
Simporte: transportam mais de um composto mas em apenas uma direção.
Antiporte: transportam mais de um composto mas em ambas as direções.

Transporte Ativo Primário
Bomba de Na⁺ e K⁺ - Todas as membranas celulares.
Bomba de Ca⁺² - Retículo sarcoplasmático, mitocôndria e membrana plasmática
Bomba de H⁺ e K⁺ - Células parietais gástricas.
Bombas eletrogênicas
Bombas que criam diferença de cargas
Ex: Bomba de Na⁺ e K⁺
Bomba de Na⁺ e K⁺ (ATPase)
Bombeia K⁺ para dentro da célula e Na⁺ para fora da célula.
- contra o gradiente de concentração
- provoca uma polarização entra os dois ambientes, pois transporta 3 Na⁺ e apenas 2 K⁺, ou seja,
Inibidores: ouabaína(tóxico) e digoxina
Se os íons de sódio estão fora da célula, eles tenderão a se mover para dentro da célula com base tanto em seu gradiente de concentração (a concentração menor de Na+ na célula) quanto na voltagem através da membrana (a carga mais negativa no interior da membrana).
Como K+ é positivo, a voltagem através da membrana vai encorajar seu movimento para dentro da célula, mas seu gradiente de concentração vai tender a empurrá-la para fora da célula (em direção à região de concentração mais baixa). As concentrações finais de potássio nos dois lados da membrana serão um equilíbrio entre estas duas forças opostas.
1. A bomba sódio-potássio transporta sódio para fora e potássio para dentro da célula num ciclo repetitivo de variações da conformação. Em cada ciclo, três íons de sódio deixam a célula, enquanto dois íons de potássio entram. Esse processo ocorre nas seguintes etapas:
No início, a bomba está aberta para o interior da célula. Nessa forma, a bomba realmente quer ligar (tem uma grande afinidade pelos) íons de sódio e vai usar três deles.
2. Quando os íons de sódio ligam-se, disparam a bomba para a hidrólise (quebra) do ATP. Um grupo fosfato do ATP é anexado à bomba, que é então chamada de fosforilada. O ADP é liberado como um sub-produto.
3. A fosforilação faz a forma da bomba mudar, reorientando-se para abrir na direção do espaço extracelular. Nessa conformação, a bomba deixa de ligar-se aos íons de sódio (fica com baixa afinidade a eles), e então três íons de sódio são liberados para fora da célula.
4. Em sua forma voltada para fora, a bomba muda de partido e, agora, gosta muito de se ligar (tem alta afinidade) aos íons de potássio. Ela vai se ligar a dois deles, e isso aciona a remoção do grupo fosfato ligado à bomba na etapa 2.
5. Com a saída do grupo fosfato, a bomba vai mudar de volta para sua forma original, abrindo-se em direção ao interior da célula.
6. Na sua forma direcionada para o interior, a bomba perde seu interesse (tem baixa afinidade) pelos íons de potássio e portanto dois íons de potássio são liberados dentro do citoplasma. A bomba agora está de volta ao que era na etapa 1 e o ciclo pode começar novamente.
Isto pode parecer um ciclo complicado, mas apenas envolve a ida e a volta da proteína entre as duas formas: uma forma voltada para dentro com alta afinidade por sódio (e baixa afinidade por potássio) e a outra forma voltada para fora, com alta afinidade por potássio (e baixa afinidade por sódio). A proteína pode alternar entre essas duas formas pela adição ou remoção de um grupo fosfato, o qual, por sua vez, é controlado pela ligação dos íons a serem transportados.
Como a bomba de sódio-potássio gera o potencial de membrana
Como, exatamente a bomba sódio potássio estabelece uma voltagem através da membrana? É tentador simplificar com um argumento baseado na estequiometria: para cada três íons de sódio que se movem para fora, apenas dois íons de potássio movem-se para dentro, resultando num interior celular mais negativo. Enquanto esta proporção de carga torna o interior celular ligeiramente mais negativo, na realidade ele representa apenas uma minúscula fração do efeito da bomba sódio potássio no potencial da membrana.
Em vez disso, a bomba sódio-potássio age principalmente pela construção de uma elevada concentração de íons de potássio dentro da célula, que faz o gradiente de concentração de potássio ficar bem acentuado. O gradiente é acentuado o suficiente para que os íons de potássio movam-se para fora da célula (pelos canais), apesar da crescente carga negativa no interior. Esse processo continua até que a voltagem através da membrana seja grande o suficiente para contrabalançar o gradiente de concentração do potássio. Nesse ponto de equilíbrio, o interior da membrana fica negativo em relação ao exterior. Esta voltagem será mantida enquanto a concentração K+ na célula estiver alta, mas irá desaparecer se o K+ parar de ser importado.
Como os 3Na+ são exportados para cada 2K+ trazidos para o interior da célula, a bomba faz uma pequena contribuição direta com o potencial de repouso da membrana (tornando-a um pouco mais negativa do que seria). A grande contribuição da bomba para o potencial da membrana, no entanto, é indireta: ela mantém os gradientes de Na+ estáveis, os quais dão origem ao potencial da membrana à medida que Na+ e K+ diminuem seus respectivos gradientes de concentração através de canais de vazamento.
Os canais de vazamento começam a operar de fato, quando o potencial de equilíbrio atinge - 70 mV. Ou seja, funciona como um ladrão de caixa d'água, que não deixa passar deste limíte.
Bomba de Ca⁺
- Cálcio dentro do citoplasma é toxico
-Bomba eletrogênica
-Gasto de ATP
-Diferença de concentração

Gradientes eletroquímicos
O que realmente provoca a diferença de potencial não e maior quantidade de ions sódio no meio extracelular. A proporção de 3/2 altera um apenas 0,2 mV este potencial. O que realmente faz a diferença é a alta permeabilidade do potácio pela membrana, pois mesmo que o potácio esteja sendo bombeado para dentro, ele consegue facilmente voltar para fora. Já o Sódio não consegue e se acumula no lado de fora.
Já discutimos gradientes de concentração simples, nos quais uma substância é encontrada em concentrações diferentes numa região do espaço ou em lados opostos de uma membrana. No entanto, devido à capacidade dos átomos e moléculas formarem íons e carregar cargas elétricas positivas ou negativas, também pode haver um gradiente elétrico ou diferenças de carga, através de uma membrana plasmática. Na verdade, as células vivas tipicamente possuem o que é chamado um potencial da membrana, uma diferença de potencial elétrico (voltagem) através de sua membrana celular.
Uma diferença de potencial elétrico existe sempre que houver uma separação de cargas no espaço. No caso da célula, cargas negativas e positivas são separadas pela barreira da membrana celular, com o interior da célula tendo cargas negativas a mais que as do exterior. O potencial da membrana de uma célula típica é de -40 a -80 milivolts, com o sinal de menos significando que o interior da célula é mais negativo que o exterior^11
A combinação do gradiente de concentração e da voltagem que afetam o movimento de um íon é chamada de gradiente eletroquímico.

Transporte ativo primário e transporte ativo secundário
Os mecanismos de transporte ativo podem ser divididos em duas categorias. O transporte ativo primário usa uma fonte de energia química diretamente (por exemplo, o ATP) para mover as moléculas através da membrana contra seu gradiente. O transporte ativo secundário (co-transporte), por outro lado, usa um gradiente eletro-químico - gerado pelo transporte ativo - como fonte de energia para mover as moléculas contra seu gradiente, e assim não requer uma fonte química de energia como o ATP. Veremos abaixo cada tipo de transporte ativo em detalhes.
Transporte ativo primário
ma das bombas mais importantes das células animais é a bomba de sódio-potássio, que move Na+ para fora das células, e K+ para dentro. Como o processo de transporte usa ATP como fonte de energia, ele é considerado um exemplo de transporte ativo primário.
A bomba sódio-potássio não apenas mantém as concentrações apropriadas de Na+ e K+ nas células vivas, como também desempenha um papel importante na geração de voltagem através da membrana celular dos animais. Bombas como esta, que estão envolvidas no estabelecimento e manutenção da voltagem das membranas, também são conhecidas como bombas eletrogênicas. A bomba eletrogênica primária das plantas bombeia íons de hidrogênio H+ ao invés de sódio e potássio.
Transporte ativo secundário
Os gradientes eletroquímicos instituídos pelo transporte ativo primário armazenam energia, que pode ser liberada conforme os íons movem-se novamente a favor de seu gradiente. O transporte ativo secundário usa a energia armazenada nesses gradientes, para mover outras substâncias contra seus próprios gradientes.
Um exemplo: vamos supor que temos uma elevada concentração de íons de sódio no espaço intracelular (graças ao árduo trabalho da bomba sódio-potássio). Se uma rota, como uma proteína de canal ou carreadora estiverem disponíveis, os íons de sódio irão se mover a favor de seu gradiente de concentração e retornar ao interior da célulal.
No transporte ativo secundário, o movimento dos íons de sódio a favor do seu gradiente de concentração está associado ao transporte contra o gradiente de concentração de outras substâncias por uma proteína carreadora compartilhada (uma co-transportadora). Por exemplo, na figura abaixo, a proteína carreadora deixa os íons de sódio moverem-se a favor do seu gradiente, mas simultaneamente traz uma molécula de glicose, contra seu gradiente de concentração, para dentro da célula. A proteína carreadora usa energia do gradiente de sódio para dirigir o transporte das moléculas de glicose.
No transporte ativo secundário, as duas moléculas sendo transportadas podem mover-se tanto na mesma direção (i.e., ambas para dentro da célula), ou em direções opostas (i.e., uma para dentro e outra para fora da célula). Quando elas se movem na mesma direção, a proteína que as transporta é chamada de simportador, enquanto que se elas se movem em direções opostas, a proteína é chamada de antiportador.
Além da glicose, também pode levar junto Na+ e Ca²+

Transporte vesicular
- Fagocitose é um transporte ativo
- Pinocitose
- potocitose
- Endocitose mediada por receptor
- gastam energia
Endocitose mediada por receptor
Como as celular absorvem colesterol
é um tipo de transporte vesicular

Mapa conceitual transportes de membrana

O potencial de repouso da membrana
Imagine dois eletrodos, um colocado fora e outro dentro da membrana plasmática de uma célula viva. Se fizer isso, você poderá medir a diferença de potencial elétrico, ou voltagem, entre os eletrodos. Essa diferença de potencial elétrico é chamado potencial da membrana.
Na maioria dos neurônios em repouso, a diferença de potencial ao longo da membrana é em torno de 30 a 90 mV 1000 de um volt), com o interior da célula mais negativo do que o exterior.
Por existir uma diferença de potencial na membrana celular, a membrana é dita polarizada.
Se o potencial da membrana se torna mais positivo do que está no potencial de repouso, então a membrana é dita despolarizada.
Se o potencial da membrana se torna mais negativo do que está no potencial de repouso, a membrana é dita hiperpolarizada. Todos os sinais elétricos que os neurônios usam para comunicar são despolarizações ou hiperpolarizações do potencial de repouso da membrana.
Influxo
tendência de difusão para o interior da célula
Efluxo
tendência de difusão par ao exterior da célula
Impulso nervoso - despolarização e repolarização
O que mostra na imagem são os Canais de sódio e potássio controlados por voltagem
Em um neurônio, o potencial de repouso da membrana está mais próximo do potencial de equilíbrio do potássio do que do potencial de equilíbrio do sódio. Isso é porque a membrana em repouso é muito mais permeável ao K+ do que ao Na+.
Se mais canais de potássio se abrirem — tornando-se ainda mais fácil para o K+ atravessar a membrana celular — a membrana iria se hiperpolarizar, ficando ainda mais perto do potencial de equilíbrio do potássio.
Se, por outro lado, os canais de sódio adicionais se abrirem — tornando mais fácil para o Na+ atravessar a membrana — a membrana celular seria despolarizada em direção ao potencial de equilíbrio do sódio.
A alteração do número de canais iônicos abertos fornece uma maneira para controlar o potencial da membrana da célula e uma ótima maneira de produzir sinais elétricos.
https://pt.khanacademy.org/science/biology/human-biology/neuron-nervous-system/a/the-membrane-potential
Impulso nervoso - despolarização e repolarização 2
Impulso nervoso - despolarização e repolarização 3

Nódulos de Ranvier

Canais de sódio e potássio controlados por voltagem

potencial de equilíbrio.
A diferença do potencial elétrico na membrana celular que equilibra exatamente o gradiente de concentração de um íon é conhecido como

A bomba de Na+ e K+ mantém os gradientes para Na+ K+
Os gradientes de concentração de Na+ e K+ através da membrana da célula (e, portanto, o potencial de repouso da membrana) são mantidos pela atividade de uma proteína chamada Na+ K+ ATPase, muitas vezes referida como bomba de sódio-potássio. Se a bomba de Na+ e K+ for desligada, os gradientes de concentração Na+ e K+ se dissiparão e o potencial da membrana também.
No potencial de repouso da membrana de um neurônio, nem Na+ nem K+ estão em seu potencial de equilíbrio. O potencial da membrana é menos negativo que o potencial de equilíbrio de K+ mas menos positivo do que o potencial de equilíbrio de Na+. Assim, haverá uma fuga constante de K+ para fora da célula e de Na+ para dentro da célula. A atividade da bomba se opõe a essas fugas e mantém os gradientes de concentração dos íons.
Assim como os canais de íons que permitem que Na+ e K+ atravessem a membrana celular, a bomba Na+ K+ é uma proteína que abrange a membrana. Ao contrário dos canais de potássio e de sódio, no entanto, a bomba de Na+ K+ não fornece apenas uma direção para que Na+ e K+ movimentem seus gradientes eletroquímicos. Em vez disso, ela transporta ativamente Na e K+ contra seus gradientes eletroquímicos.
Como os 3Na+ são exportados para cada 2K+ trazidos para o interior da célula, a bomba faz uma pequena contribuição direta com o potencial de repouso da membrana (tornando-a um pouco mais negativa do que seria). A grande contribuição da bomba para o potencial da membrana, no entanto, é indireta: ela mantém os gradientes de Na+ e K+ estáveis, os quais dão origem ao potencial da membrana à medida que Na+ e K+ diminuem seus respectivos gradientes de concentração através de canais de vazamento.
Soma
Sinônimo para Corpo Celular

Células Gliais
Existem quatro tipos principais de células gliais no sistema nervoso dos vertebrados adultos. Três destes, os astrócitos, oligodendrócitos e microglia, são encontrados apenas no sistema nervoso central (SNC). O quarto tipo, as células de Schwann, são encontradas apenas no sistema nervoso periférico (SNP).
Os oligodendrócitos do SNC e as células de Schwann do SNP compartilham uma função similar. Ambos os tipos de células da glia produzem mielina, uma substância isolante que forma uma bainha em torno dos axônios de vários neurônios. A mielina aumenta drasticamente a velocidade com a qual um potencial de ação percorre o axônio, e desempenha uma papel crucial no funcionamento do sistema nervoso.

PERÍODO REFRATÁRIO ABSOLUTO e PERÍODO REFRATÁRIO RELATIVO

Potencial graduado e potencial de ação

Diferença da transmissão do potencial de ação com e sem a bainha de mielina
Ca⁻²
O íon cálcio atua, na transmissão do impulso nervoso, como um regulador das proteínas dependentes de voltagem.
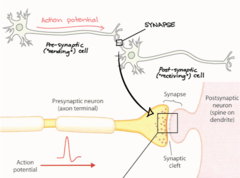
Neurônio pré-sináptico e pós-sináptico
Pré-sináptico é o que está enviando a mensagem.
Pós-sináptico é o que está recebendo a mensagem.
Sinapses elétricas
tipo de sinapse que ocorre fluxo direto de íons entre as células.
Sinapses elétricas transmitem sinais mais rapidamente que sinapses químicas.
Em todas as sinapses elétricas, diferentemente das sinapses químicas, na uma conexão física direta entre os neurônios pré e pós-sinápticos. Essa conexão assume a forma de um canal chamado de junção, que permite que uma corrente — íons — passe diretamente de uma célula para a outra.

Sinapses químicas
comunicação é feita usando mensageiros químicos
Em uma sinapse química, um potencial de ação faz com que o neurônio pré-sináptico libere neurotransmissores. Estas moléculas ligam-se aos receptores na célula pós-sináptica e a tornam mais ou menos propensa a desencadear um potencial de ação.
Quando um potencial de ação, ou impulso nervoso, chega ao terminal do axônio (além de ativar os cainais de Na⁺ depedentes de voltagem, o impulso nervoso também ativa os canais de Ca²⁺ dependentes de voltagem presente em grande quantidade no terminal do axônio) ele ativa canais de cálcio voltagem-dependentes na membrana da célula. O Ca²⁺ , que está presente em uma concentração muito maior fora do neurônio do que dentro dele, invade a célula. O Ca²⁺ permite que as vesículas sinápticas se fundam com a membrana do axônio terminal, liberando o neurotransmissor dentro da fenda sináptica.
As moléculas de neurotransmissor se difundem através da fenda sináptica e se ligam às proteínas receptoras na célula pós-sináptica. A ativação de receptores pós-sinápticos leva à abertura ou fechamento de canais iônicos na membrana celular. Isto pode ser despolarização — tornar o interior da célula mais positivo — ou hiperpolarização — tornar o interior da célula mais negativo — dependendo dos íons envolvidos.
Exocitose de neurotransmissores

potencial excitatório pós-sináptico (PEPs)
é despolarizante: torna o interior da célula mais positivo, trazendo o potencial de membrana mais perto de seu limite para disparar um potencial de ação. Às vezes, um único PEPS não é grande o suficiente para trazer o neurônio ao limite, mas ele pode se somar a outros PEPSs para desencadear um potencial de ação.
a alteração torna a célula alvo mais propensa a disparar seu próprio potencial de ação. Neste caso, a mudança no potencial de membrana é chamada de potencial excitatório pós-sináptico, ou PEPS.

potencial inibitório pós-sináptico (PIPS)
tendem a manter o potencial de membrana do neurônio pós-sináptico abaixo do limiar de disparo de um potencial de ação. PIPSs são importantes porque podem neutralizar, ou anular, o efeito excitatório dos PEPSs.
mudança torna a célula alvo menos propensa a disparar um potencial de ação e é chamada de potencial inibitório pós-sináptico, ou PIPS.
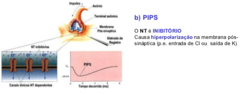
Como PEPSs e PIPSs interagem?
Basicamente, um neurônio pós-sináptico adiciona, ou integra, todas as entradas excitatórias e inibitórias que ele recebe e "decide" se dispara um potencial de ação.
Por exemplo, vamos supor que as sinapses excitatórias são feitas em dois dendritos diferentes do mesmo neurônio pós-sináptico, como mostrado abaixo. Nenhuma das sinapses pode produzir um PEPS grande o suficiente para trazer o potencial de membrana ao limiar na extremidade do axônio — lugar onde o potencial de ação é desencadeado, imagem abaixo. Se ambos PEPSs abaixo do limite ocorreram ao mesmo tempo, no entanto, eles poderiam se unir, ou somar, para trazer o potencial de membrana ao limiar.
Por outro lado, se um PIPS ocorre juntamente com os dois PEPS, ele pode não deixar que o potencial de membrana alcance o limiar e faz com que o neurônio não dispare um potencial de ação. Esses são exemplos de somatório espacial.

Fim das sinapses
Uma sinapse apenas pode funcionar efetivamente se há alguma maneira de "desligar" o sinal uma vez que ele foi enviado. A terminação do sinal deixa que a célula pós-sináptica retorne ao seu potencial de repouso normal, pronta para a chegada de novos potenciais de ação.
Do sinal ao final, a fenda sináptica deve ser liberada de neurotransmissores. Há algumas maneiras diferentes de fazer isso. O neurotransmissor pode ser quebrado por uma enzima, reabsorvido pelo neurônio pré-sináptico, ou pode simplesmente se difundir.

Arranjos sinápticos
Axodendrídica é a mais comum

classic synaptic neurotransmission
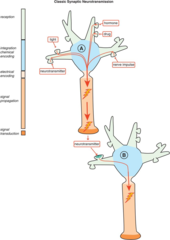
Regiões importantes da sinapse

Serotonina
precursor: Triptofano
A serotonina pode ser reabsorvida pelo terminal nervoso ou pode ser degradada pela monoamina oxise (MAO) ou Aldeido desidrogenase
Diamina (dois grupamentos amina)

Dopamina
É um tipo de Catecolamina

Noradrenalina
É um tipo de Catecolamina
importante para manter a concentração. A ritalina, por exemplo, bloqueia a reabsorção de noradrenalina a qual se acumula na fenda sináptica.

Adrenalina
É um tipo de Catecolamina
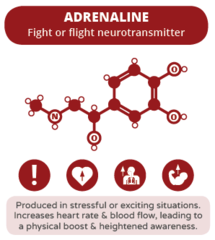
Glutamato
- Principal neurotransmissor excitatório.
- Muito presente na medula espinhal.
- é um neurotransmissor do tipo aminoássido.
- o glutamato não consegue ser reabsorvido pelo terminal nervoso. Ele é absorvido, na verdade, pela glia (membrana que envolve os neurônios), principalmente os astrócitos via transportador de aminoácidos excitatórios (EAATs). O glutamato é transformado em glutamina e assim consegue ser absorvido pelo neurônio. Dentro do neurônio volta a ser glutamato e pode ser liberado novamnte.

GABA
- Principal neurotransmissor inibitório.
- glutamato (precursor)
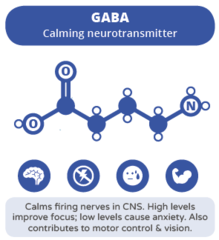
Ciclo neurotransmissor GABA
o glutamato(precursor) é transformado em GABA. Depois de liberado pode ser reabsorvido pelo próprio neurônio e pelas células da glia.

Acetilolina
• Neurotransmissor da memória e aprendizado
• Neurotransmissor da contração muscular
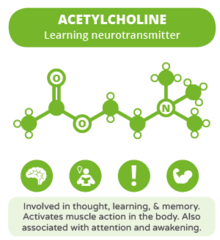
Ciclo da Acetilcolina
A Colina e AcetilCoA, com ajuda da enzima Colina Acetiltransferase(ChAT), formam Acetilcolina(ACh) que é colocada dentro de uma visícula por um Transportador de ACh. Quando a Acetilcolina é liberada ou ela se liga aos receptores ou ela pode ser metabolizada(reaproveitada) e transformada, com a ação da Acetilcolonesterase, em Colina e AcetilCoA novamente e volta para dentro (transporte secundário/ cotransporte de Na⁺) do neurônio por meio do Transportador de Colina.
O neurônio tem bastante acetil CoA, mas tem pouca Colina. por isso é muito importante a ação da Acetilcolonesterase e do Transportador de Colina.
a recaptação de Colina e a etapa limitante da síntese dq Acetilcolina(ACh)

Glicina e Histamina
Neurotransmissores - categorias químicas
Os neurotransmissores convencionais podem ser divididos em dois grupos principais: as pequenas moléculas neurotransmissoras e os neuropeptídeos.
As pequenas moléculas neurotransmissoras são (não surpreendentemente!) vários tipos de pequenas moléculas orgânicas. Elas incluem:
Os aminoácidos neurotransmissores glutamato, GABA (ácido γ-aminobutírico) e glicina. Todos são aminoácidos, embora o GABA não seja um aminoácido encontrado nas proteínas.As aminas biogênicas dopamina, norepinefrina, epinefrina, serotonina e histamina que são sintetizadas a partir de aminoácidos precursores.Os neurotransmissores purinérgicos ATP e adenosina, que são nucleotídeos e nucleosídeos.
Os neuropeptídeos são compostos por três ou mais aminoácidos e são maiores que as pequenas moléculas transmissoras. Existem neuropeptídeos muito diferentes. Eles incluem as endorfinas e encefalinas, que inibem a dor; a substância P, que transporta os sinais da dor; e o neuropeptídeo Y, que estimula a fome e pode prevenir convulsões.
existem mais tipos, porém os que iramos estudar são principalmente os que são aminoácidos, aminas e peptídeos.

Visículas dos neurotransmissores
Visículas de peptídeos (grânulos secretores) são sintetizadas no núcleo celular.
Vesículas sinápticas armazenam aminas e aminoácidos são vesículas pequenas. Sintetizadas no terminal do axônio.

Visículas sinápticas
Vesículas sinápticas armazenam aminas e aminoácidos são vesículas pequenas e
The synthesis of small-molecule neurotransmitters occurs within presynaptic terminal, and neuropeptides (the larger of the two) are synthesized in the cell body.
só levam apenas um tipo de neurotransmissor

Peptídeos Neurotransmissores
Visículas densas armazenam peptídeos (grânulos secretores) são vesículas grandes e eletricamente densas. Sintetizadas no núcleo celular.

Formação dos neurotransmissores
Visículas de peptídeos são sintetizadas no núcleo celular.
Vesículas sinápticas (aminas e aminoácidos) são vesículas pequenas. Sintetizadas no terminal do axônio.

Os efeitos do neurotransmissor dependem do seu receptor
Alguns neurotransmissores são considerados "excitatórios," provocando a deflagração de um potencial de ação no neurônio alvo. Outros são considerados "inibitórios," dificultando a deflagração de algum potencial de ação no neurônio alvo. Por exemplo:
- O glutamato é o principal transmissor excitatório do sistema nervoso central.
- O GABA é o principal neurotransmissor inibitório do cérebro dos vertebrados adultos.
- A glicina é o principal neurotransmissor inibitório da medula espinhal.
No entanto, um mesmo neurotransmissor pode, às vezes, possuir um efeito excitatório ou inibitório, dependendo do contexto.
Como isso pode ocorrer? Ao que parece, não existe somente um tipo de receptor para cada neurotransmissor. Em vez disso, um determinado neurotransmissor pode usualmente se ligar e ativar múltiplos receptores proteicos diferentes. Se o efeito de um certo neurotransmissor será excitatório ou inibitório em determinada sinapse, dependerá de quais de seu(s) receptor(es) estão presentes na célula (alvo) pós-sináptica.
Vamos tornar isso mais claro através de um exemplo. O neurotransmissor acetilcolina é excitatório na junção neuromuscular, no músculo esquelético, fazendo com que o músculo contraia. Em contraste, ela é inibitória no coração, onde reduz os batimentos cardíacos. Estes efeitos opostos são possíveis porque dois tipos diferentes de receptores proteicos de acetilcolina são encontrados nas duas localidades.
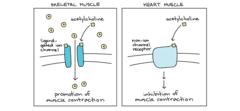
Neurotransmissores Catecolaminais
As catecolaminas precisam da tirosina como precursor
A tirosina está presente em carnes, queijos, ovos, leite, castanhas e abacate.

Enzimas que degradam catecolaminas
Monoaminaoxidase (MAO)
catecol O-metiltransfease (COMT)
A catecolaminas podem ser reabsorvidas da mesma forma que foram liberas pelo neurônio pré-sináptico ou também podem ser degradadas pela MAO e COMT. Alguns antidepressivos atuam exatamente aí. Inibem essas enzimas (MAO e COMT) permitem que a quantidade desses neurotransmissores aumente (relacionados ao prazer).
Inibindo MAO pode-se aumentar serotonina, noradrenalina, dopamina e adrenalina.

Bomba de H⁺
- "bomba de prótons"
- Transporta H⁺ de forma ativa(com gasto de energia) para dentro da célula.
- lisossomo possuem essa bomba e por isso conseguem manter o interior da célula mais ácido.
- produzem o ácido clorídrico.
- se não me engano, também está envolvido na produção de gliscose na fotossíntese
Transporte vesicular e receptação de neurotransmissores
- funciona para vesículas sinápticas pequenas. Ous seja, não serve para neurotransmissores peptídicos. (vesículas grandes)
- as vesículas (que estão dentro neurônio) possuem bombas de H⁺ em sua membrana. enquanto a bomba envia prótons (H⁺ ) para para dentro dela, libera os neurotransmissores no citoplasma do terminal neuronal.
- transporte ativo
- as vesículas, portanto, são ácidas.
- São específicos
-Na foto: transporte secundário(cotransporte) (transporte simporte=na mesma direção) de Na⁺ e GABA (na membrana plasmática do terminal neuronal) e Transporte secundário (antiporte) de um neurotransmissor(para fora da vesícula) e prótons (H⁺) para dentro da vesícula. A vesícula neste último caso está dentro do neurônio.
esses transportadores vesiculares podem ser impedidos por alguns fármacos. Ex: Reserpina (inibidor vesicular de monoaminas)

Transporte vesicular e receptação de neurotransmissores 2
- funciona para neurotransmissores não peptídicos. (vesículas grandes)
- as vesículas (que estão dentro neurônio) possuem bombas de H⁺ em sua membrana. enquanto a bomba envia prótons (H⁺ ) para para dentro dela, libera os neurotransmissores no citoplasma do terminal neuronal.
- transporte ativo
- as vesículas, portanto, são ácidas.
- São específicos
-Na foto 1: transporte secundário(cotransporte) (transporte simporte=na mesma direção) de Na⁺ e GABA (na membrana plasmática do terminal neuronal) e Transporte secundário (antiporte) de um neurotransmissor(para fora da vesícula) e prótons (H⁺) para dentro da vesícula. A vesícula neste último casa está dentro do neurônio.
esses transportadores vesiculares podem ser impedidos por alguns fármacos. Ex: Reserpina (inibidor visicular de monoaminas)

Tabela de transportadores de neurotransmissores calcominas
são específicos

Tabela de transportadores vesiculares
são específicos

Tabela de transportadores de neurotransmissores GABA
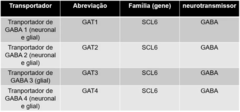
Tabela de transportadores de neurotransmissores Glutamato e Glicina

Reserpina
inibidor visicular de monoaminas

Transporte visicular e reabsorção de neurotransmissor por proteínas de membrana.
Transporte visicular e reabsorção de neurotransmissor por proteínas de membrana.
Neste caso, a cocaína esstá bloqueando a reabsorção dos neurotransmissores, os quais estão se acumulando na fenda sináptica.

Inibidores de transporte
Fármacos antidepressivos, farmacos para o tratamento para defcit de atenção (ritalin=metilfenidato), cocaina e anfetaminas.
a ritalina bloqueia a absorção de noradrenalina. A noradrenalina é importante para a concentração

Fármacos bloqueadores de canais de Cálcio
comuns em animais marinhos
Sinaptotagmina & Sinaptobrevina
Proteínas vesiculares
Sinaptotagmina - "Sensor" de cálcio na vesícula sináptica. É ela que "sentir" se entrou cálcio ou não na célula
Sinaptobrevina (v-SNARE ou VAMP) - Proteína de vesícula que auxilia na ligação com a membrana do terminal neural para promover a exocitose dos neurotransmissores.

Sinaptobrevina
Proteína de vesícula que auxilia na ligação com a membrana do terminal neural para promover a exocitose dos neurotransmissores.
v-SNARE ou VAMP

Sinaptotagmina
"Sensor" de cálcio na vesícula sináptica. É ela que "sentir" se entrou cálcio ou não na célula
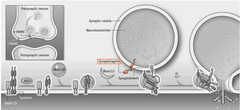
SNAP-25 e Sintaxina
Proteínas de membrana presentes no neurônio pré-sináptico.
se enrolam uma com a outra e depois se enrolam com a Sinaptobrevina presente na vesícula que contém neurotransmissores. vão se enrolando até a vesícula e a membrana ficarem bem próximos, só que ainda não ocorreu exocitose. A exocitose só ira ocorrer com a entrada de Calcio. A Sinaptotagmina "sente/é ativada" que houve entreda de cálcio e começa a fusão entre a membrana da vesícula e a membrana plasmática do terminal do neurônio.

toxina botulínica
Tem vários tipos.
Estudaremos a age sobre as vesículas de acetilcolina.
Endoproteinase que clivam/fragmentam SNAP-25 ou a Sintaxina ou Sinaptobrevina (proteina envolvida na exocitose de neurotransmissores)
Foto A: sistema normal
FOTO B: sistema exposto a toxina botulínica
tetano também faz coisa parecida, mas ataca a Sinaptobrevina

Toxina e proteínas envolvidas na exocitose de neurotransmissores
Na tabela podemos ver onde cada toxina age/prejudica o funcionamento.

Clatrina
proteína que promove a reciclagem de neurotrnasmissores

Clatrina 2
proteína que promove a reciclagem de neurotrnasmissores

Tipos de exocitose
Imagem interessante para ver a atividade da Clatrina (proteína que promove a reciclagem de neurotrnasmissores)

Diferença entre cotransporte e contratransporte

Monoaminas
devem vir de aminoácido como precursores
Tipos de Receptores
💀 Receptores ionotrópicos: provocam a modificação no influo de íons específicos, são relativamente simples no desenvolvimento do processo (geralmente ativados por neurotransmissores)
💀 Receptores acoplados a proteína G: são formados por multicomponentes e causam a produção de segundos mensageiros intracelulares (geralmente ativados por neurotransmissores)
Receptores que possuem atividade enzimática intrínseca (exemplos seriam os receptores de insulina e para citocinas)
Receptores nucleares ou citoplasmáticos: regulam diretamente a transcrição e então a expressão de proteínas específicas (exemplos seriam os receptores para hormônios lipofílicos)
A ligação do agonista (neurotransmissor) ao seu receptor na membrana provoca uma alteração uma conformação da proteína.
Os receptores de membrana usam mecanismos de transdução de sinal para transformar as mensagens dos agonistas (neurotransmissores) em respostas celulares
Nos neurônios as respostas típicas esperadas para cada célula é a alteração do potencial transmembranar e então da excitabilidade da membrana
Estes processos são descritos coletivamente como sinais transmembranares ou mecanismos de transdução de sinal

Receptores ionotrópicos
Ação direta do neurotransmissor
Os receptores de neurotransmissores de primeira classe são canais iônicos ativados por ligantes, também conhecidos por receptores ionotrópicos. Eles passam por uma mudança na forma quando o neurotransmissor se liga, causando a abertura do canal. Isso pode ser um efeito excitatório ou inibitório, dependendo dos íons que possam passar pelos canais e suas concentrações dentro e fora da célula.
Canais ativados por ligantes tipicamente produzem respostas fisiológicas muito rápidas. A corrente começa a fluir (íons começam a atravessar a membrana) em dez micro-segundos após a ligação do neurotransmissor e a corrente para assim que o neurotransmissor não está mais ligado ao receptor. Na maioria dos casos, os neurotransmissores são removidos das sinapses muito rapidamente, graças às enzimas que quebram a ligação ou células vizinhas que os tomam.
Canais de íons ativados por ligantes incluem os receptores nicotínicos de acetilcolina mencionados acima, assim como muitos dos receptores de aminoácidos neurotransmissores glutamato, glicina, e GABA. Um dos receptores de serotonina também é um canal de íon ativado por ligante, como são alguns receptores de neurotransmissores purinérgicos.

Receptores acoplados a proteína g (metabotrópicos)
ação indireta do neurotransmissor
A ativação de receptores de neurotransmissores de segunda classe só afeta a abertura e fechamento do canal iônico indiretamente. Nesse caso, a proteína que se liga ao neurotransmissor - o receptor de neurotransmissor - não é um canal iônico. Sinalização por meio desses receptores metabotrópicos depende da ativação de diversas moléculas dentro da célula e frequentemente envolve uma via de segundos mensageiros. Por envolver mais passos, a sinalização por receptores metabotrópicos é muito mais lenta que aquela feita por canais iônicos ativados por ligantes.
Alguns receptores metabotrópicos têm efeitos excitatórios quando eles são ativados (tornar a célula mais provável a disparar um potencial de ação), enquanto outros têm efeitos inibitórios.
Os receptores da classe acetilcolina muscarínicos, a maioria dos receptores de aminas biogênicas e todos os receptores de neuropeptídeos são receptores metabotrópicos.

Agonista
Sinônimo de neurotransmissor
agonista endógeno: produzido pelo próprio corpo.
agonista exógeno: fármaco.
Neurotransmissores e seus receptores

Receptor nicotínico
Receptor para a acetilcolina que atua na junção neuromuscular
provoca o influxo de Na⁺(Ca⁺ em alguns locais) e desprezível efluxo de K⁺.
Logo, como entra bastante Na⁺, provoca uma potencial exitatório. (PEPS)

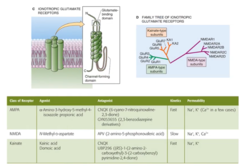
Receptores ionotrópicos para o Glutamato
AMPA - rápidos
NMDA - lento, destaca-se no influxo de cálcio
Kainato - rápidos
todos são permeáveis ao Na⁺, logo, provocam um potencial exitatório(despolarização)
Receptor GABA-α & GABA-β
• GABA-α: Receptor inonotrópico
Promove o influxo de cloreto(Cl⁻), ou seja provoca potencial inibitório(hiperpolarização)
• GABA-β: receptor matabotrópico