Microbiologie Week 6
 Call Kai
 Learn
 Practice Test
 Spaced Repetition
 Match
 Flashcards
 Knowt Play
1/39

There's no tags or description
Looks like no tags are added yet.
40 Terms
Nucleotide excision repair (NER)
Nucleotide excision repair (NER) is een essentieel DNA-reparatiemechanisme dat grootschalige beschadigingen aan de DNA-streng herstelt, zoals DNA-vervormingen die zijn veroorzaakt door UV-straling (bijvoorbeeld thyminedimeren) of chemische stoffen.
Hierbij knippen specifieke enzymen een heel stuk van de beschadigde streng (inclusief de fout) weg, waarna DNA-polymerase en DNA-ligase de opening correct opvullen aan de hand van de onbeschadigde tegenstreng.
Mismatch repair
Mismatch repair (MMR) is een DNA-reparatiemechanisme dat kopieerfouten herstelt die direct na de DNA-replicatie zijn misgelopen door DNA-polymerase.
Het corrigeert verkeerd geplaatste nucleotiden die niet goed met elkaar basenparen (zoals een G tegenover een T) en herstelt kleine haperingen (deleties of inserties) in de nieuw gemaakte DNA-streng.
Antiparallel elongation
Replicaties worden verlengd, waarbij ze vanwege de tegenovergestelde richting van de matrijsstrengen elk op een andere manier moeten worden opgebouwd.
Omdat DNA-polymerase DNA alleen in de 5′-naar-3′-richting kan synthetiseren, leidt dit tot twee verschillende processen bij de replicatievork:
Leading strand (leidende streng): Deze streng wordt continu verlengd in de richting van de opensplitsende replicatievork.
Lagging strand (volgende streng): Deze streng moet noodgedwongen discontinu (in losse stukjes, de Okazaki-fragmenten) worden opgebouwd, weg van de replicatievork.
Hersey-Chase experiment uitleg
Het Hershey-Chase experiment uit 1952 bewees definitief dat DNA het genetische materiaal is van levende organismen, en niet eiwitten.
De bacteriën die geïnfecteerd werden (vaak E. coli), konden twee vormen aannemen na infectie en kweek op een voedingsbodem. Om dit waterdicht te testen, combineerden Hershey en Chase de radioactieve labels met beide bacterietypen. Dit leverde de volgende vier experimentele groepen op:
Groep 1: Virussen met radioactief eiwit (\(^{35}\text{S}\)) ingezet op de S-stam bacteriën.
Groep 2: Virussen met radioactief eiwit (\(^{35}\text{S}\)) ingezet op de R-stam bacteriën.
Groep 3: Virussen met radioactief DNA (\(^{32}\text{P}\)) ingezet op de S-stam bacteriën.
Groep 4: Virussen met radioactief DNA (\(^{32}\text{P}\)) ingezet op de R-stam bacteriën.
Door deze vier groepen parallel te testen, konden ze controleren of het type bacterie (S of R) invloed had op de infectie of dat de resultaten puur door het virusDNA kwamen.
In alle vier de groepen bleef de uitkomst hetzelfde: ongeacht of de bacterie een R- of S-type was, het radioactieve fosfor (\(^{32}\text{P}\)) van het DNA ging altijd de cel in, terwijl het radioactieve zwavel (\(^{35}\text{S}\)) van het eiwit altijd buiten de cel achterblijf in de vloeistof. Dit maakte hun bewijs dat DNA de drager van erfelijke informatie is onomstotelijk.
Experimenten erfelijke code → noem de verschillende experimenten op die hebben geleid tot onze huidige kennis
Griffith experiment
Hersey-Chase
Opheldering van de DNA structuur → Rosalin Franklin → Rontgendifractie
Opheldering van DNA structuren → James watson en francis crick → dubbel helix, suiker-fosfaat buiten, stikstofbasen binnen
Structuren en opbouw van DNA
Fofaat groep, suikergroep, stikstofbase
Griffith experiment uitleg
Conclusies:
• Pathogene eigenschappen van de S stam is opgenomen door de R stam.
• Dit noemde hij "Transformatie".
• Deze pathogene eigenschappen zijn overerfelijk.
Dit was het eerste experiment. De vraag Wat is het actieve component? moest nog beantwoordt worden. Dit werd gedaan in het volgende experiment Hersey - chase

Wat zijn Pyrimidines?
Cytosine (C)
Thymine (T, in DNA)
Uracil (U, in RNA)
Wat zijn Purines?
Purines
Adenine (A)
Guanine (G)
DNA replicatie
Voordat het DNA gekopieerd kan worden, moet de strak gedraaide dubbele helix platgelegd en geopend worden.
Helicase splitsen: Het enzym helicase verbreekt de waterstofbruggen tussen de stikstofbasen. De twee strengen ritsen open. Hierdoor ontstaat een replicatievork.
Stabiliseren: Single-Strand Binding Proteins (SSB's) hechten aan de losse strengen. Zij voorkomen dat de strengen direct weer aan elkaar plakken.
Spanning verlagen: Het enzym topoisomerase loopt voor de vork uit. Dit enzym voorkomt dat het DNA verderop te strak opwindt en breekt.
Het belangrijkste enzym voor de opbouw (DNA-polymerase) kan niet zomaar uit het niets een nieuwe streng starten. Het heeft een bestaand 'haakje' nodig om aan vast te hechten.
Primase actief: Het enzym primase legt een klein stukje RNA aan op de mal-streng. Dit heet een primer.
Startsein: Deze primer biedt de vrije 3'-OH groep die nodig is om de bouw te starten.
Het enzym DNA-polymerase klikt nu de juiste vrije nucleotiden (zoals dATP, dTTP, dGTP, dCTP) aan de mal-streng. Dit enzym werkt altijd van de 5'-kant naar de 3'-kant van de nieuwe streng. Omdat de twee originele strengen antiparallel lopen, gebeurt de opbouw op twee verschillende manieren:
De Leading Strand (Snelle streng):
Loopt in de richting van de replicatievork mee.
DNA-polymerase kan hier in één ononderbroken stuk achter helicase aan werken.
De Lagging Strand (Trage streng):
Loopt in de tegenovergestelde richting van de vork.
DNA-polymerase moet hier steeds achteruit werken in korte, losse stukjes.
Deze losse DNA-fragmenten heten Okazaki-fragmenten. Elk fragment heeft zijn eigen RNA-primer nodig.
Aan het einde van het proces liggen er nog RNA-primers in de nieuwe DNA-strengen en bestaat de lagging strand uit losse stukjes. Dit moet worden opgeruimd.
Primers verwijderen: Een ander type DNA-polymerase verwijdert de RNA-primers. Het vervangt ze door de juiste DNA-nucleotiden.
Lijmen: Het enzym DNA-ligase fungeert als biologische lijm. Het verbindt alle Okazaki-fragmenten aan elkaar tot één doorlopende suiker-fosfaatruggengraat.
Foutencontrole: Tijdens en direct na het proces controleert DNA-polymerase op fouten (proofreading) en herstelt verkeerd geplaatste basen direct.
DNA repair
Proofreading bij DNA-polymerase
Mismatch repair
Nucleotide excision repair (NER)
Het ‘end-problem’' en telomeren
Aan het uiterste einde van het chromosoom wordt de allerlaatste RNA-primer verwijderd.
Hierdoor ontstaat een gat aan het 5'-uiteinde van de nieuwe streng.
DNA-polymerase kan dit gat niet opvullen, omdat er geen upstream 3'-OH groep is om aan vast te hechten.
Bij elke celdeling wordt het chromosoom hierdoor een stukje korter.
Telomeren zijn "beschermkapjes" van herhalend, niet-coderend DNA. Bij elke deling slijt er een stukje van de telomeer af, in plaats van een belangrijk gen.
Als de telomeren na veel delingen te kort zijn geworden, stopt de cel met delen (senescentie) of sterft hij af. (bevalve in stamcellen die telomerase bevatten want die kunnen het weer verlengen)
Semi consveratieve replicatie
Gewoon DNA replicatie

Hoe wordt er een nieuwe nucleotide aan de niewe streng gezet tijdens de replicatie?
Je hebt dus een nucleotiden met 3 fosfaatgroepen, suikergroep en stikstofbase. DNA polymerase haalt 2 fosfaatgroepen er af. Hierdoor kan de nucleotide binden aan de steng. Aan het 3’ OH groep.

Leesrichting DNA en RNA
DNA eiwitten en hun functies

Functie telomeer
Bevatten repeat-sequenties
Beschermen tegen verlies van informatie
Beschermen tegen ongeremde celdeling
Waarom hebben prokaryoten geen telemeren nodig?
Prokaryoten hebben geen telomeren nodig omdat zij circulair DNA hebben en dus geen vrije uiteinden bezitten.
de belangrijkste verschillen aan in de structuur, lengte en organisatie van het genetisch materiaal (DNA) tussen prokaryoten en eukaryoten.

Histonen → Chromatide
Histonen zijn specifieke, bolvormige korte eiwitten waar het lange DNA-molecuul omheen gewikkeld zit. Ze zorgen voor de eerste compacte verpakking van het DNA, zodat de meterslange DNA-draad netjes in de microscopisch kleine celkern past.
Nucleosoom: Een groepje van 8 histonen met het daaromheen gewikkelde DNA vormt samen een soort kraal, die we een nucleosoom noemen.
Chromatine: De keten van deze kralen vormt samen de structuur genaamd chromatine.
Details Histonen
Histonen zijn specifieke, bolvormige korte eiwitten waar het lange DNA-molecuul omheen gewikkeld zit.
Ze zorgen voor de eerste compacte verpakking van het DNA, zodat de meterslange DNA-draad netjes in de microscopisch kleine celkern past.
Histonen zijn positief geladen om interacties an te gaan met het negatief geladen DNA
Modificaties op histon-staarten zijn chemische veranderingen die bepalen hoe strak het DNA om de histonen gewikkeld zit, waarmee de cel genen aan- of uitzet
Details Nucleosoom
Nucleosoom: Een groepje van 8 histonen met het daaromheen gewikkelde DNA vormt samen een soort kraal, die we een nucleosoom noemen.
Bestaat uit 150 basenparen
DNA draait om 8 histonen
Euchromatin
Euchromatin (loosely arranged 10-nm fiber): Dit is de open en losse structuur. De nucleosomen (de histonbolletjes met DNA) liggen relatief ver uit elkaar. Omdat het DNA hier goed toegankelijk is voor transcriptiefactoren en RNA-polymerase, zijn de genen in dit gebied actief en kunnen ze gemakkelijk worden afgelezen.
Heterochromatin
Heterochromatin (densely arranged 10-nm fiber): Dit is de compacte en dicht opeengepakte structuur. De nucleosomen zijn heel strak tegen elkaar aan gedrukt. Hierdoor is het DNA onbereikbaar voor de celmachines, wat betekent dat de genen in dit gebied inactief (uitgezet) zijn.
Wat is een fundamenteel verschil in structuur en functie tussen euchromatine en heterochromatine, zoals ook te zien is bij de compactiegraden in de celkern?
Euchromatine is losser verpakt (als 10-nm fiber) en staat actieve transcriptie toe, terwijl heterochromatine dicht georganiseerd en transcriptioneel inactief is.
Chromatide tijdens celdeling
legt uit hoe het losse DNA zich tijdens de celdeling (mitose) heel compact opvouwt tot strakke chromosomen met behulp van twee belangrijke eiwitcomplexen: Condensin I en Condensin II.
Dit proces van chromosoomcondensatie verloopt in stappen tijdens de verschillende fases van de celdeling:
1. De twee hoofdrolspelers (Eiwitcomplexen)
Om de meterslange DNA-draad zonder knopen op te vouwen, gebruikt de cel twee soorten 'condensine'-eiwitten die als een soort clipjes of steigers werken:
Condensin II: Bindt als eerste aan de 10-nanometer DNA-vezel en vormt een centrale as (steiger). Het maakt grote DNA-lussen die steeds verder uitdijen.
Condensin I: Komt daarna in actie en maakt kleinere lussen bínnenin de grote lussen van Condensin II. Hierdoor wordt de structuur nóg compacter.
2. Het proces per fase (van links naar rechts op de afbeelding)
Profase (Prophase):
De celdeling begint. Het DNA is al verdubbeld en bestaat uit twee zusterchromatiden.
Condensin II (rood) vormt de centrale as. De DNA-lussen worden groter en groter, waardoor het chromosoom korter en breder wordt. aan het eind van de profase is het chromosoom al de helft korter.
Prometafase (Prometaphase):
Condensin I (groen) bindt aan het DNA buiten de centrale as en knijpt de grote lussen samen in kleinere sub-lussen.
De centrale as begint zich als een spiraal (helix) op te rollen. Het chromosoom wordt hierdoor nog compacter en dichter.
Metafase (Metaphase):
Het chromosoom heeft hier zijn maximale compactheid bereikt (meest compacte vorm).
De twee zusterchromatiden zijn nu volledig zichtbaar als de bekende X-vormige structuren en zijn klaar om netjes over de twee nieuwe cellen verdeeld te worden.
Centrale dogma algemeen
DNA → transcriptie → RNA → translatie → eiwitten
Centrale dogma Prokaryoten
In prokaryoten vindt alles plaats in het cytoplasma. Hierdoor kunnen transcriptie en translatie tergelijketijd plaats vinden.
DNA → transcriptie → RNA → translatie → eiwitten
Centrale dogma Eukaryoten
Bij eukaryoten vindt de transcriptie plaats in de celkern en de translatie in het cytoplasma.
DNA → transcriptie → pre-mRNA → RNA processing → mRNA → gaat de kern uit → mRNA → ribosomen → translatie → eiwitten
Start codon
AUG
Stop codons
UAA
UAG
UGA
Hoeveel basen mogelijikheden zijn er voor de codons
3^4 = 64 combinaties
Transcriptie eukaryoten
Fase 1: Initiatie (De start)
Voordat het overschrijven kan beginnen, moet de cel precies weten waar een gen begint en moet het DNA lokaal worden geopend.
De Promotor en de TATA-box: Vlak voor het gen ligt een startgebied op het DNA dat de promotor heet. Dit gebied bevat de TATA-box, die zich upstream (stroomopwaarts, rond positie -25 tot -30) ten opzichte van het eigenlijke startpunt bevindt.
Transcriptiefactoren: Het enzym dat RNA maakt (RNA-polymerase II) kan niet zelfstandig aan het DNA binden. Eerst moeten er speciale eiwitten, genaamd transcriptiefactoren, op deze upstream gelegen TATA-box landen.
Transcriptie-initiatiecomplex: Zodra deze eiwitten op hun plek zitten, bindt RNA-polymerase II eraan vast. Samen voormen ze het startcomplex op het startpunt (+1). Het enzym ritsst de DNA-dubbelhelix open en begint vanaf dit punt downstream (stroomafwaarts) te werken.
Fase 2: Elongatie (De verlenging)
Nu het DNA open is, gaat RNA-polymerase II aan de slag om de RNA-streng te bouwen terwijl het downstream over het gen schuift.
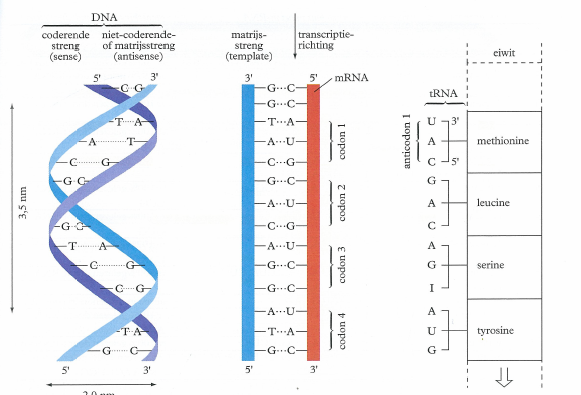
Mal-streng: Het enzym leest slechts één van de twee DNA-strengen af: de template-streng (of matrijsstreng). Deze streng wordt afgelezen in de 3' → 5' richting.
Synthese: RNA-polymerase koppelt vrije RNA-nucleotiden (A, U, C, G) aan elkaar. De nieuwe RNA-streng groeit hierdoor in de 5' → 3' richting, met de stroom mee (downstream). In plaats van Thymine (T) bouwt RNA-polymerase Uracil (U) in tegenover Adenine (A).
Fase 3: Terminatie (Het einde)
Het enzym moet stoppen wanneer het einde van het gen is bereikt.
Terminatie-signaal: RNA-polymerase II passeert verder downstream op het DNA een specifieke volgorde die het polyadenyleringssignaal (vaak AAUAAA in het RNA) codeert.
Loslaten: Kort nadat deze volgorde is overgeschreven, knippen specifieke eiwitten de RNA-streng los van het enzym. RNA-polymerase laat daarna het DNA los, en de DNA-helix ritsst achter het enzym weer dicht
Transcriptie prokaryoten
Fase 1: Initiatie (De start)
Prokaryoten hebben geen celkern en gebruiken slechts één type RNA-polymerase, dat direct in het cytoplasma bindt.
Sigma-factor (Base-herkenning): Om de promotor te vinden, maakt het RNA-polymerase-enzym gebruik van een speciaal hulpeiwit: de sigma-factor.
Upstream regio's: De sigma-factor herkent twee specifieke, vaste sequenties die upstream van het gen liggen: de -10 regio (Pribnow-box) en de -35 regio (respectievelijk 10 en 35 nucleotiden vóór het startpunt +1).
Openen: RNA-polymerase ritsst het DNA open op de promotorplaats en vormt een transcriptie-bubbel. Zodra de eerste 10 nucleotiden downstream zijn gebouwd, laat de sigma-factor los en reist het enzym zelfstandig verder met de stroom mee.
Fase 2: Elongatie (De verlenging)
Bouwen: Het kern-enzym van RNA-polymerase schuift in de 3' → 5' richting over de template-streng en beweegt zich zo downstream over het gen. Het bouwt in de 5' → 3' richting een complementaire RNA-streng met een snelheid van zo'n 40 nucleotiden per seconde.
Fase 3: Terminatie (Het einde)
Helemaal aan het downstream uiteinde van het gen stuit het enzym op een stop-signaal.
Rho-onafhankelijke terminatie: Het gemaakte RNA bevat aan het einde een palindroom (een herhaling die achterstevoren hetzelfde is). Hierdoor vouwt het RNA zich direct in een strakke haarspeldbocht (hairpin loop). Gevolgd door een reeks zwakke U-A bindingen, verliest het enzym zijn grip en valt het van het DNA af.
Rho-afhankelijke terminatie: Een specifiek eiwit (de Rho-factor) landt op het RNA en loopt downstream achter het RNA-polymerase aan. Zodra het enzym bij een moeilijke sequentie afremt, haalt de Rho-factor het in en trekt het RNA mechanisch los.
RNA processing Capping
een speciaal nucleotide (de 5′-cap) aan het begin (het 5′-uiteinde) van een pas gemaakt pre-mRNA-molecuul wordt toegevoegd. De cap is een gemodificeerd GTP. Dit gebeurt in eukaryote cellen al tijdens de transcriptie, zodra het RNA-molecuul een klein stukje uit het RNA-polymerase-enzym steekt.
RNA processing poly adenylation
Locatie: Het vindt plaats aan het 3′-uiteinde van het pre-mRNA.
Herkenning: In de regio die niet vertaald wordt naar eiwit (de 3′ UTR of untranslated region), net voorbij het stopcodon, ligt een specifieke code: het polyadenylatiesignaal met de sequentie AAUAAA.
Knippen: Specifieke eiwitten binden aan dit AAUAAA-signaal en knippen het RNA-strengje 10 tot 35 nucleotiden verderop (downstream) af met behulp van een enzym genaamd endonuclease.
Toevoeging: Direct na het knippen voegt een ander enzym (poly-A-polymerase) een staart van tientallen tot honderden adenines (A) toe aan dit nieuwe uiteinde.
Functies van Capping and Poly adenylation
Stimuleren export van mRNA naar het cytoplasma
Beschermen mRNA tegen hydrolytische enzymen (nucleases)
Helpen ribosomen binden aan het 5' einde
RNA processing Slicing
Intronen worden uit het mRNA gehaald en exonen worden aan elkaar geplakt.
Dit proces wordt uitgevoerd door een groot moleculair complex genaamd het spliceosoom (spliceosome).
Een spliceosoom bestaat uit een combinatie van specifieke eiwitten en kleine RNA-moleculen (small RNAs of snRNA's).
De werking:
De kleine RNA's in het spliceosoom herkennen de specifieke grenzen (de splice sites) van het intron en binden zich daaraan.
Het intron wordt in een lus (een lariat) getrokken.
De RNA-componenten van het spliceosoom werken als een enzym (ribozym) en katalyseren de chemische reactie om het intron door te knippen en de exons nauwkeurig aan elkaar te lassen.
Het losgeknipte intron (cut-out intron) wordt afgebroken, en de onderdelen van het spliceosoom laten los om opnieuw gebruikt te worden.

wat valt onder RNA processing?
Spicing, Poly adenylation, Capping
Waarom zou je willen dat splicing plaats vindt?
Het voordeel is dat de cel door de modulaire structuur veilig kan variëren met exons (bouwstenen) om via alternatieve splicing meerdere eiwitvarianten uit één gen te maken, en via evolutie sneller nieuwe, functionele eiwitten te ontwikkelen.