EME I - Tema 2: Estructuras de las proteínas
 Call Kai
 Learn
 Practice Test
 Spaced Repetition
 Match
 Flashcards
 Knowt Play
1/108

There's no tags or description
Looks like no tags are added yet.
Name | Mastery | Learn | Test | Matching | Spaced | Call with Kai | Chat |
|---|
No analytics yet
Send a link to your students to track their progress
109 Terms
¿Cuál es la estructura general de un α-aminoácido y qué grupos se unen al carbono α?
Está formado por un hidrógeno, un grupo carboxilo (-COOH), un grupo amino (-NH2) y una cadena lateral variable (grupo R), todos unidos covalentemente al mismo carbono central (C^α). Los carbonos sucesivos de la cadena lateral se nombran siguiendo el alfabeto griego (beta, gamma, delta, epsilon, etc.)

¿Qué propiedad estereoquímica presentan los aminoácidos y cuál es la única excepción entre los 20 estándar?
Son moléculas quirales debido a que el C^α es un carbono asimétrico y presentan dos enantiómeros (isómeros D y L). La única excepción es la glicina (Gly), cuya cadena lateral es un simple hidrógeno (H) y carece de quiralidad
Según la proyección de Fischer, ¿cómo se distinguen los enantiómeros L y D, y cuál predomina en la naturaleza?
L-aminoácido: el grupo amino queda orientado a la izquierda.
D-aminoácido: el grupo amino queda orientado a la derecha.
Todas las proteínas naturales contienen isómeros L, debido a la estereoespecificidad de las enzimas de síntesis biológica

¿Dónde se pueden encontrar de forma excepcional D-aminoácidos en los seres vivos?
Se localizan casi exclusivamente en los peptidoglucanos de la pared bacteriana, donde suponen una ventaja adaptativa seleccionada positivamente
¿Cuántos aminoácidos estándar existen y bajo qué criterio de pH se clasifican en los esquemas?
Son 20 aminoácidos estándar y se clasifican según las propiedades fisicoquímicas y el estado de protonación de su cadena lateral a pH 7
¿Cuáles son los 7 aminoácidos apolares alifáticos (no aromáticos) presentados y cuáles son sus abreviaturas?
Glicina (Gly, G)
Alanina (Ala, A)
Valina (Val, V)
Leucina (Leu, L)
Isoleucina (Ile, I)
Metionina (Met, M)
Prolina (Pro, P)

¿Qué particularidad estructural y reactiva presentan las cadenas laterales de los aminoácidos apolares alifáticos?
En general son neutros, muy poco reactivos y sus cadenas están compuestas por hidrocarburos (con grupos -CH3), con la excepción de la metionina (que contiene un enlace tioéter con azufre)
¿Por qué la prolina se considera un iminoácido y qué efecto tiene en la estructura proteica?
Su cadena lateral alifática está ciclada y enlazada de nuevo al grupo amino principal, formando un anillo pirrolidínico y un grupo imino (-NH2+). Esta ciclación confiere rigidez e impone notables restricciones conformacionales a la cadena polipeptídica

¿Qué criterio define estrictamente a un aminoácido como "ramificado" en este grupo y por qué la leucina no lo cumple en comparación con la valina o la isoleucina?
Solo se consideran ramificados aquellos que poseen varios sustituyentes unidos directamente a su carbono β (C^β), como ocurre en la valina y en la isoleucina. La leucina no se clasifica como ramificada en este criterio estricto porque su punto de ramificación se sitúa en el carbono γ (C^γ)
¿Cuál es la particulariedad de Gly?
Es el único aa no quiral y es el más pequeño, lo que hace que tenga más flexibilidad y es adecuado por su tamaño para empaquetar algo mucho
¿Cuáles son los 3 aminoácidos aromáticos, sus abreviaturas y cómo se une su anillo a la estructura principal?
Fenilalanina (Phe, F), Tirosina (Tyr, Y) y Triptófano (Trp, W)
Su anillo aromático se une directamente al carbono β
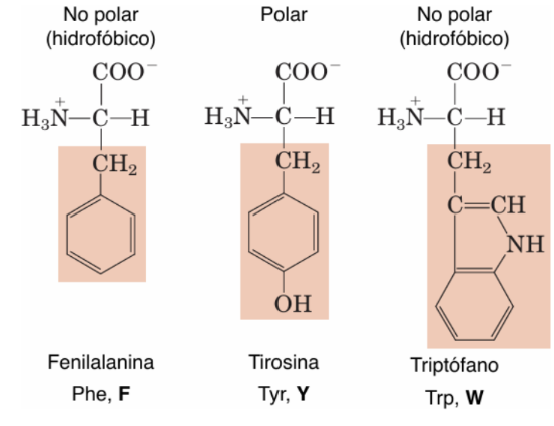
¿Cuál es la polaridad e hidrofobicidad de las cadenas laterales de los aminoácidos aromáticos?
Sus cadenas son predominantemente hidrofóbicas. Phe y Trp son apolares (aunque el grupo -NH indólico del Trp le da cierto carácter parcialmente polar), mientras que Tyr es polar debido a su grupo -OH fenólico (ionizable a pH alcalino)
¿Qué propiedades espectroscópicas poseen los aminoácidos aromáticos (cromóforos y fluoróforos) debido a sus dobles enlaces conjugados y a qué longitud de onda absorben luz UV?
Actúan como cromóforos porque absorben luz UV con un máximo en torno a λmax ≈ 280 nm, y como fluoróforos (especialmente el Trp) porque emiten fluorescencia tras ser excitados. En una proteína, el espectro del Trp domina u opaca a los demás
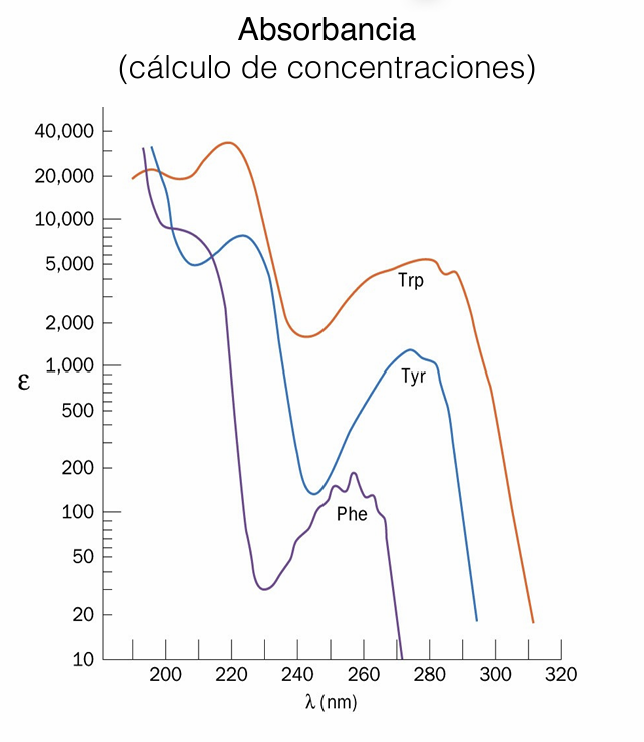
¿Cómo se aprovecha la absorbancia UV de los aminoácidos aromáticos en el laboratorio?
Permite calcular la concentración de proteínas en disolución mediante análisis espectrofotométrico basándose en la ley de Lambert-Beer

¿Cómo varía la fluorescencia del triptófano (Trp) según su entorno físico y para qué sirve en estudios estructurales?
Entorno hidrofóbico (buried / plegada): mayor intensidad de fluorescencia y menor longitud de onda de emisión. Trp enterrado → menos agua/quenching → más intensidad
Entorno hidrófilo (exposed / desplegada): menor intensidad y mayor longitud de onda de emisión. Trp expuesto → entorno más polar → estado excitado más estabilizado → menor ΔE → mayor λ
Utilidad: Permite determinar el grado de plegamiento / desplegamiento de una proteína o el microambiente de un residuo único de Trp

¿Qué ocurre con la fluorescencia en una proteína al aumentar la temperatura?
Disminuye, porque la proteína pasa progresivamente del estado plegado (folded) al desplegado (unfolded)

¿Qué es Tm?
La temperatura de fusión o melting temperature: la temperatura a la que aproximadamente el 50 % de las proteínas están plegadas y el 50 % desplegadas
La gráfica nos permite saber la estabilidad térmica de la proteína y su Tm. Al aumentar la temperatura, la proteína se despliega y cambia la fluorescencia del Trp
¿Cuáles son los 6 aminoácidos neutros polares y cuáles son sus abreviaturas?
Serina (Ser, S)
Treonina (Thr, T)
Cisteína (Cys, C)
Tirosina (Tyr, Y)
Asparagina (Asn, N)
Glutamina (Gln, Q)
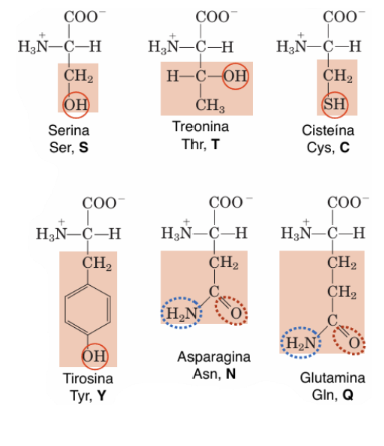
¿Por qué la tirosina (Tyr) y la cisteína (Cys) se agrupan en neutros polares si poseen cadenas laterales ionizables?
Porque a pH fisiológico están predominantemente neutros y solo se ionizan a valores altos de pH:
Cys: forma tiolato (-S^-, carga negativa) a partir de pH ~ 7.5 - 8.3
Tyr: forma tirosinato (-O^-, carga negativa) a partir de pH ~ 9-10
¿Qué particularidad química tiene la cisteína (Cys), qué tipo de enlace forma y cómo afecta a su polaridad?
Su grupo tiol (-SH) es fuertemente reductor y reactivo (frecuente en centros activos). Dos moléculas de Cys pueden oxidarse covalentemente formando cistina mediante un puente disulfuro (-S-S-), perdiendo con ello su carácter polar. En el interior celular los puentes disulfuro son poco comunes por ser un ambiente netamente reductor
¿Qué características funcionales comparten la asparagina (Asn) y la glutamina (Gln)?
Contienen grupos carboxamida terminales que pueden actuar simultáneamente como dadores de puentes de hidrógeno (a través de -NH2) y aceptores (a través del oxígeno carbonílico, =O)
¿Qué modificaciones postraduccionales (PTM) sufren los residuos Ser, Thr, Tyr y Asn según este grupo?
Serina y Treonina: fosforilación y O-glicosilación (son buenos dadores/formadores de enlaces de H)
Tirosina: fosforilación
Asparagina: N-glicosilación en su nitrógeno amídico
¿Qué tipo de enlace forman los aminoácidos con carga positiva y negativa entre sí y cuál es su importancia?
Participan en la formación de enlaces iónicos conocidos como puentes salinos, los cuales son fundamentales para la estabilidad conformacional de la estructura de las proteínas
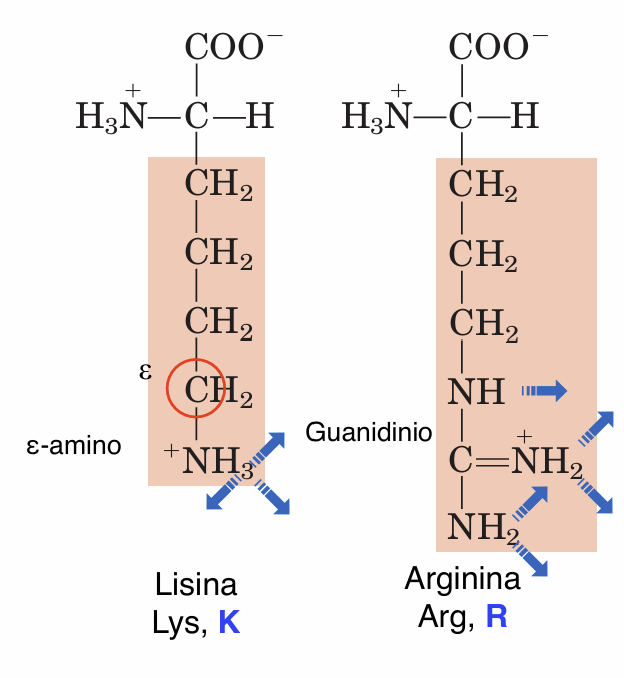
¿Cuáles son los aminoácidos con carga positiva (básicos) y sus abreviaturas?
Lisina (Lys, K)
Arginina (Arg, R)
Histidina (His, H)

¿Qué grupos funcionales ionizables caracterizan a la cadena lateral de la lisina y de la arginina?
Lisina: posee un grupo ε-amino (-NH3+)
Arginina: posee un grupo guanidinio con una carga positiva más deslocalizada por resonancia
¿Bajo qué condición de pH se encuentra cargada la histidina y qué funciones biológicas clave desempeña?
Se encuentra cargada positivamente a pH < 7 (anillo imidazólico protonado)
Es muy reactiva y actúa como catalizador en centros activos de enzimas, las cuales utilizan su estado protonado / desprotonado para activarse y desactivarse
Forma puentes de hidrógeno de manera similar a Asn y Gln (dador: NH+; aceptor: NH o N)

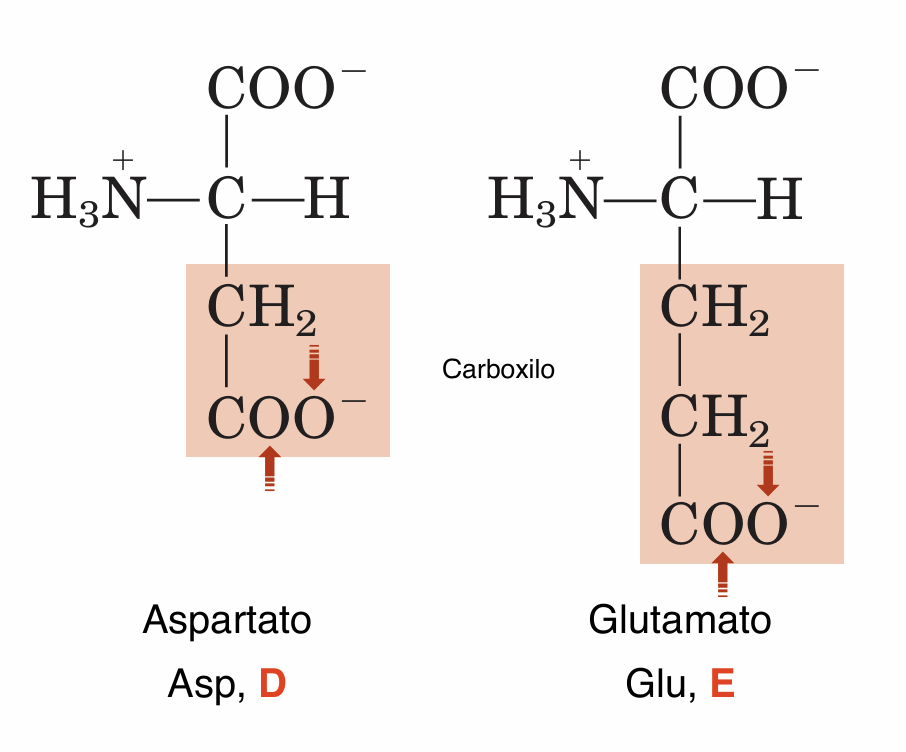
¿Cuáles son los aminoácidos ácidos con carga negativa y qué grupo carboxilo específico porta cada uno en su cadena?
Aspartato (Asp, D): porta un grupo β-carboxilo (-COO^-)
Glutamato (Glu, E): porta un grupo γ-carboxilo (-COO^-)
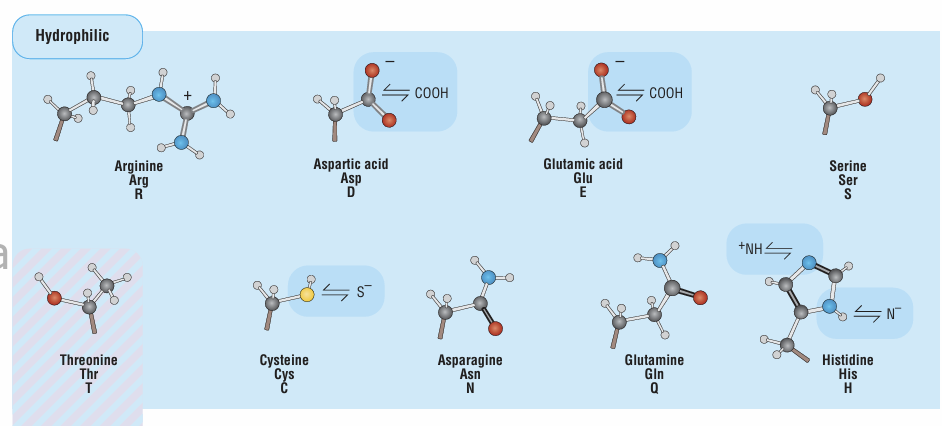
Según la clasificación por hidrofobicidad mostrada (en función de la hidrofobicidad de las cadenas laterales), ¿qué 6 aminoácidos forman el grupo de los hidrofóbicos (Hydrophobic)?
Alanina (Ala, A), Valina (Val, V), Fenilalanina (Phe, F), Prolina (Pro, P), Leucina (Leu, L) e Isoleucina (Ile, I)

Según esta clasificación, ¿qué 8 aminoácidos integran el grupo de los hidrofílicos (Hydrophilic)?
Arginina (Arg, R), Aspartato / ácido aspártico (Asp, D), Glutamato / ácido glutámico (Glu, E), Serina (Ser, S), Cisteína (Cys, C), Asparagina (Asn, N), Glutamina (Gln, Q) e Histidina (His, H)
¿Qué define a los aminoácidos anfipáticos (Amphipathic) y qué miembros se representan en este esquema?
Tienen la capacidad de interaccionar simultáneamente con regiones hidrofóbicas e hidrofílicas. Se incluyen Lisina (Lys, K), Tirosina (Tyr, Y), Metionina (Met, M) y Triptófano (Trp, W)

¿Por qué Thr, Lys y Tyr pueden presentar cierta hidrofobicidad a pesar de tener grupos polares?
Porque poseen una región polar y otra región más hidrofóbica claramente diferenciadas en su estructura
¿Cuáles son los dos únicos aminoácidos señalados con carácter anfipático exclusivo?
La Metionina (Met) y el Triptófano (Trp)

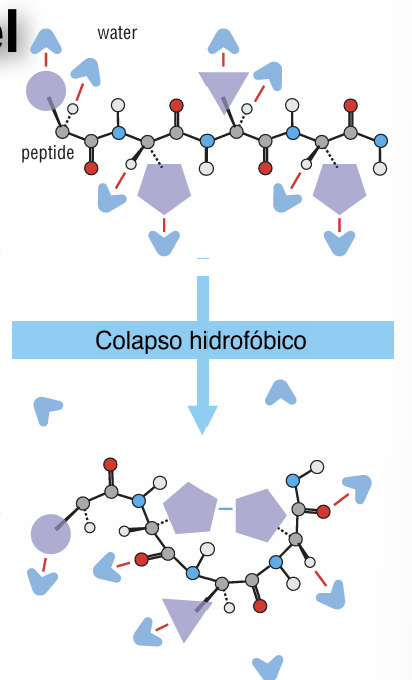
¿En qué consiste el colapso hidrofóbico y por qué es un proceso termodinámicamente favorable?
Consiste en el agrupamiento de las cadenas laterales hidrofóbicas al entrar en contacto con el agua durante el plegamiento de la proteína, excluyendo las moléculas de agua de su entorno. Es favorable porque disminuye el ordenamiento desfavorable del agua (aumenta la entropía global del sistema frente al agua estructurada alrededor de zonas hidrofóbicas expuestas)
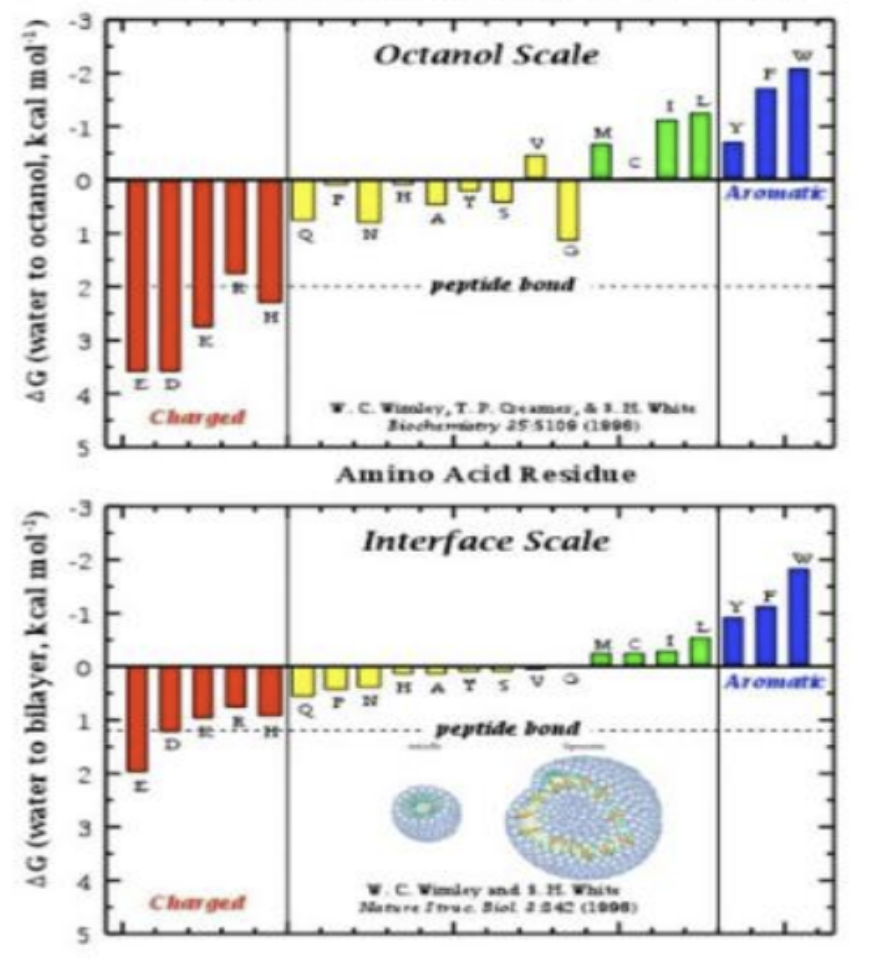
¿En qué criterios se basan las escalas clásicas de hidrofobicidad (1 y 4 vs. 2 y 3)?
Escalas 1 y 4: se basan en el análisis de las estructuras tridimensionales de las proteínas, evaluando la posición real en la que se ubica cada aminoácido (interior vs. superficie).
Escalas 2 y 3: se basan directamente en las propiedades fisicoquímicas intrínsecas de las cadenas laterales de los aminoácidos

¿Cómo se determina experimentalmente la hidrofobicidad de los péptidos?
Se introducen péptidos sintetizados en una mezcla de agua + disolvente orgánico y se mide la concentración de proteína en cada fase usando la absorbancia del Trp y la ley de Lambert-Beer (si el péptido era polar se dirigía al agua, y si era hidrofóbico hacia el octanol)

¿Qué se estudia al analizar la hidrofobicidad de las proteínas?
La contribución del enlace peptídico (nº de aa) y de la cadena lateral de los aminoácidos (tipo de aa) a la hidrofobicidad
¿Por qué, al estudiar la hidrofobicidad, no se tienen en cuenta los grupos COO⁻ y NH₃⁺ de los aminoácidos?
Porque se eliminan sus cargas; por tanto, la hidrofobicidad dependerá de la cadena lateral y del enlace peptídico
¿Cómo se estudia la contribución del enlace peptídico a la hidrofobicidad?
Sintetizando péptidos pequeños con Trp, midiendo su absorbancia y acetilándolos para eliminar la carga
¿Qué aminoácido se utiliza para construir los péptidos y estudiar el efecto del número de enlaces peptídicos?
Leu (leucina), formando péptidos con un número creciente de residuos

¿Cómo se estudia la contribución de la cadena lateral?
Se sintetizan péptidos con las mismas características que los anteriores, pero incorporando cada vez un aminoácido diferente en el medio

¿Qué evalúa la escala de interfacialidad (Interface Scale) frente a la escala de octanol?
Añade una tercera fase consistente en liposomas suspendidos en agua para evaluar la afinidad de los péptidos por ubicarse y permanecer de forma estable en la propia interfase de la bicapa lipídica
¿Qué son los aminoácidos proteicos modificados (no estándar)?
Son residuos que sufren modificaciones postraduccionales (PTM) tras la síntesis proteica, donde la adición covalente de grupos químicos aporta propiedades funcionales específicas ausentes en los 20 aminoácidos estándar
¿Qué es el ɣ-carboxiglutamato y cuál es su función fisiológica?
Es una modificación del glutamato mediante la adición de un segundo grupo carboxilo en su carbono gamma. Sus dos cargas negativas facilitan la unión coordinada de iones de calcio (Ca²⁺) en proteasas clave de la cascada de coagulación sanguínea
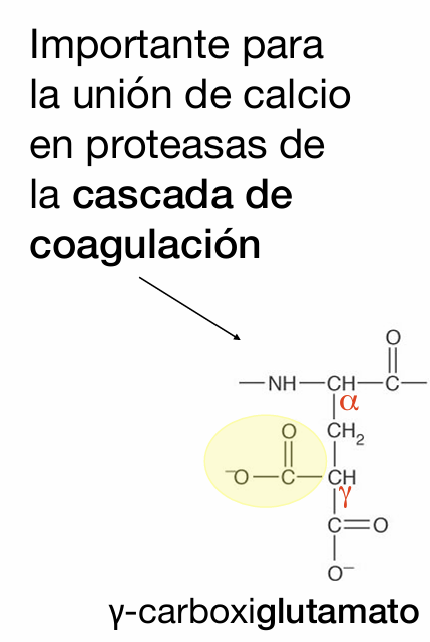
¿De qué aminoácidos derivan la 4-hidroxiprolina y la 5-hidroxilisina, y qué papel cumplen en el colágeno?
Derivan respectivamente de la prolina (Pro) y de la lisina (Lys) mediante hidroxilación. Son indispensables para estabilizar la estructura tridimensional y formar la organización reticular de las fibras de colágeno

¿Qué aminoácidos se fosforilan habitualmente y qué efecto tiene esta modificación en la actividad biológica?
Se fosforilan principalmente Serina (Ser), Treonina (Thr) y Tirosina (Tyr) a través de su grupo hidroxilo (-OH). Actúa como señal de regulación reversible mediada por quinasas y fosfatasas para la activación o inhibición de enzimas y otras proteínas celulares

¿Qué es la selenocisteína (Sec, U, Se-Cys) y por qué se considera un aminoácido proteinogénico?
Es considerado el "aminoácido 21", similar a la cisteína pero con un grupo selenol (-SeH) en lugar de tiol (-SH). Es proteinogénico porque puede incorporarse directamente a las cadenas polipeptídicas durante la traducción

¿Cómo se codifica la selenocisteína en el mRNA y qué elemento regulador requiere?
Es codificada por el codón de parada UGA, el cual es reinterpretado gracias a la presencia adyacente de un elemento SECIS (selenocysteine insertion sequence)
¿Cuáles son las propiedades fisicoquímicas, redox y biológicas clave de la selenocisteína?
Presenta un pKa ≈ 5.5, por lo que se encuentra desprotonada a pH fisiológico.
Posee menor poder reductor que la cisteína, otorgándole un papel fundamental como antioxidante
Está presente en selenoproteínas (enzimas oxidorreductasas y metabolismo de hormonas).
En su forma oxidada forma enlaces covalentes diseleniuro Se - Se (selenocistina)
¿Qué son los aminoácidos no proteinogénicos y qué ejemplos clave existen según su función biológica?
Son derivados de los 20 aminoácidos estándar que no forman parte de proteínas pero actúan como mensajeros o intermediarios:
Neurotransmisores: GABA (ácido gamma-aminobutírico, derivado de Gln), Dopamina (derivada de Tyr) y Serotonina (derivada de Trp)
Hormonas: Tiroxina (derivada de Tyr) y Ácido indolacético (auxina, derivada de Trp)
Precursores e intermediarios metabólicos: Citrulina y Ornitina
¿Por qué se dice que los aminoácidos son sustancias anfóteras y qué es un zwitterion?
Son anfóteros porque pueden actuar simultáneamente como ácidos y como bases
A pH = 7, los aminoácidos sin cadena lateral ionizable actúan como zwitteriones (estado dipolar neutro), teniendo simultáneamente una carga positiva (-NH3⁺) y una negativa (-COO⁻) con carga neta 0

¿Cómo describe la ecuación de Henderson-Hasselbalch la proporción de las especies ionizables de un aminoácido?
Mediante la relación:
pH = pKa + log([desprotonado] / [protonado]) = pKa + log([base] / [ácido])
Cada grupo ionizable actúa como un tampón donde los puntos de inflexión de la curva corresponden al valor de pKa de cada grupo

¿Qué se puede mostrar con una curva de valoración?
Cada “escalón” corresponde a un equilibrio de ionización
Cada punto de inflexión corresponde al valor del pKa de cada grupo ionizable
Cada grupo ionizable actúa como un tampón: la proporción entre especies del tampón se describe por la ecuación de Henderson-Hasselbach

¿A qué grupos corresponden los valores pKa1, pKa2 y pKR, y cuál tiene mayor tendencia a ceder su protón?
pKa1 ≈ 2: grupo ɑ-carboxilo; es el valor de pKa más bajo debido a su máxima tendencia a ceder el protón
pKa2 ≈ 9-9.5: grupo ɑ-amino
pKR: cadena lateral ionizable
¿Cuáles son los valores de pKR?
Ácido aspártico: 3.86
Ácido glutámico: 4.25
Histidina: 6.0
Cisteína: 8.33
Tirosina: 10.07
Lisina: 10.79
Arginina: 12.48
¿Qué es el punto isoeléctrico (pI) de un aminoácido y cómo se calcula en una curva de valoración?
Es el valor de pH en el cual la concentración de la especie con carga neta cero alcanza su proporción máxima. Coincide con un punto de equivalencia y se calcula como la media aritmética de los dos pKa que delimitan y flanquean la especie neutra (por ejemplo, pI = (pK1 + pK2) / 2 en ácidos como Glu, o (pKR + pK2) / 2 en básicos como His)

¿Cómo se forma químicamente el enlace peptídico y qué tipo de enlace es?
Es un enlace de tipo amida que se forma covalentemente entre el grupo ácido carboxílico de un aminoácido y el grupo amino del aminoácido siguiente

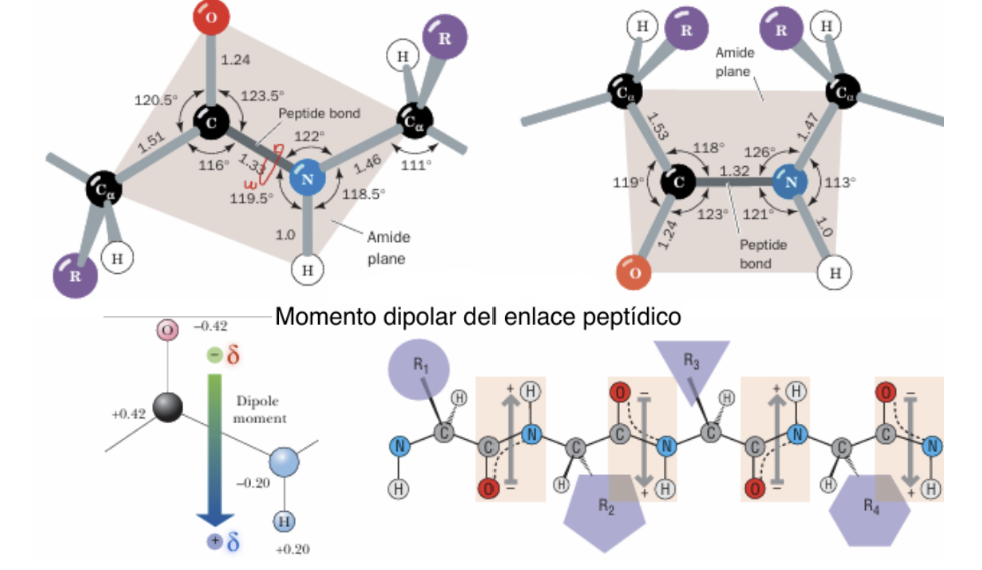
¿Cuáles son las propiedades fisicoquímicas y geométricas fundamentales del enlace peptídico?
Es rígido y planar (todos sus átomos se ubican en el mismo plano)
No tiene libertad de giro sobre el eje C–N
Presenta un carácter parcial de doble enlace (aproximadamente un 40%) debido a la resonancia entre formas canónicas
Su longitud de enlace C–N es más corta que la de un enlace simple C–N convencional

¿Qué isomería conformacional adopta predominantemente el enlace peptídico y qué excepción cuantitativa existe con la prolina?
Se encuentra habitualmente en conformación trans en una proporción de 10³ : 1 frente a cis, minimizando impedimentos estéricos.
Excepción: En los enlaces X-Pro (con prolina como segundo residuo), la conformación cis es más significativa, aunque sigue dominando la conformación trans en una proporción 3:1

¿Qué características tiene el momento dipolar del enlace peptídico y qué ocurre en una conformación extendida?
Los grupos C=O (polar negativo en el oxígeno) y N-H (polar positivo en el hidrógeno) poseen polaridad y participan en puentes de hidrógeno. En una conformación polipeptídica extendida, las orientaciones alternas de estos dipolos hacen que el momento dipolar neto se acabe anulando.
Aunque cuando hay una estructura ordenada, es posible que el momento dipolar de la proteína pueda orientarse y generar un momento dipolar mayor y usarlo para facilitar la orientación del sustrato o interaccionar con otras proteínas)
¿Qué es un péptido y en qué consiste el fenómeno de plegamiento inducido en los péptidos antimicrobianos?
Un péptido es un polímero de pocos residuos aminoacídicos (aproximadamente menos de 30) con escasa complejidad estructural propia
Plegamiento inducido: Los péptidos antimicrobianos carecen de estructura secundaria definida en disolución acuosa, pero al entrar en contacto con dianas como bacterias o micelas lipídicas, se pliegan adoptando conformaciones concretas (ɑ-hélices o láminas ʙ)

¿Qué función y características estructurales presenta la hormona peptídica glucagón?
Está formado por 29 aminoácidos, estimula la producción hepática de glucosa para aumentar la glucemia y adopta una estructura tridimensional ɑ-helicoidal reconocida por receptores específicos de membrana

¿Qué es el glutatión ɣ-glutamil-L-cisteinilglicina) y cuál es su función biológica?
Es un tripéptido que funciona como agente reductor y antioxidante, protegiendo a las células frente a productos oxidantes y especies reactivas derivadas del metabolismo del oxígeno gracias al grupo tiol (-SH) de su cisteína
¿Cuáles son otros ejemplos de hormonas peptídicas?
Vasopresina (Cys-Tyr-Ile-Gln-Asn-Cys-Pro-Leu-Gly-NH2): hormona antidiurética (regulación del equilibrio hídrico)
El NH2 del final hace referencia a que el carboxilo del C-terminal está amidado (modificarse tras la síntesis al unirse con un NH3)
Oxitocina (Cys-Tyr-Phe-Gln-Asn-Cys-Pro-Arg-Gly-NH2): hormona sexual (estimula la secreción de la leche y la contracción muscular uterina durante el parto)
Opiáceos (leu- y met-encefalinas): pentapéptidos que intervienen en el alivio del dolor
¿Cómo se definen las proteínas?
Son cadenas largas de aminoácidos que se pliegan en una estructura tridimensional definida para realizar funciones biológicas (catálisis, transporte, defensa, regulación, soporte estructural, almacenamiento, movimiento, detoxicación, etc.)
¿Cuáles son los principales tipos de proteínas según su forma global?
Fibrilares: Estructura alargada y monótona (p. ej., colágeno) (generalmente insolubles en agua)
Globulares: Plegamiento compacto y más o menos esférico; son las más abundantes y desarrollan funciones dinámicas (generalmente solubles en agua)
De membrana: Unidas o insertadas en la bicapa lipídica.
Desordenadas: Carecen de una estructura local intrínseca definida hasta que interactúan con otros compuestos
¿Por qué se han descrito las proteínas desordenadas recientemente?
Porque se suele hacer mediante difracción de rayos X, pero como estas están desordenadas y no forman cristales, no se podía aplicar esta técnica
¿Cómo se clasifican las proteínas según su composición química y qué distingue a una apoproteína de una holoproteína?
Simples: Compuestas exclusivamente por residuos aminoacídicos.
Conjugadas: Compuestas por la cadena polipeptídica más un componente no proteico denominado grupo prostético.
Apoproteína: La fracción exclusivamente polipeptídica desprovista del grupo prostético.
Holoproteína: El complejo funcional completo formado por el polipéptido unido a su grupo prostético
¿Cuáles son 5 clases principales de proteínas conjugadas según la naturaleza de su grupo prostético?
Glicoproteínas (glúcidos)
Lipoproteínas (lípidos)
Metaloproteínas (iones metálicos)
Hemoproteínas (grupo hemo)
Fosfoproteínas (grupos fosfato)
¿De qué factores surge y depende el plegamiento tridimensional de una proteína?
Surge de la búsqueda de la conformación más estable mediante interacciones intramoleculares (generalmente de carácter débil) entre residuos de aminoácidos, y depende directamente de la secuencia de aminoácidos y de las características del disolvente
¿Cuáles son los cuatro niveles estructurales de las proteínas y qué define a cada uno?
Estructura primaria: Secuencia lineal y ordenada de aminoácidos
Estructura secundaria: Plegamiento local del esqueleto polipeptídico (pueden coexistir varios de manera independiente en la misma proteína)
Estructura terciaria: Plegamiento tridimensional global de una sola cadena polipeptídica
Estructura cuaternaria: Organización espacial multimérica constituida por varias cadenas polipeptídicas asociadas
¿Cómo se define la estructura primaria y en qué sentido se lee su secuencia?
Se define como la secuencia lineal de aminoácidos en un orden y dirección fija, leída siempre desde el extremo N-terminal hasta el extremo C-terminal, se representa convencionalmente con el código de una sola letra de los aminoácidos y es específica de cada proteína
¿Qué relación existe entre las proteínas homólogas y la comparación de sus secuencias primarias?
Las proteínas homólogas (con un origen evolutivo común) tienen secuencias y funciones biológicas similares. La comparación de secuencias permite deducir relaciones evolutivas y filogenéticas, mostrando baja variabilidad intraespecífica y entre especies emparentadas
En la estructura primaria, ¿qué diferencia a los aminoácidos invariables de las mutaciones conservadoras?
Aminoácidos invariables: Son críticos para la función de la proteína y deben mantenerse estables; cualquier mutación en ellos altera gravemente su viabilidad o produce patologías moleculares
Mutaciones conservadoras: Son sustituciones entre aminoácidos químicamente parecidos (por ejemplo, entre Ser y Thr) que generalmente no alteran la función biológica de la proteína
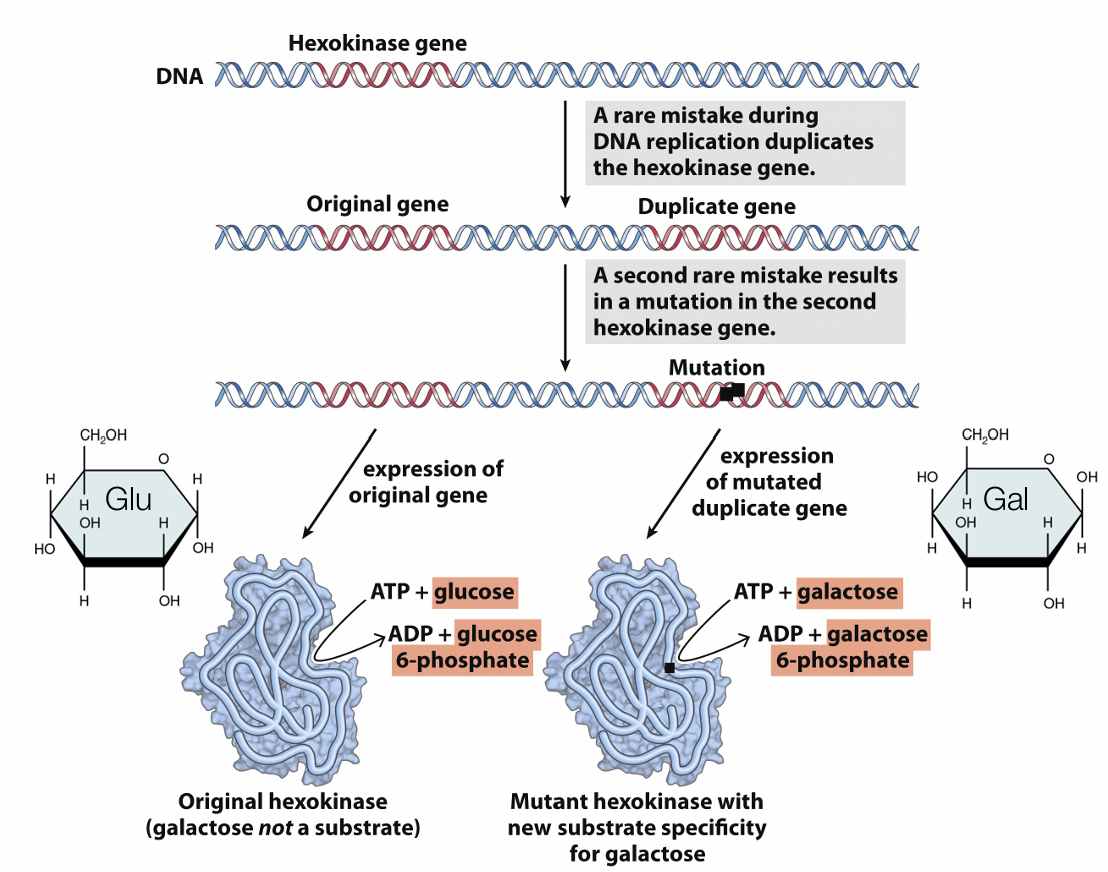
¿Cómo pueden la duplicación génica y la mutación originar una ventaja evolutiva (ejemplo de la hexoquinasa)?
Tras duplicarse un gen, una de las copias puede acumular mutaciones sin comprometer la función original del organismo, adquiriendo una nueva especificidad de sustrato (por ejemplo, una hexoquinasa ancestral que fosforilaba glucosa muta para pasar a fosforilar galactosa)
¿Qué es la estructura secundaria de una proteína y qué enlaces químicos la estabilizan?
Son patrones repetitivos de plegamiento local del esqueleto polipeptídico (sin considerar las cadenas laterales). Se estabilizan por un número elevado de enlaces (puentes) de hidrógeno entre los grupos peptídicos C=O y N-H; cuantos más se formen, más favorable es la estructura, siendo termodinámicamente muy desfavorable su pérdida
¿De qué combinaciones depende la estructura secundaria si el enlace peptídico es rígido?
Depende de la combinación de rotámeros generados por la torsión de los enlaces sencillos que unen al carbono ɑ, los cuales sí tienen libertad de rotación

¿Qué enlaces del esqueleto definen respectivamente a los ángulos diedros φ (phi) y ψ (Psi)?
φ (phi): Giro sobre el enlace entre el nitrógeno amídico y el carbono ɑ (-N-Cɑ-)
ψ (psi): Giro sobre el enlace entre el carbono ɑ y el carbono carbonílico (-Cɑ-CO-)
¿Qué factores limitan las conformaciones posibles de los ángulos φ y ψ, y de qué depende la conformación más favorable?
Las conformaciones están restringidas y limitadas por choques estéricos entre los distintos grupos atómicos (-NH-, -CO- y las cadenas laterales -R)
La conformación energéticamente más favorable depende de la secuencia concreta de aminoácidos (volumen y estructura de las cadenas laterales)

En el diagrama de Ramachandran, ¿qué representan las zonas blancas y las zonas azules, y qué residuo suele aparecer en zonas prohibidas?
Fondo blanco: Valores conformacionales prohibidos por choques estéricos
Zonas azules: Valores posibles y más probables al minimizar repulsiones (cuanto más intenso el azul, más favorable)
Excepción: La glicina (Gly) y otros residuos pequeños pueden ocupar zonas formalmente prohibidas debido a su ausencia de cadena lateral voluminosa y extrema flexibilidad
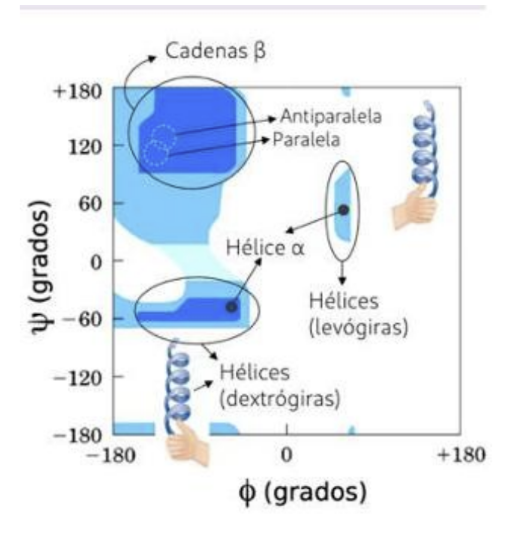
¿Cuáles son los tipos principales de estructura secundaria y por qué predominan las hélices dextrógiras?
Hélices dextrógiras (ɑ, 310, pi), cadenas ʙ (paralelas y antiparalelas), giros ʙ y hélices levógiras (menos frecuentes)
El giro a derechas (dextrógiro) es el más favorable debido a la estereoisomería específica L de los aminoácidos naturales
¿Cuáles son los parámetros geométricos fundamentales de la hélice ɑ (φ, ψ, residuos por vuelta, avance y rotación)?
Ángulos: φ ≈ -60º (o -57º) y ψ ≈ -40º a -50º (o -47º)
Residuos por vuelta: ≈ 3.6 residuos (entre 3 y 4)
Avance: 5.4Å por vuelta 1.5Å por residuo)
Rotación: 100º entre residuos consecutivos

¿Cómo se disponen los puentes de hidrógeno en una hélice ɑ y cuántos átomos forman el bucle cerrado?
Se establecen intracatenariamente entre el grupo carbonilo (C=O) del residuo i y el grupo amina (N-H) del residuo i+4. Cada bucle cerrado por el puente de hidrógeno contiene 13 átomos (de ahí la notación ɑ o 3.613). Se requiere una longitud mínima de 5 residuos para formar un puente de H intracatenario
¿Hacia dónde se orientan las cadenas laterales en la hélice α y qué ventaja ofrece esta disposición?
Se proyectan hacia el exterior de la hélice, lo cual minimiza repulsiones estéricas con el esqueleto y posibilita interacciones entre cadenas laterales cercanas
¿Qué interacciones entre cadenas laterales pueden estabilizar o desestabilizar la hélice ɑ?
Ocurren típicamente entre residuos i con i ± 3 e i ± 4:
Electroestáticas atractivas: residuos de distinta carga (estabilizadoras).
Electroestáticas repulsivas: residuos voluminosos o con la misma carga contiguos (desestabilizadoras).
Efecto hidrofóbico: empaquetamiento de cadenas apolares
¿Qué aminoácidos desestabilizan o rompen la hélice α y por qué mecanismo específico?
Prolina (Pro): rompedor de hélices; su anillo pirrolidínico restringe el giro de φ y carece de -NH dador de puente de H.
Glicina (Gly): aporta excesiva flexibilidad conformacional al carecer de cadena lateral, impidiendo interacciones estables.
Residuos voluminosos (Trp) y ramificados en Cʙ (Val, Thr, Ile): generan choques estéricos cerca del eje principal de la hélice
¿Qué es el macrodipolo de la hélice ɑ y cómo se distribuye su densidad de carga?
Surge de la alineación aditiva y paralela de los momentos dipolares individuales de cada enlace peptídico (3.5 Debye cada uno). Esto genera un momento dipolar neto total de n x 3.5 Debye (n = número de residuos), equivalente a un gradiente de 0.5-0.7 unidades de carga con densidad de carga positiva en el extremo N-terminal y densidad de carga negativa en el extremo C-terminal

¿Cuáles son algunos tipos de hélices no canónicas?
3-10 hélice: más “estirada” (3 residuos por vuelta y 10 átomos por bucle)
Pi-hélice: más “achatada”
Poliprolinas: la prolina generalmente desestabiliza la hélice, pero cuando hay muchas juntas permiten formar una estructura especial con ángulos raros (la +común es la poliprolina II)

¿Cuál es la relevancia funcional de las secuencias ricas en prolina presentes en los proteomas?
Desempeñan un papel indispensable en una multitud de interacciones proteína-proteína funcionando como motivos de reconocimiento específicos
¿Qué efecto conformacional tiene la prolina sobre las estructuras secundarias regulares y en qué parte de la proteína suelen situarse las secuencias ricas en prolina?
Rompe y desestabiliza las estructuras secundarias regulares (ɑ-hélices y hojas ʙ).
Como consecuencia, estas secuencias ricas en prolina suelen localizarse en la superficie de la proteína
¿Por qué la prolina es el aminoácido más idóneo entre los 20 estándar para mediar interacciones binarias proteína-proteína?
Porque para que un segmento peptídico participe en interacciones binarias debe estar expuesto al disolvente y accesible a la superficie complementaria; al romper estructuras compactas internas, la prolina dirige la cadena hacia la superficie externa de la proteína
¿Qué restricción estructural causa el cierre de la cadena lateral de la prolina en un anillo pirrolidínico?
Restringe drásticamente uno de sus ángulos diedros (el ángulo φ), limitando en gran medida su libertad conformacional
¿Cuál es la estructura secundaria más común formada por dos o más residuos consecutivos de prolina?
La conformación de poliprolina II (PPII)

¿Cuáles son las tres características geométricas y químicas principales de la hélice de poliprolina II (PPII)?
Es una hélice a izquierdas (levógira)
Tiene una periodicidad de 3 residuos por vuelta
La falta del protón amida en el nitrógeno peptídico impide formar puentes de hidrógeno intraesqueleto, dejando libres a los grupos carbonilo (C=O)
¿Cómo se orientan espacialmente los grupos funcionales en la hélice de poliprolina II y qué ventaja funcional supone?
Tanto las cadenas laterales como los grupos carbonilo (C=O) del esqueleto peptídico se proyectan hacia fuera del eje de la hélice, manteniéndose completamente expuestos y accesibles para interaccionar con otras moléculas
¿Qué trascendencia evolutiva tiene la tolerancia a mutaciones en la conformación de poliprolina II?
Es una estructura relativamente resistente a mutaciones, lo que facilitó su papel clave en la evolución de dominios modulares especializados en unirse a secuencias ricas en prolina (motivos de unión frecuentemente enriquecidos en residuos como Lys y Trp)
¿Qué es una cadena β y cómo se forma una hoja β?
Una cadena β es un segmento polipeptídico en conformación extendida, favorable estéricamente pero incapaz de formar interacciones intracatenarias al no estar dispuesto helicoidalmente
Una hoja β se forma por la asociación lateral y el alineamiento de 2 o más segmentos β adyacentes, adquiriendo apariencia de lámina plegada con una unidad repetitiva cada 2 residuos
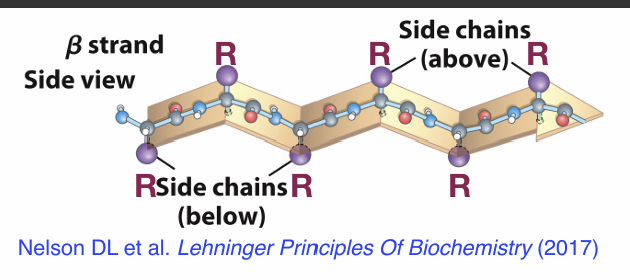
¿Cómo se disponen los puentes de hidrógeno y las cadenas laterales en las hojas β?
Los grupos -CO y -NH forman puentes de hidrógeno intercatenarios entre cadenas adyacentes estabilizando la lámina.
Las cadenas laterales se disponen perpendicularmente a los lados del plano de la hoja, alternándose sucesivamente a uno y otro lado
¿Qué diferencias estructurales y de estabilidad existen entre las hojas β paralelas y antiparalelas?
Hojas β paralelas: Las cadenas discurren en el mismo sentido; los enlaces de H quedan inclinados (peor orientados y más débiles), y los segmentos requieren unirse mediante conexiones largas.
Hojas β antiparalelas: Las cadenas discurren en sentidos opuestos; los enlaces de H están perfectamente alineados (mejor orientados, más fuertes y más estables), permitiendo uniones mediante conexiones mínimas

¿Por qué son frecuentes los aminoácidos con cadenas laterales voluminosas e hidrofóbicas en las hojas β?
Al proyectarse perpendicularmente hacia lados opuestos, los residuos voluminosos no chocan entre sí. Al ocupar más espacio se sitúan muy próximos unos a otros, lo que favorece interacciones de Van der Waals; asimismo, al ser hidrofóbicos, tienden a agregarse para excluir el agua, reforzando la estabilidad de la estructura
¿Por qué la prolina (Pro) no es compatible con las cadenas β?
Porque el cierre cíclico de su cadena lateral fija el ángulo phi en torno a -60º, mientras que en las conformaciones de cadena β extendida se requiere que los ángulos diedros estén completamente extendidos (≈ ± 180º)