spieren
 Call Kai
 Learn
 Practice Test
 Spaced Repetition
 Match
 Flashcards
 Knowt Play
1/37

There's no tags or description
Looks like no tags are added yet.
38 Terms
skeletspier
meerdere celkernen in 1 spiercel
aantal spiercellen blijft maar het oppervlakte verandert
netwerk sacloplasmatrisch reticulum voor calcium → contractie
sarcomeer → contractie

sarcomeer
Sacromeer is waar de contractie plaatsvindt door interactie actine en myosine
Myosinehoofdjes stoten aan actineketen
Titine houdt de spiercel samen, elasticiteit
M-lijn = complexe structuur -> zorgt voor weerstand sarcomeer
Verschillende bindingsplaatsen op actine is enkel beschikbaar bij aanwezigh calcium -> titine is calciumsensor -> conformatieverandering waardoor bindingsplaats vrijkomt

dwarsbrugcyclus
na atp release krijgen we de stevigste confirmatie waarin die blijft
3 is krachtopwindende en snelheidsbep stap
alle myosinehoofdjes tgl

hartspiercel
1 cel = 1 celkern
plasmamembr-SR interactie
desmosomen en gep junctions → elektrisch signaal → tgl contractie

gladde spiercellen
niet-strakke ordening sarcomeren → niet gestreept
actine-myosine lopen chaotisch
sarcomeren verbonden door dense bodies (plm dense bodies verb actineketens met celmebr) en IF houden dense bodies op hun plaats
calmoduline (calciumstijging zorgt voor ca cam complex vorming) → activatie myosine light chain kinase (MLCK) → fosforylatie 2 van 4 lichte ketens (MLC) voor geactiveerde interactie actine-myosine
MLCP defosforyleert myosine → stop dwarsbrugcyclus: actine en myosine blijven van elkaar
MLCK en MLCP inhibitoren en stimulatoren zijn bel regelingssyclus
latch-toestand
interacties tussen actine en myosine:
A: actine; M: myosine; Mp: gefosforyleerd myosine; A•M: actomyosine complex.
In de latchtoestand blijft Actine nog langer gebonden met Myosine (vergelijk met rigor mortis).
De snelheid van de cyclus daalt, maar krachtontwikkeling/(eenheid ATP verbruik) stijgt.

RyR1-kanalen uit SR in skeletspiercellen
AP voortgeleid doorheen cel → T-tubuli (dicht opeen!) depolarisatie → spanningssensor beweegt van CaV knapalen (DHPR, L-type spanningsafh calciumkanaal geblokkeeert door Dihydropyridine-klasse) → RyR1 kanaal (Ryodinereceptor) geopend → Ca vrij uit SR (release) → activatie dwarsboogcyclus
bij hele grote depolarisatie en dus max kracht minder calciuminstroom want Vm> Vcalcium
calciumflux doorheen L-Cav niet essentieel voor excitatie-contractie, bew van spanningssensor wel!
calciumrelease is wel nodig en daarvoor is depolarisatie nodig
relaxatie vooral vie SERCa pomp

excitatie in hartspiercellen
AP calcium influx via L type alfa 1 c is essentieel voor de initiatie van de contractie
kracht contractie en alfa 1c stroom duidelijk gecorreleerd
RyR2 zorgt vervolgens voor ca release uit SR
relaxatie via NCX en SERCa/PMCa pomp
versterking harspiercontracite door beta-adrenerge stimulatie via adrenaline
Calciuminflux in hartspiercel -> de bepaler hoeveel de calciumgradiënt stijgt -> bepaler hoeveel myosinehoofdjes worden geactiveerd -> bepaler hoe hard de contractie is
Sympatisch zs verhoogt contractiekracht -> PKA fosforyleert PLB enzo -> hogere calciumgradiënt
Tropine I activatie zorgt voor troponine I grotere affiniteit voor troponinebindingsplaats -> hogere competitie met myosinehoofdjes -> snellere hyperpolarisatie (?) -> spier is sneller klaar om opnieuw te depolarisatie
Hartfalen = spier depolariseert niet snel genoeg om sterke snelle contractie te deon -> adrenaline en noradrenaline (betareceptoren) of zeker nu fosfodyester inhibitoren of calciumsentizers (verhogen calciumgevoeligheid) geven aan patiënten

RyR3
epitheel hersenen, gladde spier, endotheelcel, etc.
contractie-relaxatie gladde spiercellen
divers in oa nt, maar ook die zijn niet altijd nodig: pacemakercellen doen aan spontane contractie en reageren op mechanische stimulatie
trage contracties
AP minder eenvormig, membraanpotentiaalverandering ook niet essentieel voor contractie
afh van calcium maar zonder calciumverandering, door regeling MLCK en MLCP, kan je ook contracties krijgen
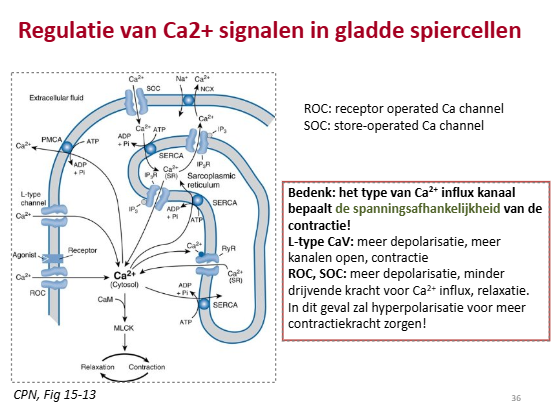
regulatie calciumsignalen in gladde spiercellen
Intracellulaire calcium soms essentieel voor de contractie
MAAR dit kan ook
MLCL moet geactiveerd worden of de inhibitoren, naar inhibitor moet geïnactiveerd worden
Heel diveresse calciumkanalen -> diverse manieren activatie
L-type calciumkanaal is niet aanwezig in alle gladde spiercellen ->bij bepaalde wel aanwezig en dan wordt dat gebruikt voor de calciuminflux
-> Waar dat niet is, worden ROC en SOC gebruikt, waarbij hoe positiever de membraanpotentiaal, hoe meer stijgijng er zal zijn in de cel
contractie via neurotransmitters gladde spiercellen
depolarisatie afh contractie
signaaltransductiecascade → activatie ionenkanalen → depolarisatie membraanpotentiaal → CaV activatie → activatie MLCK → contractie
AP ontstaat via bv noradrenaline binding op alfa1 type receptoren voor noradrenaline → PLC splitst in IP3 → depolarisatie = signaaltransductiecascade
depolarisatieonafh contractie
geen CaV
signaaltransductiekanalen activeert ionenkanalen (receptor operated ca channels (roc kanalen)) → calciuminflux → activatie MLCK → contractie
hoe meer Vm gedepolariseert, hoe minder calciuminflux en dus contractie
PKC verhoogt gevoeligheid voor calcium van de extractie-contractiekoppeling
aanpassen van calciumgevoeligheid
inhibitie MLCP → meer calciumgevoeligheid
allergische reactie
Histamiene zorgt voor enorme val van bloeddruk en ademhalingsproblemen
Histaminereceptoren zijn aanwezig in bronchiolen in de longen en in de bloedwanden
Zowel histamine en adrenaline hebben 2 tegenovergestelde effecten in verschillende soorten gladdespiercellen -> maakt gladdespiercellen zoveel meer complex dan andere spiercellen

contractie en relaxatie in vasculaire gladde spiercellen
combinatie van al deze factoren bepaalt sterkte contractie/relaxatie
calciumconc is ook divers
1 nt kan in verschillende cellen op verschillende receptoren binden → verschillende effecten
eigenschappen vasculaire spiercel hangt af van genetische identiteit cel die bepaalt welke receptor tot expressie komt → bepaalt op welke nt en op welke manier het gaat reageren

unit
een groepje spiercellen in een spierbundel die 1 motorneuron controleert → contractie spier door verschillende motorneuronen tezamen gereguleerd (sterktebepaling)
calcium en contractiekracht (spiercel)
zolang calciumconc boven transhhold is is de dwarsbrugcylcus actief
hoe langer de cyclus blijft draaien, hoe sterker de contractie
tijdens cacliumtransiënt kan nieuw AP ontstaan want de spiercel is nog steeds prikkelbaar → nog meer calciumconc
tetanische stimulatie = heel snelle stimulatie → daalt de calciumconc niet meer → maximale krachtontwikkeling
regulatie contractiekracht
aantal gerecruteerde motoreenheden
freq ontlading/ neuron
aantal vezels per motoreenheid
type vezels
diversiteit skeletspiervezel
Type Iia en Iib zijn snelle spieren -> snemmere contractie-relaxatie cyclus, sterker maar spier kan het maar kort volhoude
I zijn de marathonspieren, die kunnen lang uithouden
Verschillende myosinehoofdjes tussen de type
De calcium sensoren zijn ook verschillend, eigenschappen sercapomp, aanwezigheid van calsequestrine (buffer calcium) -> andere genetische identiteit -> andere functionele eigenschappen
En dan nog helemaal anders bij hartspiercellen en gladde spiercellen
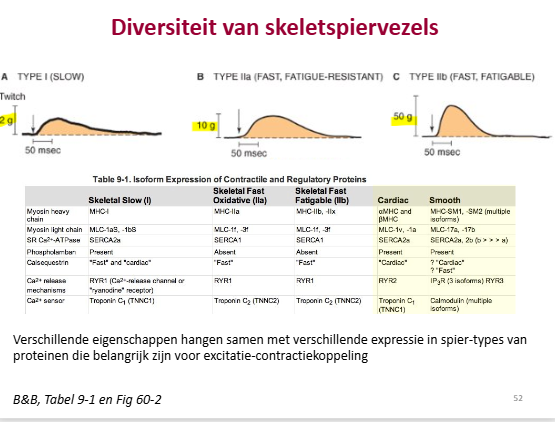
3 types skeletspieren
IIb: hele korte tijd maximale krachtontwikkeling

isometrisch
lengte constant, krachtontwikkeling varieert
isotoon
kracht constant (0 belasting), spier kort in (lengte varieert)
auxotoon
lengte en kracht variëren tezamen, zoals in hartspier
afterload contractie
eerst kracht, dan inkorten (een gewicht opheffen): isometrische fase opgevolgd door isotone fase
krachtontwikkeling
tense, stress, force
Newton N, gram g, Dyne dyn
lengte van de spier is in cm
contractie
spier trekt samen met een bep snelheid en een bep kracht
passieve krachtontwikkeling
weerstand tegen uitrekking door een niet-geprikkelde spier.
Bedenk dat er in deze toestand geen interactie is tussen actine en myosine, de dwarsbrugcyclus is NIET actief.
Het zijn nu proteines zoals Titine die het sarcomeer samen houden.
Hoe meer de spier uitgerekt is, hoe groter de weerstand in de spier tegen verdere uitrekking, meer spanning -> titine (die uiteindes sarcomeer tezamen houdt)
actieve krachtontwikkeling
Bij beginlengtewaarde wordt de spier maximaal gestimuleerd -> alle myosinehoofdjes actief, maar we laten spier niet inkorten (isometrisch)-> isometrisch maximum = potentieel spier om maximaal kracht te ontwikkelen afh van de beginlengtewaarde
Als je al ver of licht uitgerekte spier hebt, ga je weinig nieuwe krachtontwikkeling krijgen bij maximale stimulatie: verschil zwarte en witte bolletjes is de bijdrage van de dwarsboogcyclus (actieve krachtontwikkeling, door de tetanische prikkeling) -> klokvormig (geen bijdrage bij korte of lange beginlengte)

preload
initial stretching of the cardiac myocytes (muscle cells) prior to contraction.
afterload
Afterload is the force or load against which the heart has to contract to eject the blood
snelheid-kracht relatie
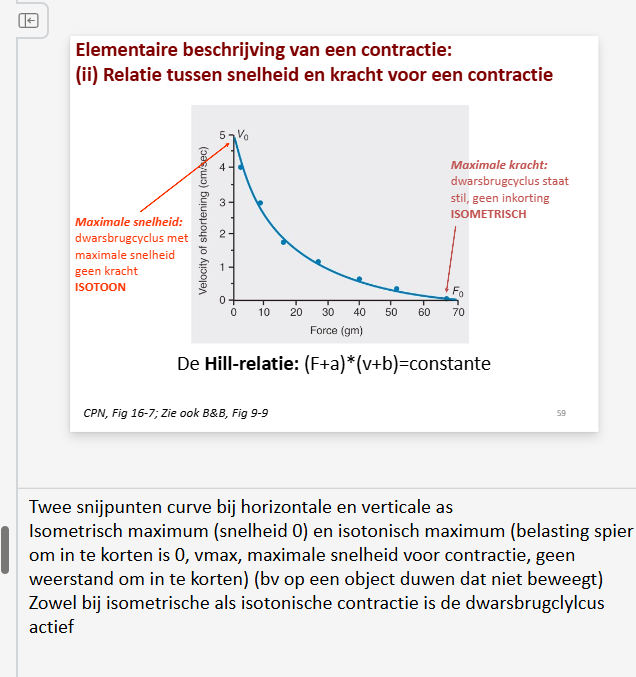
actine-myosine koppeling
Bij kleine belasting -> veel myosinehoofdjes die gemakkelijk contraheren -> snelle contractie, snelle doorgang van de dwarsbrugcyclus
Bij grote belasting -> trage contractie want heel veel mysoine nodig om het vast te houden en weinig nog beschikbaar voor verdere samentrekking van de spier -> meeste hoofdjes blijven gebonden gewonden -> minder ATP verbruik want minder snel

dwarsbrugcyclus hartspier
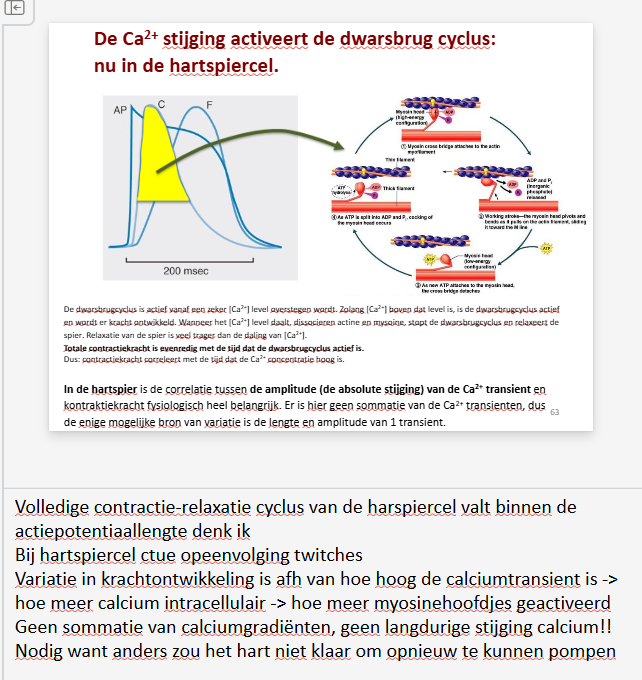
hart: lengte-spannings diagramma

Frank-Starling effect
→ intrinsiek mechanisme, van hartspier zelf
hoe groter de basislengte (aka meer bloedvulling), hoe groter de maximale contractiekracht (NIET BIJ SKELETSPIER)
→ verschil in isometrisch maximum: grotere preload → hoger max
→ variatie hillcurve
→ vroegere verklaring: stretch-geactiveerde ionenkamer

relatie snelheid, krachtontwikkeling, pre-load en afterload
Snelheid van contractie is groter bij kleinere afterload, net zoals bij de skeletspier.
Bedenk: variatie in de pre-load is fysiologisch belangrijk (het Frank-Starling effect). Dat is niet zo bij de skeletspier.
Voor de hartspier geldt: binnen het fysiologische werkingsbereik is bij een grotere pre-load krachtontwikkeling én snelheid van contractie groter!
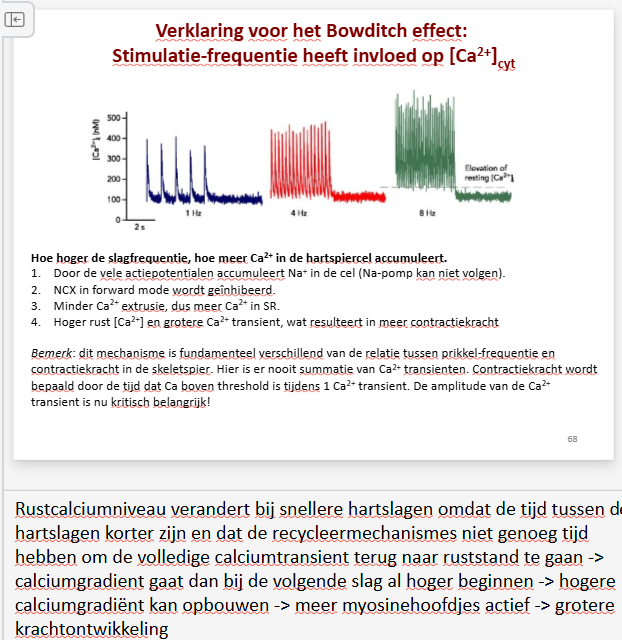
Bowditch effect
variatie prikkelfreq
force frequency relation, helemaal anders dan in de skeletspier!!
Krachtiger samentrekken voor snellere hartslagen want dan kan je ook sneller terug klaar zijn om terug te contraheren.
Duurt wel ff om op- en af te bouwen, echt wel een paar hartslagen nodig telkens voor de contractiekracht voldoende is aangepast → Treppe-effect/ Staircase effect
gladde spier
Ook in gladde spieren is het sliding-filament mechanisme de basis van de contractie, en dus geldt ook hier een klokvormige relatie tussen krachtontwikkeling en de begin-lengte van de spier.
Hoeveel myosine zijn er actief dus gefosforyleerd is de snelheidsbepaler: Hill-curve verplaatst bij vmax en isometrisch maximum afh van de aantal actieve, dus gefosforyleerde myosinehoofdjes -> bepaalt dus snelheid en kracht
Veel trager dan skeletspiercellen en hartspiercellen
Relatie tussen krachtontwikkeling en snelheid gelijkaardig tussen skeletspiercellen en gladdespiercellen, maar heel andere max