prednáška 3- aminokyseliny, peptidy a proteíny I
 Call Kai
 Learn
 Practice Test
 Spaced Repetition
 Match
 Flashcards
 Knowt Play
1/69

Earn XP
Description and Tags
1. Aminokyseliny 2. Peptidy a proteiny 3. Primární struktura proteinů 4. Sekundární struktura proteinů
70 Terms
Aký počet AMK sa nachádza v každom živom organizme?
20
Aké spoločné štrukturálne rysy majú všetky aminokyseliny?
alfa uhlík a štyry substituenty
karboxxylová skupina, aminová skupina, atóm vodíka a postranná skupina R
alfa uhlík je chirálnym centrom
tvorí tetraéder
Aké stereoisoméry sú aminokyselinové zbytky v proteínoch?
L-stereoisoméry
Do akých skupín (klasifikácií) vieme rozdeliť AMK na základe R-skupiny?
nepolárne, alifatické (7)
aromatické (3)
polárne, nenabité (5)
kladne nabité (3)
záporne nabité (2)
Ktoré AMK majú nepolárne, alifatické skupiny R + vlastnosť ?
hydrofóbny efekt stabilizuje štruktúru bielkovín
glycín G
alanín A
prolín P
valín V
leucín L
isoleucín I
methionín M
Ktoré AMK majú aromatické R-skupiny + vlastnosti?
absorbujú UV žiarenie pri vlnovej dĺžke 270-280nm
môžu prispievať k hydrofóbnemu efektu
fenylalanín F
tyrosín Y
tryptofán W
Ktoré AMK majú polárne, nenabité R-skupiny + vlastnosti?
môžu tvoriť vodíkové väzby
cysteín môže tvoriť disulfidové väzby
serín S
threonín T
cysteín C
asparagín N
glutamín Q
Aké funkcie majú neštandartné AMK?
modifikácie bežných AMK
modifikované po syntéze bielkovín (napr 4-hydroxyprolín, ktorý sa vyskytuje v kolagéne)
behom syntézy bielkovín (napr pyrrolysin, ktorý prispieva k biosyntéze metánu)
dočasne modifikované za účelom zmeny funkcie bielkovín (napr fosforylácia)
voľné metabolity (napr ornitín, medziprodukt v biosyntéze arginínu)
selenocysteín, pyrrolysín, 4-hydroxyprolín, gama-karboxyglutamát
Ktoré AMK majú kladne a záporne nabité skupiny R + vlastnosti?
majú pri pH 7 významný kladný/záporný náboj
lysín K
arginín R
histidín H
aspartát D
glutamát E
Čo vzniká pri neutrálnom pH?
zwitterion
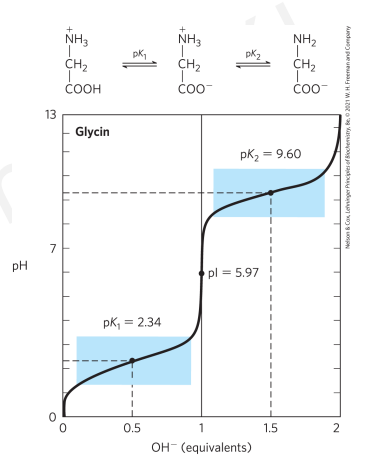
Čo všetko vieme povedať o titrácii aminokyselín?
katión ⇌ zwitterion ⇌ anion
-COOH má kyslé pKa1
-NH3+ má zásadité pKa2
pH, pri ktorom je celkový elektrický náboj nulový, je izoelektrický bod (pI)
alfa-karboxylová skupina je kyslejšia než u karboxylových kyselín
alfa-aminová skupina je menej zásaditá než u amínov
Čo robia pufry?
zabraňujú zmenám pH v blízkosti pKa
Čo vieme povedať o glycíne a jeho pufrovacích oblastiach?
s centrom okolo hodnoty pKa alfa-karboxylovej skupiny (pK1 = 2,34)
s centrom okolo pKaalfa-aminoskupiny (pK2 = 9,6)

Ako vypočítame izoelektrický bod u aminokyselín bez ionizovateľných postranných reťazcov?
pH=pI → celkový náboj je nulový (AMK je vo vode najmenej rozpustná, v elektrickom poli nemigruje)
pH > pI → celkový záporný náboj
pH < pI → celkový kladný náboj

Aké vlastnosti majú ionizovateľné postranné reťazce AMK?
majú pKA hodnotu
pôsobia ako pufry
ovplyvňujú pI aminokyselín
vieme titrovať (titračná krivka má 3 ionizačné stupne)
Ako sa vypočíta pI pri troch hodnotách pK?
zoradíme jednotlivé hodnoty pK
sledujeme, ako sa pri postupnej deprotonácii mení celkový náboj
nájdeme elektroneutrálnu formu a spriemerujeme dve hodnoty pK, medzi ktorými sa táto forma nachádza
Aká je peptidová väzba, ako vzniká a ako sa rozpadá?
je kovalentná
vzniká kondenzáciou
rozpadá sa hydrolýzou
Aké typy proteínov poznáme?
dipeptid → 2 AMK, 1 peptidová väzba
tripeptid → 3AMK, 2 peptidové väzby
oligopeptid→ niekoľko AMK
polypeptid → mnoho AMK, molekulová hmotnosť < 10kDa
proteín → tisíce AMK, molekulová hmotnosť >10kDa
Od akého konca začína číslovanie (a pomenovanie) AMK?
začína od aminoterminálneho zbytku (N-koniec )
Čo všetko sa dá v peptidoch ionizovať?
jedna voľná alfa-aminová skupina
jedna voľná alfa-karboxylová skupina
niekoľko skupín R
Čo je to multipodjednotkový proteín?
2 a viacej polypeptidov spojených nekovalentne
Aký je to oligomerný proteín?
aspoň 2 identické podjednotky
identické jednotky - protoméry
Ako vieme odhadnúť počet aminokyselinových zbytkov?
počet zbytkov = molekulová hmotnosť/110
priemerná molekulová hmotnosť AMK = ~128
molekula vody odstránená pri tvorbe peptidovej väzby 128-18 = 110
Aké sú to konjugované proteíny a uveďte príklady?
sú to proteíny, ktoré obsahujú trvalo viazané chemické zložky a neaminokyselinovú časť, nazývame prostetická skupina

Do akých 4 úrovní vieme rozdeliť štruktúru proteínov?
primárna štruktúra → kovalentné väzby spojujúce AMK zbytky v polypeptidovom reťazci
sekundárna štruktúra → opakujúce sa štrukturálne vzory
terciárna štruktúra → 3D skladanie polypeptidu
kvartérna štruktúra → 2 a viacej polypeptidových podjednotiek
Čo určuje sekvencia AMK?
určuje 3D štruktúra, ktorá určuje funkciu
Väčšina ľudských proteínov sú polymorfné, čo to znamená?
majú varianty AMK sekvencií
Čo je to Edmanova degradácia?
klasická metóda sekvenovania AMK (od N-konca)
Ako sa študujú štruktúry proteínov pomocou značenia?
FDNB, dansylchlorid, dabsylchlorid = značenie aminového konca alfa-aminoskupiny a ε-aminoskupiny lysínových zbytkov

Ako vieme študovať štruktúru pomocou rozbitia väzby?
oxidácia kyselinou permravenčou alebo redukcia dithiothreitolem = rozbitie disulfidovej väzby, denaturuje proteíny
Čo sú to proteázy?
enzýmy, ktoré katalyzujú hydrolýzu peptidových väzieb
Aké proteázy poznáme a aké majú miesta štiepenia?

Ako vieme všeobecne charakterizovať hmotnostnú spektrometriu?
meria molekulovú hmotnosť s vysokou presnosťou
umožňuje sekvenovať krátke AMK sekvencie (20 až 30 AMK zbytkov)
dokáže zmapovať celý bunkový proteome
Aké sú obecné kroky hmotnostnej spektrometrie?
ionizácia analytu vo vákuu
uvedenie nabitých molekúl do elektrického a/alebo magnetického poľa
nabité molekuly sa pohybujp v závislosti na pomeru hmotnosti k náboju, m/z
odvodenie hmotnosti (m) analyzovanej látky
Čo všetko vieme povedať o MALDI MS?
Matrix-Assisted Laser Desorption/Ionization Mass Spectrometry
proteíny umiestnenie v matrici pohlcujúce energiu svetla
impulz laserového svetla ionizuje a desorbuje ich z matrice
matrica obsahuje kryštalizované molekuly (kyselina sinapová, alfa-kyano-4-hydroxyškoricová alebo 2,5-dihydroxybenzoová)

Čo všetko vieme povedať o ESI MS?
Elektrospray ionization mass spectrometry
makromolekuly sú priamo premenené z kvapalnej do plynnej fázy
Aké metódy analýzy pomeru m/z poznáme?
doba letu (Time of Flight, TOF)
zrýchlenie iónov v elektrickom poli závisí na m/z
orbitrap
zachycuje ióny na obežnej dráhe, trajektória elektrónov je prevedená na m/z
Aká je to tandemová MS?
dva hmotnostné filtre v tandemu
Ako vieme získavať informácie pomocou tandemovej MS?
prvá = triedi peptidy vzniknuté štiepením, druhá = mieria m/z pomery nabitých fragmentov
LC-MS/MS = kvapalinová chromatografia - tandemová MS
chromatografia komplexnej zmesi peptidov
rozdelené peptidy, ktoré sú postupne identifikované MS
identifikácia proteínov a ich množstva
Aké informácie môže poskytnúť sekvencia AMK?
3D štruktúra
funkcia
bunková lokalizácia
evolúcia
Čo ukazuje konsenzuálna sekvencia?
odráža najčastejšiu AMK na každej pozícii
Čo je to horizontálny prenos génov?
prenos génu alebo skupiny génov z jedného organizmu do druhého - neposkytuje vhodné kandidáti na štúdium evolúcie
Čo sú to homológy a ako ich delíme?
sú to homológne proteíny - členovia proteínových rodín
paralógy - homológy v rámci rovnakého druhu
ortológy - homológy u rôznych druhov
identifikovanie porovnaním proteínových sekvencií s databázou
Čím sú štruktúry proteínov stabilizované?
nekovalentnými interakciami a silami
Čo je to konformácia?
termodynamicky najstabilnejšia, s najnižšou voľnou energiou (G)
Aké proteíny sú natívne?
proteíny v akejkoľvek funkčnej, zloženej konformácii
Ako vieme vysvetliť stabilitu proteínov?
tendencia proteínu udržovať natívnu konformáciu
Čo vieme povedať o van der Waalsových interakciách u konformácie proteínov?
dipól-dipólové interakcie na krátke vzdialenosti
jednotlivé interakcie prispievajú k celkovej stabilite proteínov len málo
vysoký počet interakcií môže mať podstatný vplyv
Čo je to solvatačná vrstva?
vysoko štruktúrovaná vrstva H2O okolo hydrofóbnej molekuly
zmenšuje sa, keď sa zhlukujú nepolárne skupiny
tento pokles spôsobuje priaznivý nárast čistej entropie
Čo robia opakujúce sa sekundárne štruktúry?
optimalizujú vodíkové väzby
Čo vieme povedať o interakcii skupín s opačným nábojom?
iónový pár = soľný mostík
pevnosť sa zvyšuje v prostredí s nižšou dielektrickou konštantou ε
polárne vodné rozpúšťadlo ε ~ 80
nepolárne vnútro proteínu ε ~4
Prečo nemôžu peptidové väzby rotovať?
6 atómov v peptidovej skupine leží v jednej rovine
čiastočný charakter dvojnej väzby peptidovej väzby C-N bráni rotácii a obmedzuje rozsah konformácie
Aké tri dihedrálne uhly poznáme u peptidov?
φ (phi) - v rozmedzí od -180 do +180 stupňov
ψ (psi) - v rozmedzí od -180 do +180 stupňov
ω (omega) - +- 180 stupňov pre trans
Prečo sú niektoré konformácie zakázané?
kvôli stérickej interferencii = φ a ψ nemôžu byť obidve 0 stupňov
Čo popisuje sekundárna štruktúra proteínu?
popisuje priestorové usporiadanie atómu hlavného reťazca v úseku polypeptidového reťazca
Ako vyzerajú torzné uhly v pravidelnej sekundárnej štruktúre?
φ a ψ zostávajú v celom segmente rovnaké
Aké typy sekundárnych štruktúr poznáme?
alfa šroubovice
β konformace
β ohyby
náhodné smyčky
Ako vieme charakterizovať alfa šroubovici?
najjednoduchšie usporiadanie s maximálnym počtom vodíkových väzieb
hlavný reťazec je ovinutý okolo pomyselnej pozdĺžnej osi
R-skupina vyčnieva z hlavného reťazca
každá otočka = 3,6AMK, ∼5,4 Å
zvýšený obsah Ala, Leu, Glu, Lys, Met
Čo všetko vieme povedať o Intrahelikálných vodíkových väzbách?
medzi atómom vodíka viazaným na elektronegatívnym atóm dusíka zbytku n a elektronegatívnym karbonylovým atómom kyslíka zbytku n+4
zaisťuje značnú stabilitu
amfipatická šroubovica - hydrofóbne aminokyseliny v pozíciách n, n+3 alebo n+4

Ako a prečo sekvencia ovplyvňuje stabilitu alfa šroubovice?
AMK zbytky majú prirodzenú tendenciu tvoriť α šroubovicu
interakcie medzi reťazcami R, ktoré sú od seba vzdialené 3-4 zbytky, môžu stabilizovať alebo destabilizovať α šroubovicu
náboj, veľkosť a tvar reťazcov R môže destabilizovať
tvorba iónových párov a hydrofóbny efekt môžu stabilizovať
Čo spôsobuje prolín v α šroubovici a prečo?
spôsobuje destabilizujúci zlom v šroubovici
atóm dusíka je súčasťou rigidného pyrolového kruhu
rotácia okolo N-Cα nie je možná
Ako sa glycín správa v α šroubovici?
má vysokú konformačnú flexibilitu, zaujíma špirálovú štruktúru
Ako zbytky v blízkosti konca α šroubovice ovplyvňujú stabilitu?
malé elektrické dipóly v každej peptidovej väzbe sa vyrovnávajú prostredníctvom vodíkových väzieb
záporne nabité AMK sa často vyskytujú v blízkosti NH3+konca
kladne nabité AMK sa často vyskytujú v blízkosti COO- konca
Ako vieme charakterizovať β konformáciu?
hlavná kostrč sa rozprestiera do cik-cak tvaru
Aké dva základné typy β konformácie poznáme?
β-reťazec = jediný proteínový segment
β-list= niekoľko reťazcov v β konformácii vedľa seba
Ako vieme popísať antiparalélny a paralélny β list?
antiparalélny - opačná orientácia, ktorá sa vyskytuje častejšia
paralelný - rovnaká orientácia
medzi atómami kostrče susedných reťazcov sa tvoria vodíkové väzby
Ako vieme opísať β ohyby?
bežné v proteínoch
spájajú C-konce dvoch susedných segmentov antiparalelného β-listu
180 stupňov otočenie
zahrňuje 4 zbytky
medzi prvým a štvrtým zbytkom sa vytvára vodíková väzba
často sa v β zlomoch vyskytuje Gly (zbytok 2) a Pro (zbytok 3)
Aké charakteristické torzné uhly majú sekundárne štruktúry?
torzné uhly φ(phi) a ψ (psi), ktoré sú spojené s každým zbytkom, popisujú sekundárnu štruktúru
Čo sú to Ramachandranove grafy?
zobrazujú všetky φ a ψ uhly
overujú možnosti trojrozmerných štruktúr proteínov

Ako vieme analyzovať sekundárne štruktúry?
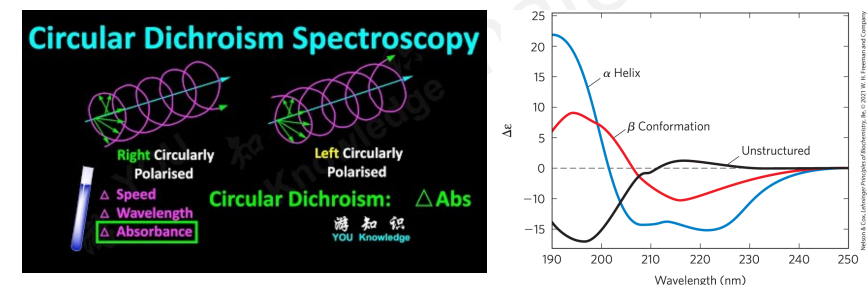
spektroskopia cirkulárneho dichroismu (CD)
meria elipticitu - rozidiely v molárnej absorpcii ľavotočivého a pravotočivého kruhovo polarizovateľného svetla
chromofor = peptidová väzba