6. INTEGRATIE (copy)
Doel van dit hoofdstuk is voornamelijk om zaken uit de cursus in zijn geheel te zien adhv een voorbeeld, het is niet de bedoeling om volgende voorbeelden tot in de detail te kennen, maar wel om inzicht te krijgen in de gezien leerstof. Op examen zal hoogstwaarschijnlijk ook een toepassing gegeven worden waarbij we deze zelf moeten linken aan de geziene leerstof.
BLOEDSTOLLING
Bloedstolling is een delicaat evenwicht. Het moet snel gaan om bloedverlies te stoppen, maar lokaal blijven om de rest van de bloedsomloop niet te blokkeren.
snelheid (~amplificatie); één geactiveerd enzym activeert honderden volgende enzymen, hierdoor leidt een klein beginsignaal razendsnel tot een enorme respons (de "waterval" of cascade)
lokalisatie (~oppervlaktebinding); om te voorkomen dat je bloed overal stolt (trombose), binden de stollingsfactoren enkel op geactiveerde bloedplaatjes (fosfatidylserine naar buiten gericht) op de plaats van de wonde
ALGEMEEN
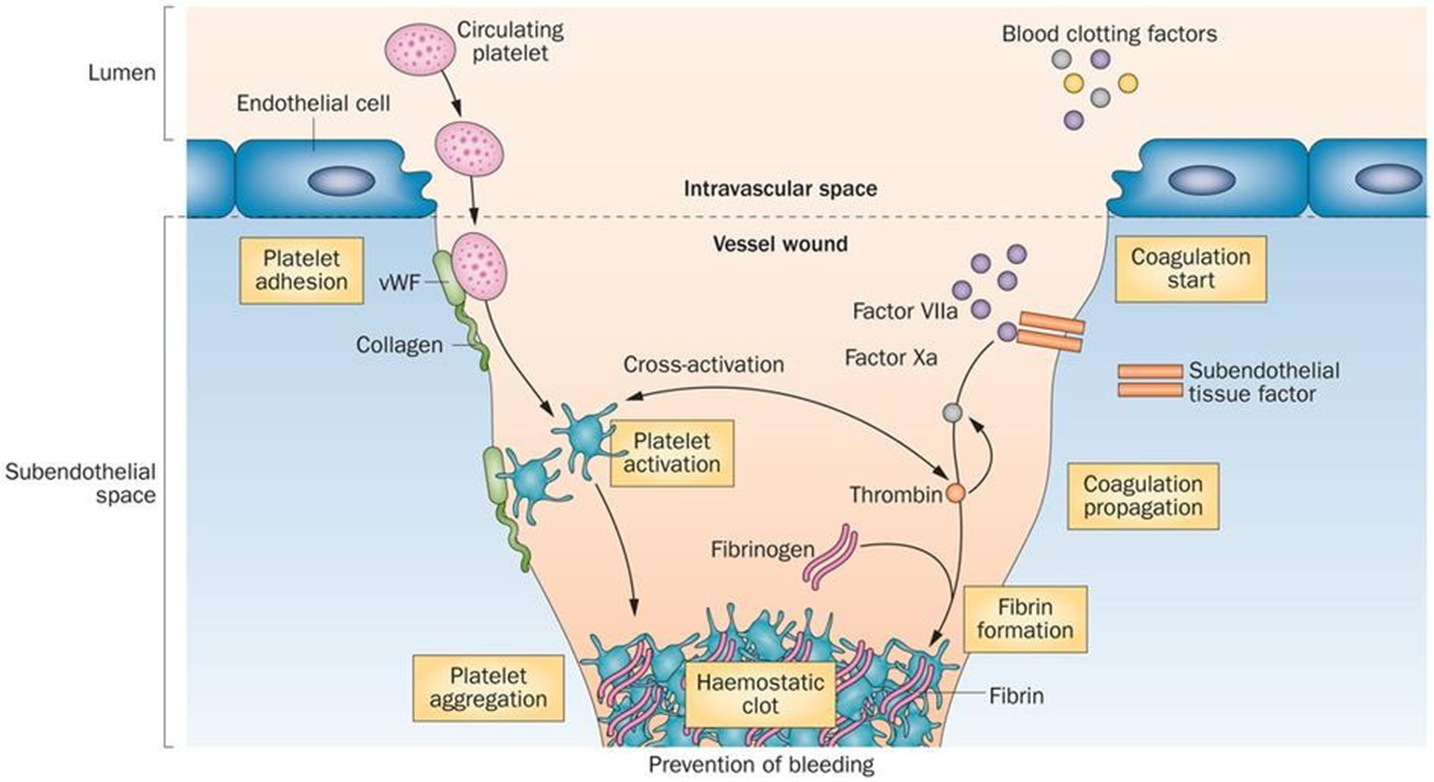
STOLLINGSFACTOREN
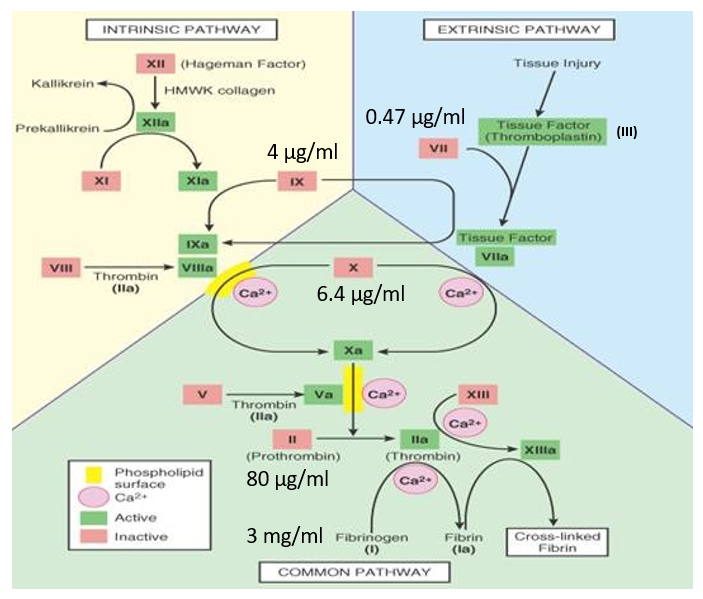
extrinsieke én intrinsieke pathway → gemeenschappelijke pathway
ene enzyme vormt substraat voor andere enzyme
continue amplificatie; conc. nemen steeds toe
stollingsfactoren = enzymen, nl proteasen (meestal serineproteasen); kunnen vele substraten omzetten met bepaalde specificiteit
H13 — thrombine, X, XI, XII = serineproteasen
H12 — trypsine, chymotrypsine, elastase = serineproteasen
merk op; niet enkel eiwitten, ook lipiden en Ca spelen rol!!
FIBRINEKLONTER
Het doel van de hele cascade is het omzetten van een oplosbaar eiwit (fibrinogeen) naar een onoplosbaar netwerk (fibrineklonter).
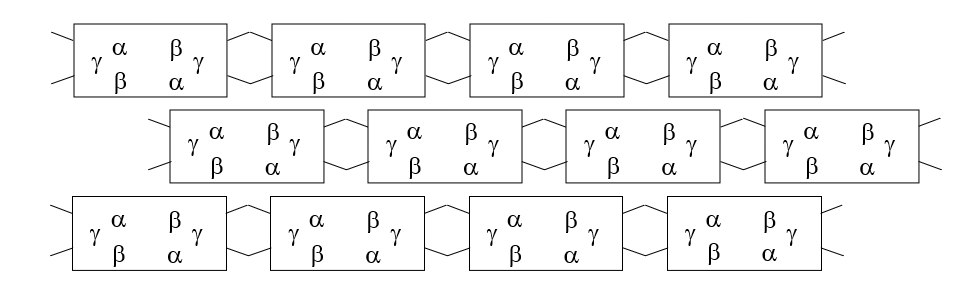
fibrinogeen
heterohexameer (α2β2γ2)
thrombine
zorgt voor proteolytische knipping (ptm) fibrinogeen tot fibrine-monomeren
fibrine
monomeren polymeriseren spontaan tot draden
stabilisatie door transglutaminase (ptm)
→ cov bindingen = fibrine crosslinks
→ harde korst
LOKALISATIE
Stolling mag alleen plaatsvinden waar een beschadiging zit; stollingsfactoren moeten naar de juiste plaats, het oppervlak van geactiveerde bloedplaatjes, worden geleid.
STOLLINGSFACTOR
Gla-domein bevat γ-gecarboxyleerde glutamaatresiduen
extra negatieve lading → sterk negatief oppervlak
opm; deze ptm gebeurt in lever, vitamine K-afhankelijk
BLOEDPLAATJES
in rust; fosfatidylserine (PS) aan binnenzijde
bij activatie (schade); flippen naar buiten → celoppervlak negatief geladen
Ca²⁺-BRUG
positief → wordt aangetrokken door de negatieve Gla-residuen
complex associeert met negatieve oppervlak van bloedplaatjes
gevolg; bloedstolling gebeurt lokaal, op de plaats van schade
PATHOLOGIE
hemofilie A → tekort factor VIII → verminderde amplificatie → trage stolling
hemofilie B → tekort factor IX → verminderde amplificatie → trage stolling
vitamine K deficiëntie → onvoldoende γ-carboxylering, dus minder Gla-domeinen → Ca bindt niet meer op bloedplaatjes → geen lokalisatie op het membraan → geen effectieve stolling
PENICILLINE
Veel cellulaire processen kunnen worden beïnvloed door antibiotica, maar één van de belangrijkste en meest selectieve aangrijpingspunten is de bacteriële celwandsynthese.
Waarom selectief? Menselijke cellen hebben geen celwand (en geen peptidoglycaan), dus het medicijn valt de patiënt niet aan.
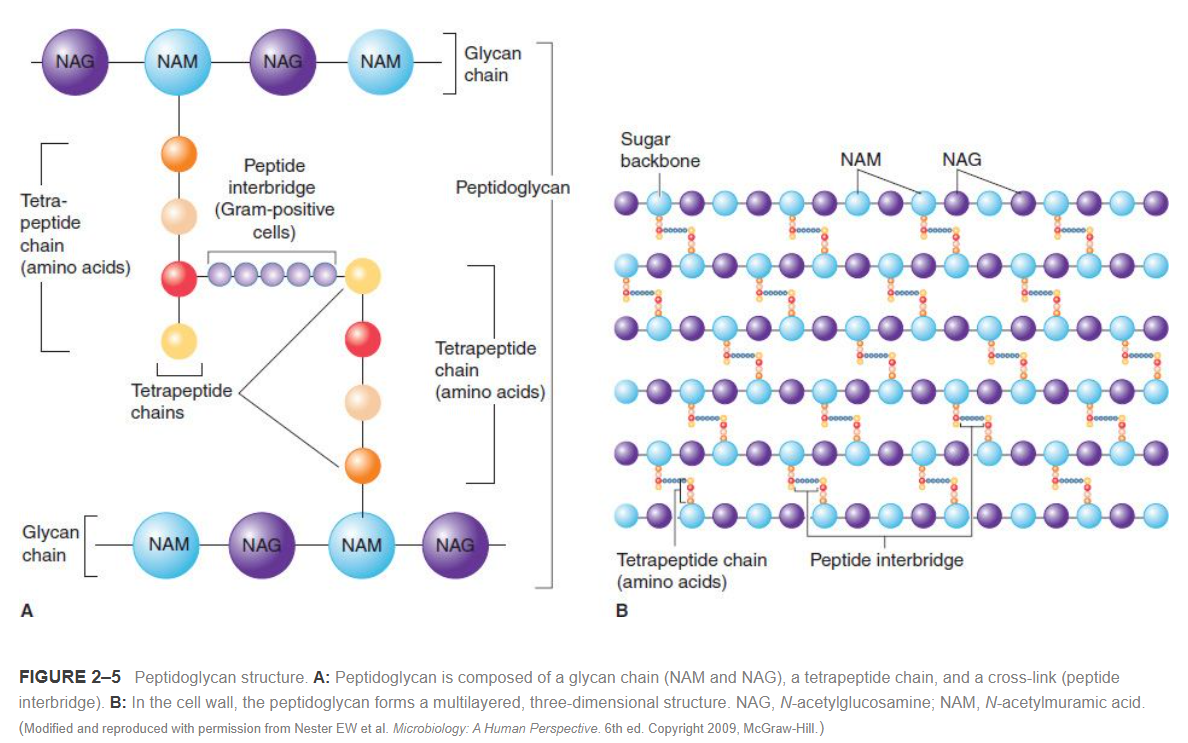
Bij zowel Gram-positieve als Gram-negatieve bacteriën bestaat de celwand uit peptidoglycaan (NAM-NAG = glycaanketen = polysacharaideketen), een stevig polymeer dat zorgt voor;
vorm
bescherming tegen osmose
mechanische stabiliteit
Aan elke NAM hangt een pentapeptide (L-Ala – D-Gln – L-Lys – D-Ala – D-Ala). Om een netwerk te krijgen, moeten de suikerketens aan elkaar vastgemaakt worden;
Hoe? verbinding wordt gemaakt tussen twee pentapeptiden
Wie met wie? 3e aminozuur (L-Lys) van de ene keten bindt aan het 4e aminozuur (D-Ala) van de andere keten
Bij deze reactie wordt de 5e D-Ala afgesplitst (energiebron)
opm; bij Gram-positieve bacteriën is de crosslink tussen L-Lys en D-Ala niet direct, maar zit er een brug tussen van 5 glycines: de penta-glycinebrug
WERKING
STAP 1 — penicilline lijkt op het D-Ala-D-Ala uiteinde
tijdens de opbouw van peptidoglycaan worden ketens aan elkaar gekoppeld door transpeptidase-enzymen (penicillin-binding proteins = PBPs)
katalytisch centrum van dit enzym bevat;
Serine (Ser) → nucleofiel
Lysine (Lys) → helpt Ser deprotoneren
deze enzymen herkennen normaal het substraat D-Ala-D-Ala, maar penicilline heeft een β-lactamring die sterk lijkt op dit uiteinde
STAP 2 — penicilline bindt irreversibel aan transpeptidase (PBP)
Ser valt de β-lactamring aan → ring opent
het enzym vormt een irreversibel covalent complex met penicilline
→ blokkeert het enzym permanent
→ crosslinking van peptidoglycaan valt stil
STAP 3 — gevolg; zwakke celwand
nieuwe celwandstructuur kan niet worden afgewerkt, maar bacterie blijft wel peptidoglycaan afbreken → netto verzwakt de wand
door osmose zwelt de bacterie op → cel barst → bactericide werking
SAMENGEVAT
penicilline remt celwandsynthese (= aaneenschakeling peptidoglycanen) door irreversibele inhibitie van transpeptidasen
structuur van de β-lactamring lijkt op D-Ala–D-Ala → zelfmoordinhibitie
geen crosslinks → zwakke celwand → osmolyse
PENTAPEPTIDE VS TETRAPEPTIDE
In de cursus wordt gesproken over zowel tetra- als pentapeptides; aangezien penicilline enkel inwerkt op D-Ala-D-Ala, is die dus ook enkel maar werkzaam op de pentapeptidevorm.
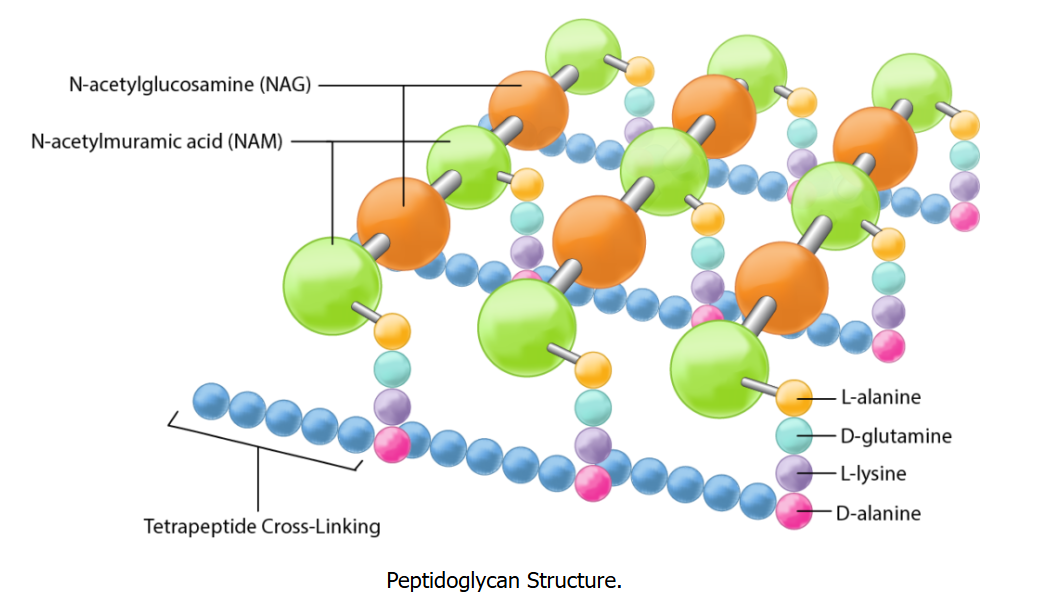
Wanneer de bacterie de bouwstenen voor de celwand maakt (in het cytoplasma) en ze naar buiten transporteert, zijn het pentapeptiden; uiteinde is D-Ala – D-Ala. Dat 5e aminozuur, de laatste D-Ala, is cruciaal: de binding tussen de 4e en 5e D-Ala bevat de energie die nodig is voor de reactie om glycaanketens = polypeptideketens van NAM-NAG te kunnen verbinden.
Het enzym dat dit proces uitvoert, is een penicilline-bindend proteïne (PBP), wat functioneert als een transpeptidase.
enzym knipt de laatste D-Ala eraf; 5e D-Ala wordt afgesplitst en komt vrij
energie van de verbroken binding gaat niet verloren, maar wordt tijdelijk opgeslagen in een binding tussen het enzym en het 4e aminozuur (het acyl-enzym intermediair)
De vrije aminogroep van de "buurman" (het 3e aminozuur van een naburige keten, vaak L-Lys) valt de binding tussen het enzym en de 4e D-Ala aan.
Het enzym laat los en de twee ketens zitten aan elkaar vast.

In de uiteindelijke, stevige celwandstructuur (peptidoglycaan) hebben de ketens die een crosslink hebben gevormd nog maar 4 aminozuren, uiteinde is nu slechts één D-Ala die;
bij Gram- direct vastzit aan 3e aminozuur v/d buurman
bij Gram+ via pentaglycine vastzit aan 3e aminozuur v/d buurman
ACTINESKELET
Actine is één van de drie celskeletelementen (naast microtubuli en intermediaire filamenten);
functies; vormverandering van de cel en motiliteit (beweging)
locatie;
spiercellen: rigide, stabiele structuur (voor contractie)
niet-spiercellen: dynamisch (voor beweging; vb. uitzaaiing tumoren)
BOUWSTEEN: G-Actine
Het begint allemaal met één eiwit: het actine-monomeer
structuur: 4 domeinen;
domein 1 & 3: vergelijkbare opbouw
domein 2 & 4: verschillend
groeve: tussen de domeinen zit een plek voor ATP en Mg²⁺. Zonder deze binding is het eiwit instabiel.
opbouw filament (F-Actine)
monomeren binden "kop-aan-staart" (niet-covalent); helixvorming
→ polariteit (+einde én -einde)
DYNAMISCH PROCES: polymerisatie-cyclus
Het filament is niet statisch. Het groeit en krimpt continu. Dit kost energie (ATP).

nucleatie: vormen van een kleine kern van monomeren; trage stap
opm; actinebindende eiwitten helpen hier vaak bij
elongatie: filament wordt langer
steady state: evenwicht bereikt bij de kritische monomeerconcentratie (cmc)
KINETISCHE POLARITEIT
Omdat het een ATP-ase is (ATP wordt gehydrolyseerd naar ADP in het filament), gedragen de uiteinden zich anders
Eigenschap | Plus-einde (+) | Min-einde (-) |
Molecule | rijk aan ATP-actine | rijk aan ADP-actine |
Snelheid | snelgroeiend | traaggroeiend |
cmc | laag (0.1 - 0.2 μM) | hoog (1 - 2 μM) |
Gevolg | monomeren binden hier makkelijk | monomeren vallen hier makkelijker af |

Cruciaal mechanisme: "Treadmilling"
Als de concentratie vrij actine precies tussen de twee drempelwaardes in zit (0.1μM < [Actine] < 1μM), gebeurt er iets bijzonders;
filament groeit aan de plus-kant (want concentratie > 0.1)
filament krimpt aan de min-kant (want concentratie < 1.0)
resultaat: filament verplaatst zich door de ruimte (motiliteit) zonder van netto lengte te veranderen
REGULATIE: actinebindende eiwitten (ABP)
De cel kan niet wachten op spontane polymerisatie. ABPs zijn de "managers" van het actine. Ze worden zelf gereguleerd door fosforylering of PIP2.
Wat doen ze?
nucleatie bevorderen: De trage start overslaan.
stabiliseren: Voorkomen dat het uit elkaar valt.
crosslinken: Netwerken maken.
afbraak/severing: Filament knippen (vb. Cofilin; breekt af, wordt geregeld door (de)fosforylatie en PIP2).
VERKORTEN V/D FILAMENTEN: gelsoline & cofiline
1. Gelsoline: De "Snoeier" en "Dop"
Gelsoline is een eiwit dat actinefilamenten doormidden snijdt en vervolgens aan het uiteinde blijft zitten.
Severing (Knippen): Gelsoline bindt aan de zijkant van een actinefilament. Het verandert de conformatie van de actine-subunits zodanig dat de binding tussen de subunits verbreekt. De streng wordt dus letterlijk doormidden gehakt.
Capping (Afdoppen): Na het knippen blijft gelsoline stevig gebonden aan het plus-einde (barbed end) van het nieuwe fragment. Dit "dopje" voorkomt dat er nieuwe actine-monomeren (G-actine) worden toegevoegd of dat de streng daar afreekt.
Regulatie: Gelsoline is sterk afhankelijk van calcium (). Bij een stijging van de calciumconcentratie in de cel (bijvoorbeeld bij signalering) wordt gelsoline geactiveerd om het cytoskelet lokaal vloeibaarder te maken (de overgang van 'gel' naar 'sol', vandaar de naam).
2. Cofiline: De "Recycler"
Cofiline (ook bekend als Actin Depolymerizing Factor of ADF) is essentieel voor de snelle vernieuwing van actine in de cel.
Severing door tordering: Cofiline bindt bij voorkeur aan actine waarin het gebonden ATP al is gehydrolyseerd naar ADP (dit is meestal "ouder" actine in een filament). Door te binden, draait (torst) cofiline het filament een beetje. Deze mechanische spanning zorgt ervoor dat het filament breekt.
Depolymerisatie: In tegenstelling tot gelsoline, bevordert cofiline juist het uiteenvallen van het filament vanaf het min-einde (pointed end). Hierdoor komen er weer losse G-actine-monomeren beschikbaar voor de cel.
Functie: Het zorgt voor de zogenaamde treadmilling: het constant afbreken van oude filamenten zodat er aan de voorkant van de cel (bijvoorbeeld bij beweging) weer nieuwe gevormd kunnen worden.
COMPETITIEVE INTERACTIE: profiline vs. thymosine β4
In de cel is er een grote voorraad actine-monomeren. Wie wint de competitie om deze monomeren?
Eigenschap | Profiline (De Bouwer) | Thymosine β4 (De Remmer) |
Functie | "shuttle": brengt actine naar het + einde, maakt polymerisatie efficiënter | "sequestratie": bindt actine en houdt het vast (sterische hinder), verhindert groei |
Binding | bindt subdomein 1 & 3 | bindt subdomein 1 & 3, én maakt contact met 2 & 4 |
KD | 0.5 μM (hoge affiniteit) | 5 μM (lagere affiniteit) |
Winnaar? | profiline wint door hogere affiniteit |
in een rustende cel zijn de concentraties van beide eiwitten ongeveer gelijk
in een geactiveerde cel is er vaak méér Thymosine, maar omdat Profiline een veel betere binding (lagere KD) heeft, trekt Profiline de monomeren naar zich toe en levert ze af aan het filament voor groei
uitzondering: als het + einde "capped" is (afgeschermd, bv. door Gelsoline), kan Profiline zijn lading niet kwijt en werkt het net als Thymosine (remmend)
“HOOFDSCHAKELAAR”: PIP2 signalisatie
Hoe weet de cel wanneer het skelet moet veranderen? Via signalen van buitenaf (membraanreceptoren)
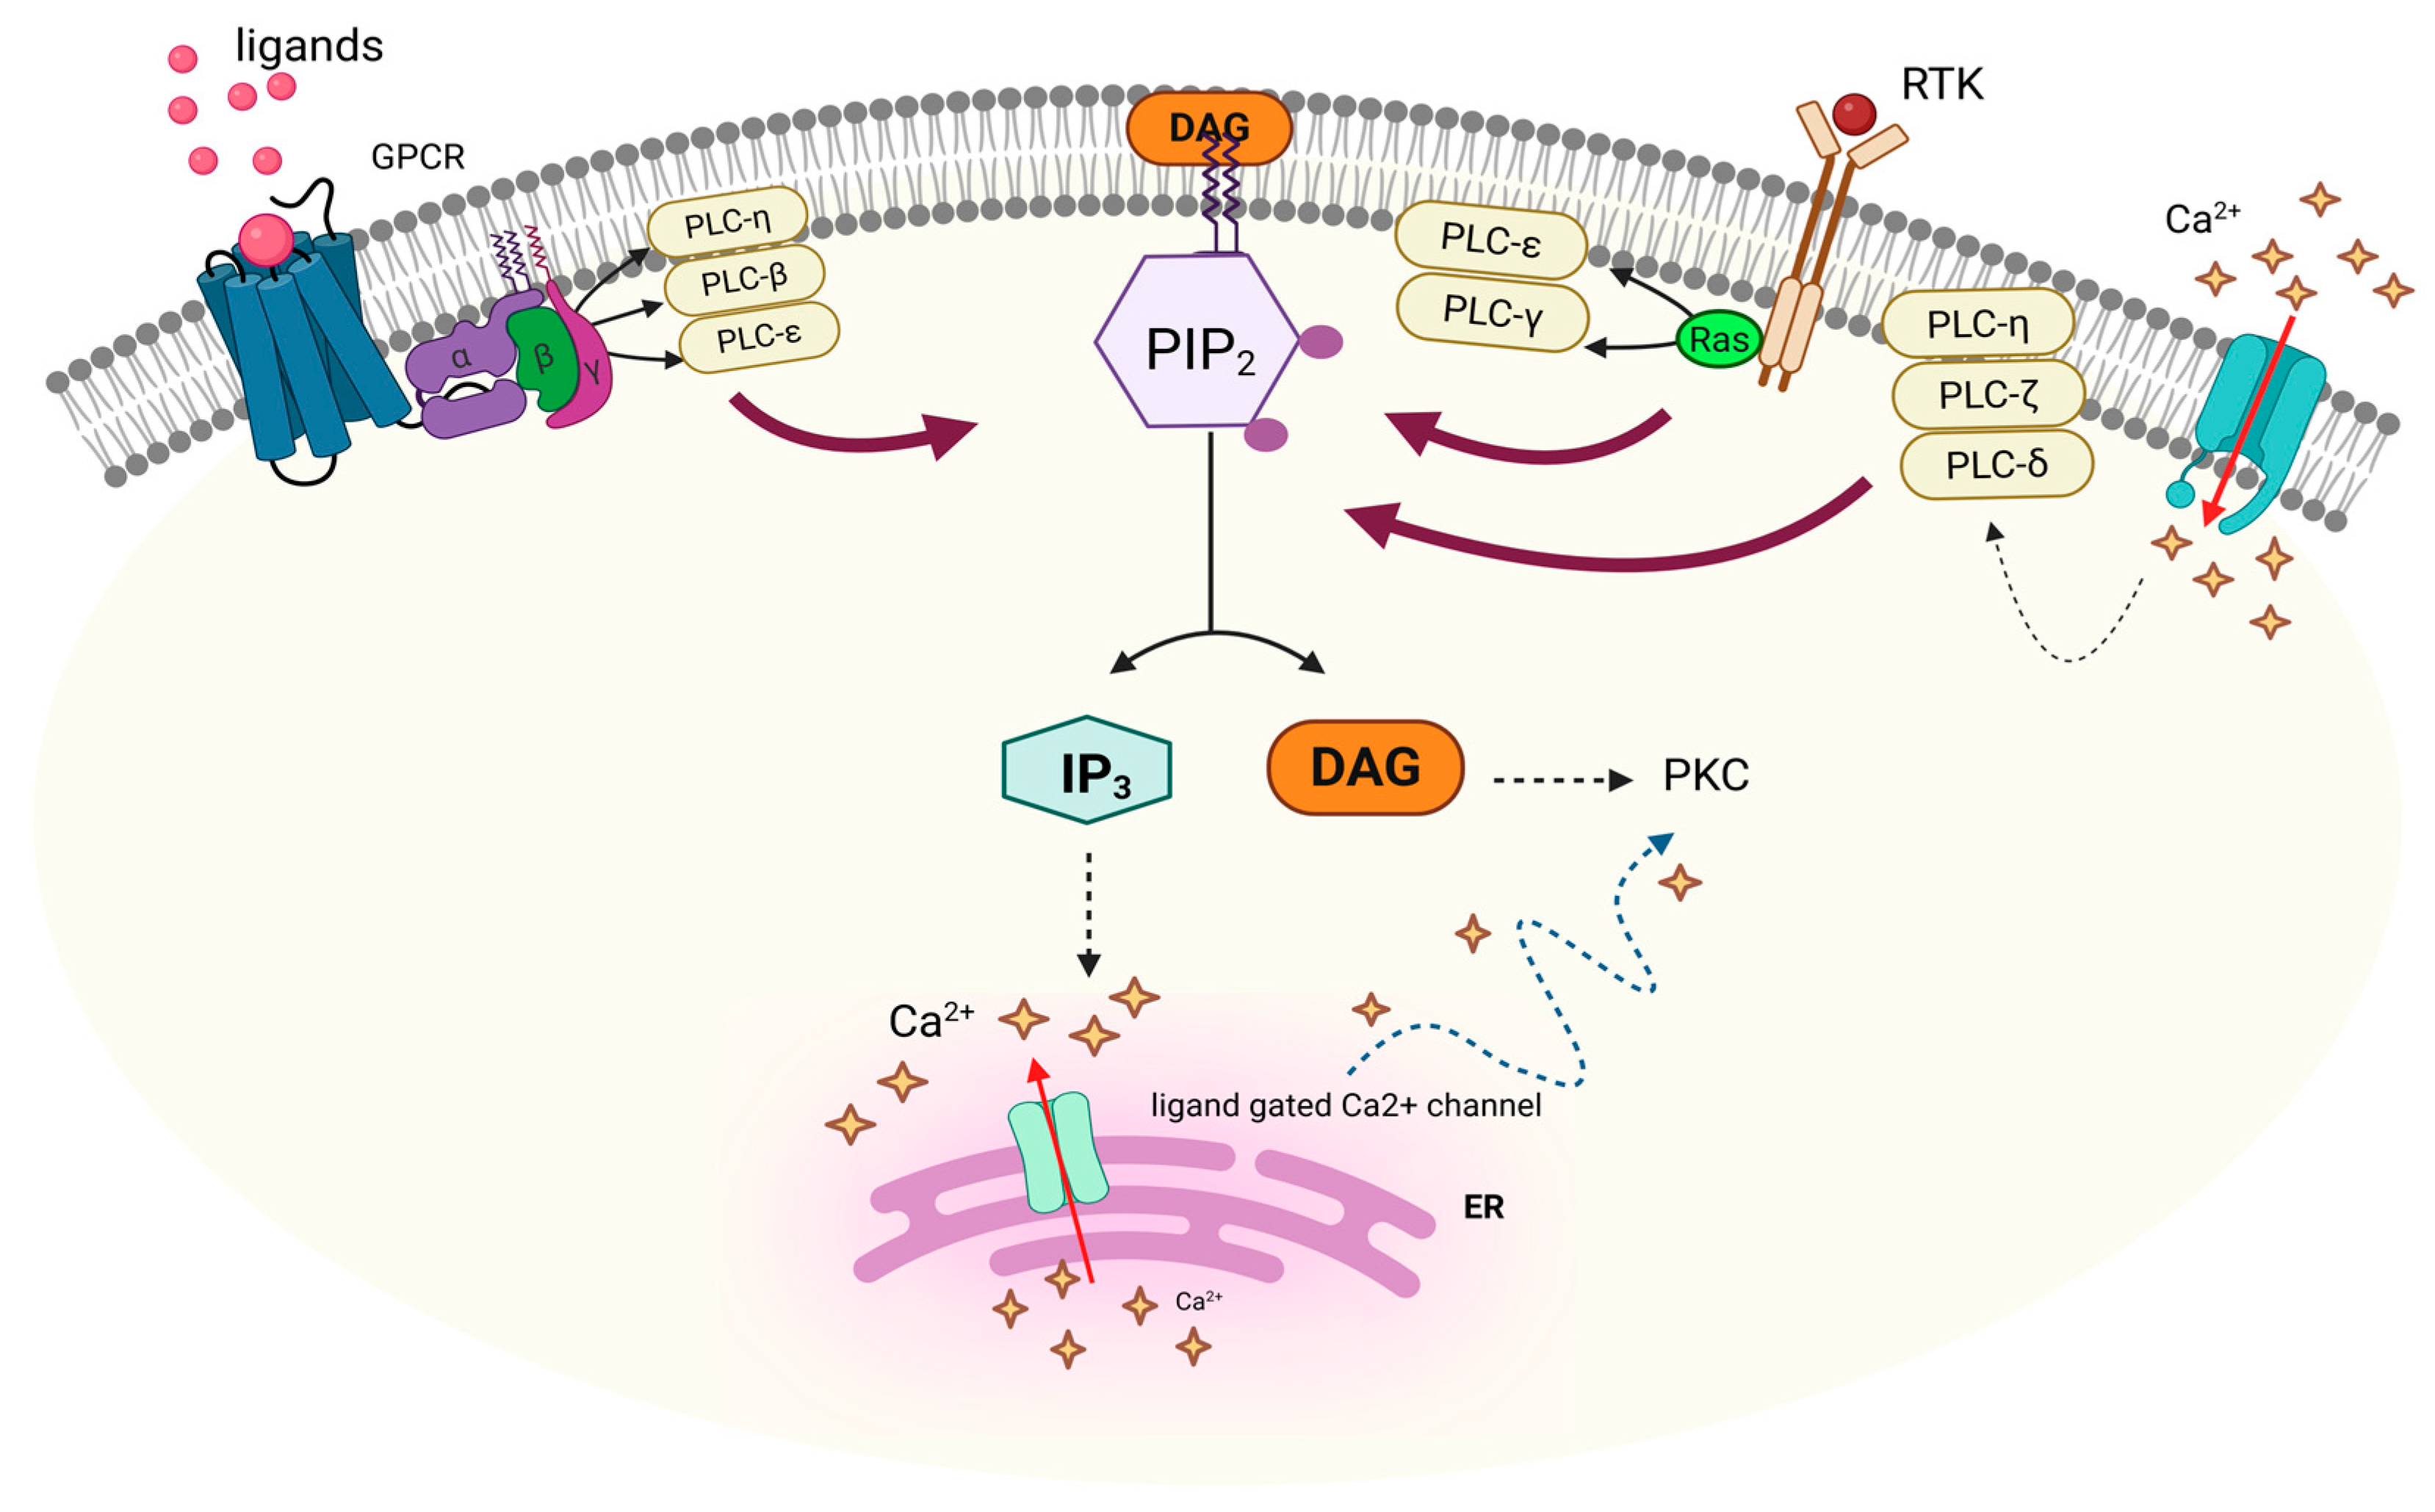
rust; geen signaal → PLC (Phospholipase C) inactief
signaal; ligand bindt op receptor → PLC wordt actief (PLC*)
splitsing; PLC knipt PIP2 kapot in twee stukken:
IP3 (gaat cel in)
DAG (blijft in membraan)
gevolg;
IP3 zorgt voor een toename van calcium
→ hoge [Ca²⁺] zorgt dat ABPs vrijkomen
→ ABPs beïnvloeden polymerisatiecyclus (starten, stoppen of afbreken)
SAMENVATTING
actine = bouwsteen (met ATP)
vormt filamenten die van nature aan één kant groeien (+) en aan de andere kant krimpen (-) = “treadmilling”
Profiline probeert de monomeren naar de groeiende kant te duwen; Thymosine probeert ze vast te houden. Profiline wint meestal door sterkere binding.
Dit alles wordt aangezet door een extern signaal dat via PIP2 en Calcium de regulerende eiwitten (ABP) activeert