1. AMINOZUREN
GEHEUGENSTEUNTJES
“glaciers in Alaska valiently locate isolated prowlers”
glycine, gly, G
alanine, ala, A
valine, val, V
leucine, leu, L
isoleucine, ile, I
proline, pro, P
“the aroma of fine pine and yellow timber are worth the trip”
fenylalanine, phe, F
tyrosine, tyr, Y
tryptofaan, trp, W
“basically his lost kid always returned”
histidine, his, H
lysine, lys, K
arginine, arg, R
“alcohol is a serious threat”
serine, ser, S
threonine, thr, T
“methodically check path for sulfur”
methionine, met, M
cysteïne, cys, C
“as Peter digested the glue, his stomach became acidic”
asparaginezuur, asp, D
glutaminezuur, glu, E
“amid this neatly stacked asparagus, is a glutinous quail”
asparagine, asn, N
glutamine, gln, Q
INVLOED pH
AZ’en dragen afhankelijk van de pH een andere lading omwille van (de)protonatie;
lage pH → H+ in overvloed → groepen geprotoneerd
hoge pH → H+ “tekort” → groepen gedeprotoneerd
pH = pkz → 50% gedeprotoneerd
pH < pkz → meer geprotoneerd
pH > pkz → meer gedeprotoneerd
conclusie; bij verlagen v/d pH kunnen AZ’en enkel meer geprotoneerd worden en dus ook enkel maar negatieve lading verliezen
Henderson-Hasselbalch; pH = pkz + log([A-]/[HA])
pkz is dus de pH waarbij [A-] = [HA], beiden zijn dus 50% aanwezig (in theorie)
ken je pkz, dan weet je wanneer helft lading verloren is
ken je pH waarbij helft lading verloren is, dan weet je pkz
CATEGORIEËN
POLAIR ONGELADEN
alcoholen; serine + threonine
-OH / -SH; tyrosine + cysteïne
amiden; asparagine + glutamine
POLAIR GELADEN
+ → basische; histidine + lysine + arginine
- → zuren; asparaginezuur + glutaminezuur
APOLAIR
overige
POST-TRANSLATIONELE MODIFICATIES
FOSFORYLATIE
= toevoegen fosfaatgroep (PO32-) aan O van;
serine (S) — OH
threonine (T) — OH
tyrosine (Y) — OH
ACETYLATIE
= toevoegen acetylgroep (R-CO-CH3) aan NH van;
lysine (K) — ε-NH3+ zijgroep
N-terminaal AZ — α-NH2
METHYLATIE
= toevoegen methylgroep (R-CH3) aan N van;
histidine (H) — ring (kan op beide N’)
lysine (K) — ε-NH3+ zijgroep
arginine (R) — guanidinogroep
N-terminaal AZ — α-NH2
HYDROXYLATIE
= toevoegen hydroxylgroep (R-OH) aan C van;
proline (P) — (C3 of) C4
lysine (K) — C5
CARBOXYLATIE
= toevoegen carboxylgroep (R-CO-OH) aan H van;
glutaminezuur (E) — γ-C zijgroep
→ winst extra negatieve lading
N - GLYCOSYLATIE — lumen rER, co-translationeel
= suiker (meestal GlcNAc) bindt via anomeer koolstof (C1) aan NH van;
asparagine (N)
motief; N - X - S/T
met X = eender welk AZ, behalve proline of asparaginezuur
O - GLYCOSYLATIE — Golgi
= suiker bindt via anomeer koolstof (C1) aan OH van;
serine (S)
threonine (T)
TRANSGLUTAMINASEREACTIE
glutamine (Q) + lysine (K) → glutamine-lysine crosslink + NH3
zijketen Q bindt aan zijketen K → R1 — NH — R2
→ verlies positieve lading, neutrale isopeptide
PROTEOLYSEREACTIE
knippen van peptidebindingen in een eiwit door proteasen
→ volledige afbraak
→ gerichte / gelimiteerde proteolyse = “processing” → maturatie/activatie eiwit
vb. fibrinogeen wordt door thrombine → fibrine
LIPIDEMODIFICATIE — p.206
myristylatie
toevoegen van een myristoylgroep (C14-vetzuur) via een amidebinding aan de N-terminale glycine
palmitylatie
vorming thio-ester
toevoegen van een palmitoylgroep (C16-vetzuur) aan S van cysteïne
vaak reversibel
farnesylatie
vorming thio-ether
toevoegen van een farnesylgroep (C15-isoprenoïde) aan S van cysteïne
C-terminaal cysteïne met "CAAX"-motief
let op, hier wordt dus geen vetzuur (met zuurgroep) toegevoegd!!
POLYPEPTIDEKETEN
ruggengraat van peptidebindingen tussen;
O van C=O (AZ1)
H van NH2 (AZ2)
NH3+ — “RON” — “RON” — … — “RON” — “RON” — RO — O-
R; zijketen op Cα
O; =O
N; NH
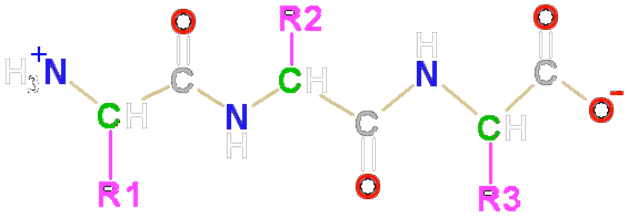
N-terminus (links); C-terminus (rechts)
ZWAKKE , NIET-COVALENTE INTERACTIES
WATERSTOFBRUGGEN
EIGENSCHAPPEN
~20 kJ/mol
donor; H moet covalent gebonden zijn aan N, O, F of S → H (δ+)
acceptor; bevat N, O, F of S mét vrij elektronenpaar
niet sterk an sich;
lineaire > niet-lineaire
maar grote aantallen zorgen wel voor stabilisatie
individuele bindingen kunnen snel breken, maakt aanpassing aan snel veranderende omgeving mogelijk
α-helix
elke C=O van residu i vormt een waterstofbrug met de N–H van residu i+4
→ ontstaan regelmatig intern H-brug-patroon (// helix-as) → stabilisatie helix

β-sheet
H-bruggen vormen zich ⟂ tussen verschillende ketens = strands
antiparallel; rechtlijnigere, sterkere H-bruggen → stabieler
parallel; iets schever, iets zwakker → minder stabiel

turns / loops
β-turns maken meestal een H-brug tussen residu i en i+3
→ stabiliseren scherpe bochten in de backbone
IONIAIRE BINDINGEN
= elektrostatische interactie tussen geladen groepen
~30 kJ/mol
aantrekkingskracht gegeven door wet v. Coulomb
afhankelijk van omgeving, diëlektriciteitsconstante = D
belangrijk voor stabilisatie op afstand;
helix-stabilisatie bij juiste afstand en oriëntatie
van oppervlakken en lusstructuren in eiwitten
indien naast ionaire interacties ook nog een waterstofbrug aanwezig is, spreken we van zoutbrug
VAN DER WAALS KRACHTEN
~4.2 kJ/mol
kortdurend
afhankelijk van afstand zijn ze;
afstotend indien “te dichtbij” = r < vdW radius
aantrekkend indien “te ver weg” = r > vdW radius
F = maximaal wanneer r = vdW radius
we onderscheiden 3 types;
dipool-dipoolinteracties
permanente dipool ←→ permanente dipool
opm; waterstofbinding is bijzonder sterke vorm van deze interactie
AZ;
N-terminus = gedeeltelijk positief → stabilisatie door negatieve groepen
C-terminus = gedeeltelijk negatief → stabilisatie door positieve groepen
dipool-geïnduceerde dipoolinteracties
permanente dipool ←→ geïnduceerde dipool (apolair deel)
AZ;
stabilisatie van (a)polaire interacties in de secundaire en tertiaire structuur
geïnduceerde dipool-geïnduceerde dipoolinteracties → Londonkrachten = dispersiekrachten
geïnduceerde dipool ←→ geïnduceerde dipool
AZ;
α-helix; dicht opeengepakte zijketens = “helix packing”
β-sheet; zijketens steken alternerend boven/onder de sheet → optimale packing tegen naburige sheets
HYDROFOOB EFFECT
apolaire moleculen lossen niet op in polaire oplosmiddelen zoals water, we noemen ze dan ook hydrofobe moleculen
het mengen van deze stoffen lukt alleen als we zelf E toevoegen in de vorm van roeren, warmte … het oplossen van dergelijke apolaire stoffen in polaire oplosmiddelen is dus thermodynamisch ongunstig
ΔG = ΔH - TΔS
verklaring;
wanneer hydrofobe moleculen gehydrateerd worden, kunnen ze geen waterstofbindingen vormen omdat de “acceptor” geen vrije e- heeft om aan H te kunnen binden
H2O moleculen moeten zich herpositioneren, wat leidt tot een verlies in entropie omdat er nu een verlies is in de hoeveelheid vrijheid deze molecule heeft itt wanneer het normale waterstofbruggen kon bouwen
voor spontane = exergonische processen is ΔG<0, bijgevolg willen we ΔH klein en ΔS groot
hydrofoob effect;
apolaire moleculen aggregeren → verlies in entropie, er is meer orde
polaire moleculen (H2O) aggregeren → winst in entropie, krijgen deel vrijheid terug
winst in entropie >>> verlies in entropie; het effect is entropisch gedreven, het streeft naar de staat waarbij het water de meeste wanorde heeft
AZ;
α-helix; hydrofobe zijketens richten zich naar binnen, weg van water, om de kern te vormen of leggen contact met andere helices/sheets
β-sheet; hydrofobe zijketens = hydrofobe kern van veel “β-sandwiches”
cruciaal voor stabiliteit binnen eiwitten!!
membranen;
vormen van micellen en bilayers is thermodynamisch gunstig; polaire groepen maken zoveel mogelijk contact met het polaire oplosmiddel, terwijl apolaire groepen gericht zijn naar elkaar, afgeschermd van het solvent
polaire stoffen kunnen hier niet doorheen, veel energie voor nodig enkel via transporteiwitten in membraan kunnen de concentraties binnen en buiten gewijzigd worden
apolaire stoffen kunnen eenvoudig diffunderen