III. DROSOPHILA MELANOGASTER
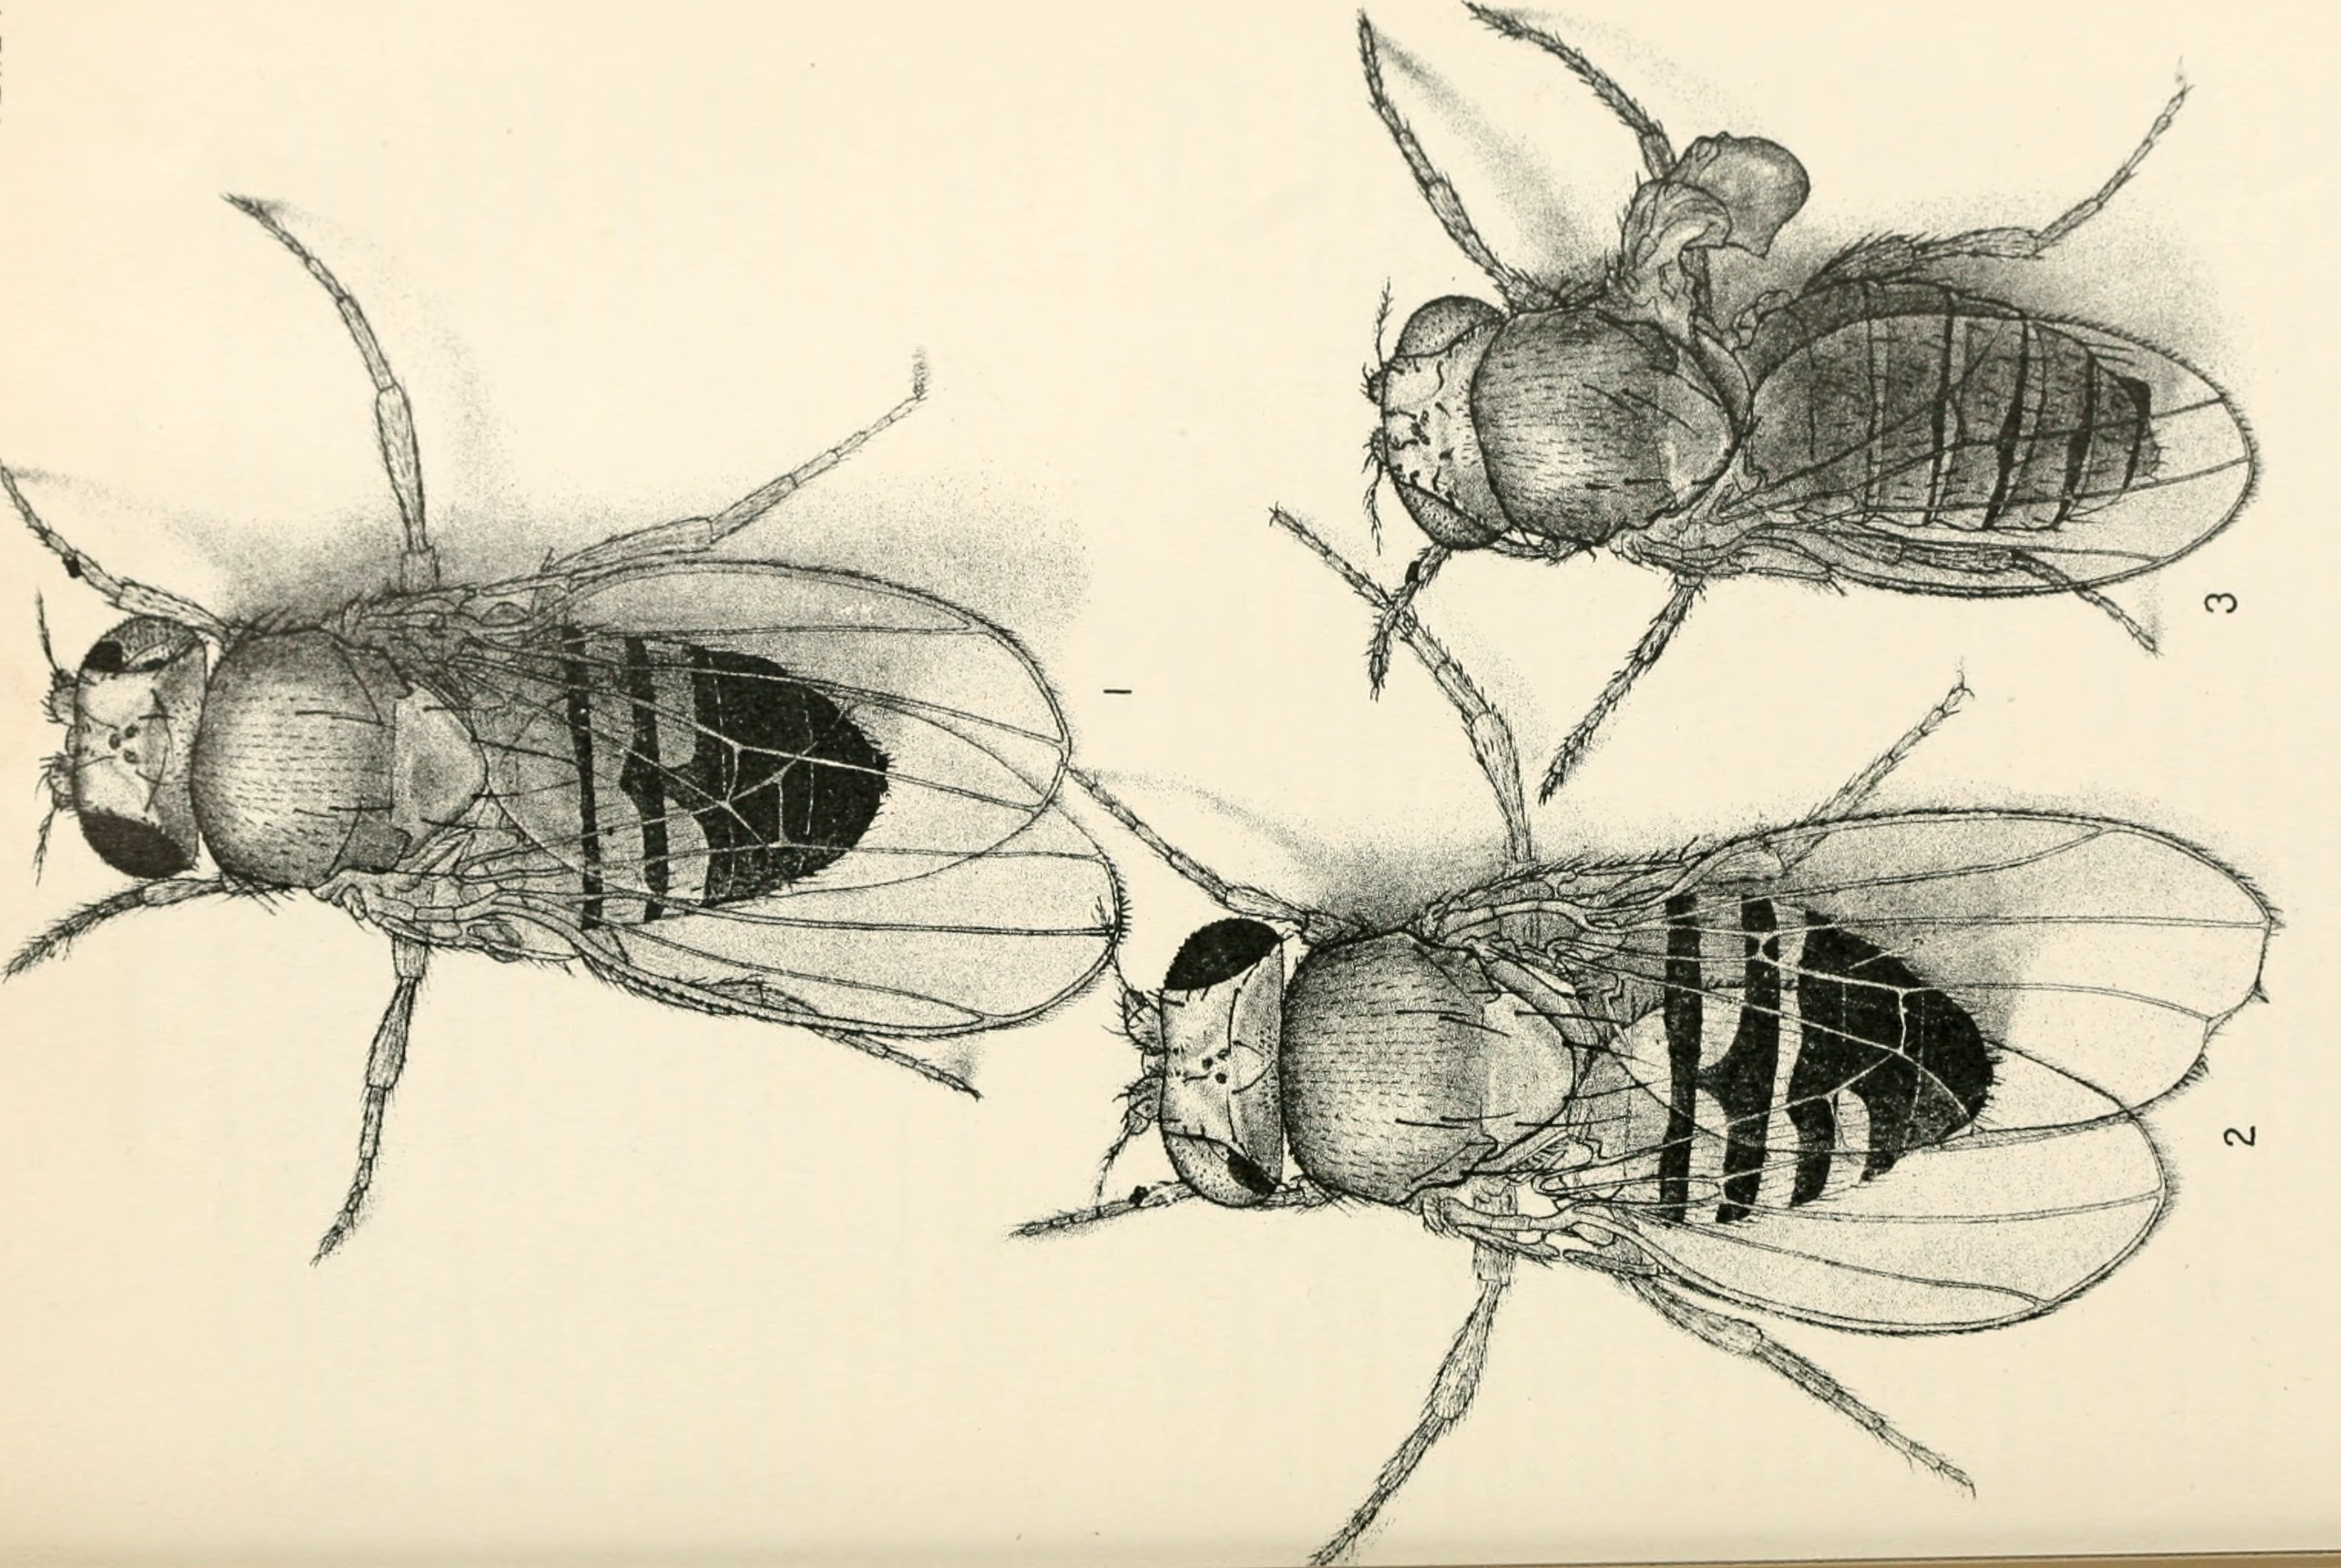

I. HET ORGANISME
Historiek: Thomas Hunt Morgan introduceerde Drosophila melanogaster als genetisch model rond 1910 met de ontdekking van de white-eyed mutant. Dit leidde tot de chromosoomtheorie en de eerste genetische kaarten.
Waarom Drosophila? Het heeft een korte generatietijd, produceert veel nakomelingen (wat genetische verhoudingen zichtbaar maakt) en heeft zichtbare mutanten die makkelijk te volgen zijn via kruisingen.
Genoom: Het genoom is relatief klein (180 miljoen basenparen) en telt ongeveer 13.600 proteïne-coderende genen verdeeld over 4 paar chromosomen (X/Y en 3 paar autosomen). Geslachtsbepaling gebeurt door de X:A-ratio, niet door het Y-chromosoom.
Moderne tools: De vlieg is geëvolueerd van een puur genetisch model naar een geïntegreerd systeem. Men gebruikt databanken zoals FlyBase (geninformatie), de Fly Cell Atlas (single-cell transcriptomics om te zien in welke cellen een gen actief is) en het FlyWire Connectome (de volledige synaptische bedrading van het brein).
II. ONTWIKKELING
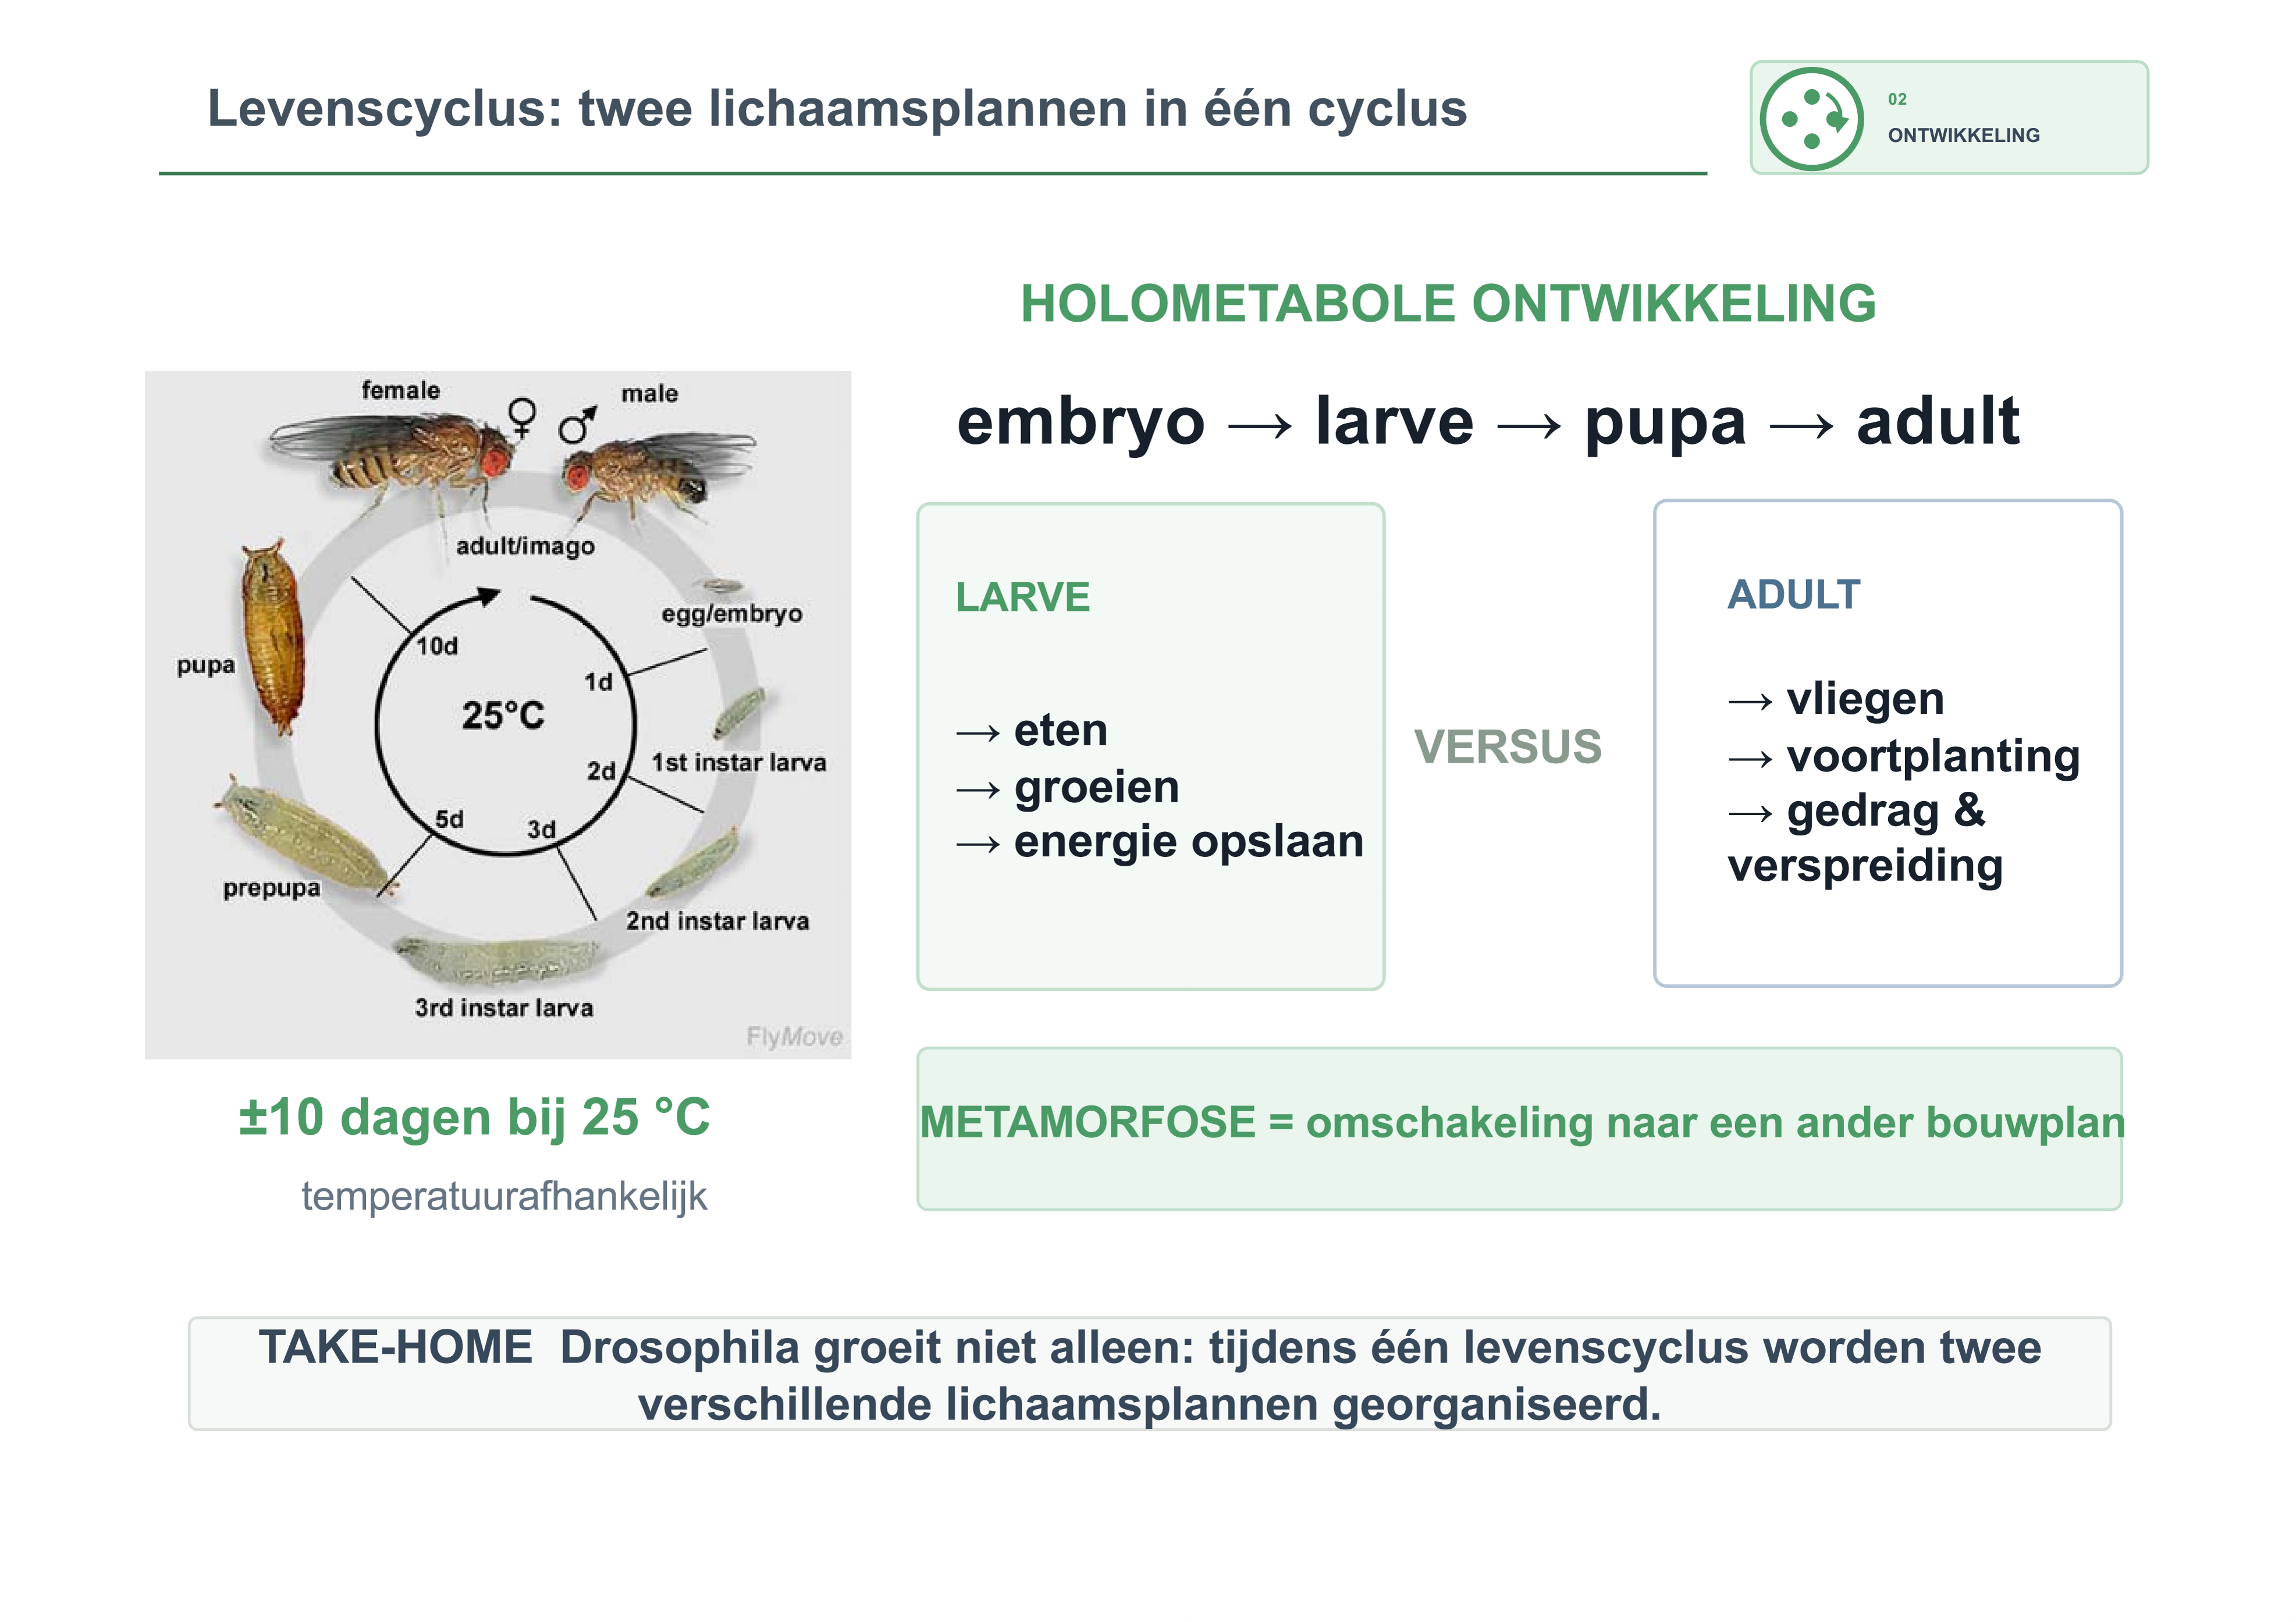
Holometabole ontwikkeling: De vlieg heeft twee lichaamsplannen in één cyclus, wat ongeveer 10 dagen duurt bij 25°C.
Embryogenese: Dit begint uniek: eerst delen de kernen zich zónder dat er celmembranen vormen (een syncytium). Pas daarna migreren de kernen naar de rand en vormen zich cellen (cellularisatie), gevolgd door gastrulatie waarbij de 3 kiemlagen (ectoderm, mesoderm, endoderm) ontstaan.
Larvale fase (L1, L2, L3): De larve doet voornamelijk aan eten, groeien en energie opslaan. Belangrijk: in de larve bevinden zich al imaginale schijven. Dit zijn kleine epitheliale voorlopers die later de adulte organen (zoals vleugels, ogen en poten) zullen vormen. De larve bouwt dus al aan haar opvolger.
Metamorfose (Pupa): Een grote puls van het hormoon ecdysone geeft het tijdsignaal om de metamorfose te starten. Hierbij worden veel larvale weefsels afgebroken, terwijl de imaginale schijven prolifereren en het adulte lichaam opbouwen.
III. VLIEG ↔ MENS


Relevantie: Hoewel de anatomie verschilt, is er veel gedeelde biologie. Ongeveer 75% van de ziekteverwekkende genen bij de mens heeft een homoloog in de vlieg.
Geconserveerde signaalroutes: Veel moleculaire pathways, zoals Wnt/Wingless (patroonvorming), Hedgehog, Notch (celbeslissingen) en RAS/MAPK (proliferatie), werken hetzelfde in mens en vlieg.
Ziekten modelleren: Men modelleert niet de volledige patiënt, maar een geconserveerd ziektemechanisme. De vlieg wordt gebruikt voor onderzoek naar neurodegeneratie (zoals ALS of Alzheimer), kanker, spierziekten en metabole aandoeningen (zoals obesitas).
Praktische voordelen: Naast de biologische gelijkenissen is onderzoek op vliegen goedkoop, neemt het weinig plaats in, groeit het snel en vereisen de experimenten geen goedkeuring van een ethische commissie.
IV. GENETICA
VAN MENDEL NAAR CHROMOSOOMTHEORIE

Mendel legde de basis met zijn wetten (segregatie, onafhankelijke overerving, dominantie), maar wist nog niet waar deze genetische "factoren" zich fysiek bevonden.
Thomas Hunt Morgan bracht hier in 1910 verandering in met de ontdekking van de white-eyed mutant. Hij toonde aan dat deze eigenschap X-gebonden overerfde, wat het bewijs leverde dat genen een fysieke plaats (locus) hebben op chromosomen.
Linkage en recombinatie: Genen die op hetzelfde chromosoom liggen, zijn "gekoppeld" en erven vaak samen over. Dit kan echter doorbroken worden door crossing-over (recombinatie). Alfred Sturtevant ontdekte in 1913 dat de frequentie van deze recombinatie toeneemt naarmate genen verder uit elkaar liggen. Dit principe werd gebruikt om de eerste genetische kaarten te maken.
NOMENCLATUUR
Het is cruciaal om de naamgeving correct te interpreteren voor het oplossen van kruisingen:
Recessief mutant fenotype: Begint met een kleine letter (bijvoorbeeld w voor white, e voor ebony, bw voor brown).
Dominant mutant fenotype: Begint met een hoofdletter (bijvoorbeeld Cy voor Curly, Pr voor purple).
Wildtype: Wordt vaak aangeduid met een plus-teken (+).
Leesregels: Bij een heterozygoot (bijvoorbeeld e/+) bepaalt het dominante allel het fenotype (in dit geval wildtype lichaamskleur, want ebony is recessief). Bij een heterozygote dominante mutatie (bijvoorbeeld Cy/+) toont de vlieg het mutante fenotype (Curly vleugels).
Chromosoomafwijkingen: Df staat voor deficiency (een stukje ontbreekt), Dp voor duplicatie en In voor inversie.
BALANCERCHROMOSOMEN
Om dodelijke mutaties (homozygoot lethaal) te kunnen bewaren in een vliegenstam (stock) zonder dat de mutatie verloren gaat door recombinatie, gebruikt men balancerchromosomen. Deze balancers hebben drie essentiële eigenschappen.

Onderdrukken homologe recombinatie: Balancers bevatten vele inversies. Als er toch crossing-over gebeurt met het mutante chromosoom, zijn de recombinanten niet levensvatbaar. De mutatie blijft dus veilig gekoppeld aan het chromosoom.
Homozygoot lethaal: Een vlieg met twee balancerchromosomen (BAL/BAL) sterft. Een vlieg met twee mutante chromosomen (mut/mut) sterft ook. Hierdoor is de enige overlevende nazaat in een stock altijd de heterozygoot (mut/BAL), wat zorgt voor een stabiele, zelfonderhoudende populatie.
Dominante zichtbare marker: Je kan aan de buitenkant van de vlieg zien of de balancer aanwezig is. Voorbeelden uit de cursus: CyO op chromosoom 2 geeft Curly (gekrulde) vleugels, TM3 op chromosoom 3 geeft Stubble (korte) borstelharen, en TM6B geeft een Tubby (korte, dikke) larve/pop. Door simpelweg naar de vlieg te kijken, weet je meteen welk genotype je in handen hebt tijdens een kruising.
FORWARD GENETICS EN GENETISCHE SCREENS
Herman Muller ontdekte dat je mutaties experimenteel kan opwekken met röntgenstraling (later ook met de chemische stof EMS). Dit veranderde de aanpak fundamenteel: men hoefde niet meer te wachten op toevallige mutanten.


Forward genetics: Je vertrekt van het fenotype en zoekt daarna welk gen dit veroorzaakt. Je maakt willekeurige mutaties met EMS, gebruikt balancers om de mutaties te bewaren, screent de homozygote nakomelingen op een interessant fenotype, en brengt daarna pas het gen in kaart.

Heidelberg-screen: Een klassiek voorbeeld hiervan is de screen van Nüsslein-Volhard en Wieschaus. Zij zochten systematisch naar defecten in de embryonale patroonvorming en vonden drie categorieën genen: Gap-genen (grote aaneengesloten regio's ontbreken), Pair-rule genen (afwisselende segmenten ontbreken) en Segment polarity genen (het patroon binnen elk segment is verstoord).
V. GENFUNCTIE
Transgenese = het gericht inbrengen en gebruiken van DNA om de functie van een gen te testen. We onderscheiden hierbij vier belangrijke stappen/aspecten;

1. DNA INBRENGEN

P-element — semi-willekeurige "knip-en-plak" methode
Een P-element is van oorsprong een natuurlijk springend DNA-element.
In de natuur bevat dit element een gen voor het enzym transposase, geflankeerd door twee herkenningsuiteinden (TIRs of Terminal Inverted Repeats). Het transposase-enzym herkent deze TIRs en zorgt voor een "knip-en-plak" actie, waardoor het P-element zichzelf verplaatst in het DNA.
In het lab maken onderzoekers hier slim gebruik van: ze halen het transposase-gen eruit en stoppen hun eigen transgen (inclusief een selectiemarker) tussen die TIR-uiteinden (dit is het donorplasmide). Vervolgens injecteren ze dit samen met een tijdelijke bron van transposase (een helper-plasmide) in een vroeg embryo. Het transposase knipt het construct uit en plakt het in het genoom van de vlieg.
2 specifieke toepassingen:
Knock-out lijnen maken door 'imprecise excisie': Je kan een transposasebron toevoegen aan een vlieg die al een geïntegreerd P-element heeft, om het er weer uit te laten springen. Soms gebeurt dit onnauwkeurig, waarbij flankerend DNA van het vliegen-gen mee wordt weggenomen. Dit resulteert in een "null-allel" of knock-out.
Enhancer traps: Je gebruikt het P-element hier als een sensor voor genregulatie. Het P-element wordt voorzien van een minimale promotor en een reporter-gen (zoals lacZ). Als het P-element toevallig landt in de buurt van een lokale enhancer in het genoom, zal het reporter-gen tot expressie komen. Hierdoor maak je zichtbaar waar en wanneer die enhancer precies actief is.
Het probleem: P-elementen integreren semi-random. Je weet niet op voorhand waar in het genoom jouw construct zal landen. Dit veroorzaakt "positie-effecten": als jouw gen toevallig in een heel actief of juist heel stil stukje DNA belandt, beïnvloedt dat hoe sterk jouw gen tot expressie komt. Dit maakt het moeilijk om verschillende experimenten eerlijk met elkaar te vergelijken.
attB, attP en ΦC31 — gerichte, locatie-specifieke methode
Om het probleem van die willekeurige landingsplaatsen (positie-effecten) op te lossen, is men overgestapt op site-specifieke integratie met het ΦC31-systeem. Dit garandeert dat jouw transgen altijd op exact dezelfde locus belandt, waardoor de genomische context altijd gelijk blijft.


attP: vooraf bepaalde, gekende landingsplaats die al in het genoom van de fruitvlieg zit
attB: herkenningssequentie die jij aan jouw eigen transgen hebt vastgemaakt
ΦC31 integrase: recombinase enzym dat specifiek de attB- en attP-sequenties herkent en ze aan elkaar vastmaakt; na integratie veranderen deze in attL- en attR-sequenties, waardoor de integratie stabiel is
Kort samengevat: Vroeger gebruikte men P-elementen, wat handig was, maar je transgen landde telkens op een willekeurige plek. Tegenwoordig gebruikt men attB/attP in combinatie met het enzym ΦC31, zodat je jouw DNA doelgericht op een vaste "parkeerplek" (attP) in het genoom kan integreren.
2. EXPRESSIE STUREN
Het GAL4/UAS-systeem

Dit is het belangrijkste gereedschap en bestaat uit twee componenten die van nature niet in de fruitvlieg voorkomen, maar uit gist (Saccharomyces cerevisiae) zijn gehaald. Omdat het systeem endogeen afwezig is in de vlieg, kun je er heel selectief genexpressie mee sturen. Je brengt de twee componenten samen door twee vliegenlijnen te kruisen;
Driver (waar): Dit is een vliegenlijn met het GAL4-gen, gekoppeld aan een weefselspecifieke promotor of enhancer. GAL4 is een eiwit dat transcriptie activeert. De promotor bepaalt in welk weefsel of in welke cellen dit eiwit wordt aangemaakt (bijvoorbeeld alleen in neuronen).
Responder (wat): Dit is een vliegenlijn met een UAS-sequentie (Upstream Activator Sequence) die vlak vóór jouw gen van interesse ("Gen X") ligt.
Samenwerking: Wanneer de nakomelingen uit de kruising beide elementen bezitten, zal het GAL4-eiwit binden aan de UAS-sequentie. Het resultaat is dat jouw gen van interesse uitsluitend "aangaat" in de cellen die door de GAL4-driver zijn bepaald.
Rescue experimenten: Een heel belangrijke toepassing van het GAL4/UAS-systeem is het "redden" van een fenotype. Je kan bijvoorbeeld een humaan gen inbrengen in een vlieg die haar eigen functionele gen mist, om te testen of dit menselijke gen het normale fenotype kan herstellen.
3. GENFUNCTIE TESTEN
RNAi en CRISPR

Het modulaire van het GAL4/UAS-systeem is dat je het UAS-gedeelte ("responder") kan vervangen door verschillende gereedschappen, afhankelijk van wat je wil testen. Naast het simpelweg toevoegen of overactiveren van een gen, kan je de genfunctie ook afremmen of uitschakelen;
UAS-RNAi (of UAS-siRNA): Dit wordt gebruikt voor een "knock-down". Het leidt tot de afbraak van het doelwit-mRNA, waardoor de expressie van een gen omlaag gaat zonder het DNA zelf aan te passen.
UAS-cas9 (CRISPR): Dit wordt gebruikt voor een echte "knock-out". Dit systeem zorgt voor een dubbelstrengsbreuk in het DNA van het doelwit, waardoor de genfunctie daadwerkelijk wordt uitgeschakeld.
4. TIJD TOEVOEGEN
GAL80ts

Soms is het gen dat je wil onderzoeken schadelijk of dodelijk voor het embryo of de larve, waardoor de vlieg de volwassen fase niet haalt. Je wil het systeem dan tijdelijk UIT kunnen zetten en pas AAN zetten wanneer jij dat wil.
Dit doe je met GAL80ts, een temperatuurgevoelig eiwit.
Bij een lage temperatuur van 18 graden Celsius is GAL80ts actief en remt het de werking van GAL4, waardoor je gen UIT staat.
Door de vliegen te verplaatsen naar een warme omgeving van 29 graden Celsius, wordt GAL80ts inactief. GAL4 kan dan zijn werk doen, waardoor jouw gen ineens AAN gaat in de volwassen vlieg.
In de context van tijdscontrole toont de cursus ook "GeneSwitch", wat een ander systeem is om de tijd te sturen. Ecdysone is daarentegen een natuurlijk hormoon van de vlieg zelf dat als tijdsignaal dient voor de larvale vervellingen en de start van de metamorfose naar een pop.