Sinalização Molecular e Envelhecimento
Sinalização Molecular e Envelhecimento
Instabilidade Genómica e Envelhecimento
A instabilidade genómica é um dos fatores associados ao envelhecimento, que se manifesta através de:
Encurtamento de telómeros
Alterações epigenéticas
Perda de proteostasia
Desregulação da sinalização por nutrientes - o envelhecimento está muito relacionado com a restrição calórica
Disfunção mitocondrial
Senescência celular
Diminuição de células estaminais
Alteração da sinalização intercelular
Sirtuinas são importantes
Danos no DNA (nuclear e mitocondrial) podem ser reparados, mas danos excessivos ou reparação insuficiente favorecem o envelhecimento.
Mutações em genes de reparação do DNA, supressores tumorais, e manutenção dos telómeros levam a um envelhecimento acelerado. Deficiências em helicases tipo RECQ (RECQ1, BLM, WRN, RTS e RECQ5) resultam em deleções, translocações e aberrações cromossômicas.
Síndromes como Bloom, Werner e Rothmund-Thomson estão associadas a elevada incidência de cancro.
Ratinhos deficientes na DNA polimerase 𝛾 (POLG; mitocondrial) apresentam envelhecimento prematuro, diminuição da longevidade, tamanho corporal reduzido, cifose, alopecia, acumulação de mutações pontuais e deleções, e aumento de marcadores de apoptose.
O envelhecimento está associado a morte e doenças, aspeto relacionados com a instabilidade genómica, encurtamento dos telómeros e alteração epigenetica
Perda de proteostasia - homeostasia de proteinas (chaperones e sistemas proteoliticos)
Disfunção mitocondrial, aumento de ros, senescencia celular, diminuição de celulas estaminais e alteração da sinalização intercelular
Senescencia replicativa - limite de Hayflick
numero limitado de vezes de divisão
são capazes de passar por numero de predeterminado de ciclos de crescimentos (passagens)
permanecem metabolicamente ativas
associado ao encurtamento dos telómeros
Senescencia do organismo - células que vão envelhecendo
Telómeros
Os telómeros são sequências repetitivas de DNA não-codificante (TTAGGG em mamíferos) localizadas nas extremidades dos cromossomas, protegendo-os de fusões. A diminuição do comprimento dos telómeros pode levar a uma crise celular.
Os telomeros vão diminuindo e quando atingem um tamanho critico há crise celular
(pela 8 passagem, as celulas apresentadas ficam achatadas e começam a apresentar beta-galactosidade associado à senescencia
Instabilidade genómica
Pode ser causada por danos no DNA, com muitas causas exógenas ou endógenas como ROS
Podem ocorrer pelo encurtamento de telomeros, danos de bases, quebras, etcs, com a idade os danos acumulam-se e as ferramentas de reparação são menores
É apoiada por patologias em que há mutações em genes- sindromes progeroides
Danos nos genes que mantém a rejuvenidade das células
Mutações nas helicases na replicação de dna como Bloom, werner → sindromes progeróides.
Polimerase gamma - mutações demonstram fenotipos de envelhecimento prematuro, há um aumento de marcadores de morte celular
Alterações Epigenéticas
Alterações na metilação do DNA, acetilação e metilação de histonas induzem alterações epigenéticas que contribuem para o envelhecimento.
Inibidores de acetiltransferases aumentam a longevidade em ratinhos progeroides.
→ Fármacos para limitar alterações epigenéticas
Disfunção Mitocondrial e genomica
A disfunção mitocondrial está relacionada com:
Acumulação de mutações e deleções no mtDNA
Alterações na dinâmica mitocondrial (fusão vs fissão)
Oxidação de proteínas mitocondriais
Desestabilização da organização dos complexos da cadeia respiratória
Alterações na composição lipídica das membranas
Diminuição da biogénese mitocondrial
Diminuição da autofagia e mitofagia
O envelhecimento está relacionado com a acumulação de danos celulares causados por espécies reativas de oxigénio (ROS).
A sobre-expressão de MnSOD e catalase (direcionada para a mitocôndria) aumenta a longevidade em Drosophila e ratos, respetivamente, diminuindo danos oxidativos e deleções no mtDNA.
A restrição calórica aumenta a longevidade por um mecanismo associado ao aumento do metabolismo mitocondrial e produção de ROS (mitohormesis). Metformina e resveratrol aumentam a longevidade via disfunção mitocondrial, aumento dos níveis de AMP e ativação da AMPK.
Alterações em vias de sinalização relacionadas com disfunção mitocondrial incluem a diminuição de AMPK, SIRT1 e PGC1α, e o aumento de TORC1.
Disfunções mitocondriais e longevidade
A restrição calórica aumenta a longevidade por um mecanismo associado com o aumento do metabolismo mitocondrial e produção de ROS.
AMPK - processos regulados na longevidade.
Ros em nível baixos podem promover proliferação e diferenciação, resposta adaptativa na reparação de danos celulares e indução da doença
Disfunções mitocondriais:
Mutações no DNA mitocondrial
Oxidação de proteínas mitocondriais
Destabilização da cadeia transportadora de eletrões (os eletrões podem escapar)
Alterações nos lípidos das membranas - alterações na sua organização e fluidez ficam afetados
Alterações na dinamica mitocondrial
Diminuição da autofagia
Diminuição da biogenese mitocondrial (impede a substituição das mitocondrias, tem haver com outras vias)
Alterações em vias de sinalização também contribuem
Alterações na IGF1, diminição da AMPK, diminuição da SIRT1 (regulação mutuo), diminuição da PGC1alfa —> contribuiem para danos mitocondriais e danos nas proteinas, temos um feedback porque as proteinas podem formar agregados que contribuem para a disfunção mitocondrial.
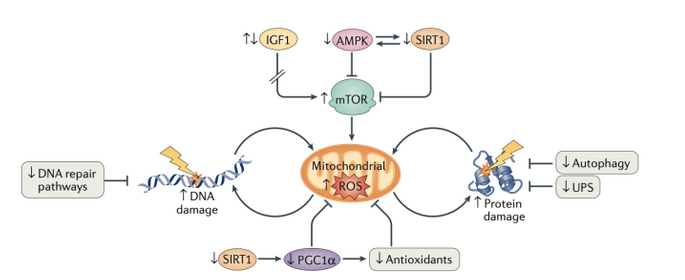
Perda de Proteostasia
A perda de proteostasia contribui para o desenvolvimento de patologias relacionadas com a idade, como Alzheimer e Parkinson, envolvendo mecanismos de estabilização de proteínas corretamente enroladas (HSPs) e degradação de proteínas pelo proteassoma ou lisossoma. Agregados de proteínas provocam disfunção mitocondrial, aumentando a produção de ROS, e inibem o proteassoma, diminuindo a proteostasia. Chaperones (Hsp104) formam uma ponte entre agregados carbonilados e o citoesqueleto, encaminhando os agregados, contribuindo para doenças neurodegenerativas e disfunção mitocondrial associada.
Em um contexto de envelhecimento replicativo:
Existem mecanismos da célula mãe para proteger a célula filha. Quando uma célula se divide, a citocinese não é igual, e há mecanismos de controlo de qualidade que impedem que a célula filha herde agregados danificados. O mesmo ocorre com as mitocôndrias, onde as que vão para a célula filha são as que têm melhores condições (Hsp140 - ligada ao citoesqueleto e retém as proteínas na célula mãe).
Restrição Calórica
A sobreativação das vias de sinalização por IGF-1 e TOR diminui a longevidade, afetando a autofagia, função mitocondrial, resistência ao stress oxidativo e estabilidade do genoma. O excesso de nutrientes ativa TOR e IGF-1, enquanto a deficiência de AMP ativa AMPK.
A inibição dessas vias (por exemplo, através da restrição calórica) aumenta a longevidade, assim como a ativação da AMP quinase (AMPK). As vias de sinalização da insulina/IGF-1, TOR e AMPK regulam processos celulares críticos para a homeostasia celular e longevidade.
A restrição calórica retarda ou reduz a incidência de doenças relacionadas com o envelhecimento (cancro, diabetes, doenças cardiovasculares) e preserva a função de células estaminais.
Mary Crowell e Clive McCay (1934) demonstraram que a restrição calórica aumenta a longevidade em ratinhos. Uma redução moderada na ingestão de calorias é uma intervenção eficaz no aumento da longevidade em diversas espécies, incluindo mamíferos.
A restrição calórica é conservada em termos evolutivos, retarda doenças relacionadas com o envelhecimento e mantém células estaminais.
Sirtuínas
IGF1 e Tor ficam inibidas, ocorre a ativação das sirtuínas e AMPK.
As sirtuínas são deacetilases dependentes de , importantes na estabilidade genómica. Elas coordenam respostas a stress (oxidativo, metabólico e genotóxico) e regulam proteínas envolvidas na regulação do DNA e da AMPK, além de influenciarem a qualidade das mitocôndrias herdadas pelas células filhas.
SIRT1 (núcleo e citoplasma): Atua na sobrevivência, diferenciação, inflamação e metabolismo.
SIRT2 (núcleo e citoplasma): Regula o ciclo celular.
SIRT3 (núcleo e mitocôndria): Envolvida no metabolismo.
SIRT4 (mitocôndria): Atua no metabolismo.
SIRT5 (mitocôndria): Influencia a função mitocondrial.
SIRT6 (núcleo): Importante na reparação de DNA.
SIRT7 (núcleo): Atua na transcrição de rRNA.
SIRT1 é o ortólogo de Sir2.
A atividade das sirtuínas diminui ao longo do tempo devido à redução dos níveis de , que está associada aos danos no DNA e à tentativa de reparação por enzimas como a PARP, que utiliza .
A restrição calórica aumenta a expressão de SIRT1, e a sobreexpressão de SIRT1 promove fenótipos semelhantes aos induzidos pela restrição calórica. Os níveis de diminuem com o envelhecimento, o que está associado à ativação da PARP (poli-ADP-ribose polimerase), que catalisa a ADP-ribosilação de proteínas nos locais de danos no DNA, clivando o .
O envelhecimento leva a danos no DNA, depleção de , e inativação de sirtuínas.
SIRT1, 2, 6, e 7 (e, em menor extensão, SIRT3) regulam a cromatina via deacetilação de histonas e outras proteínas. Ratos com knockout (KO) para estas sirtuínas apresentam instabilidade genómica e defeitos na reparação do DNA.
Controlo do transporte de organelos mãe-filha
A célula filha recebe material não danificado preferencialmente. Mitocôndrias reduzidas (mais funcionais) são transportadas pela miosina no citoesqueleto e encaminhadas da célula mãe para a célula filha. Proteínas promovem a formação de filamentos de actina, que crescem da célula filha para a mãe e incorporam actina corretamente enrolada por uma chaperona Bni1 (em contracorrente).
Um KO da sirtuina, actina unfolded fica lá e não é incorporada, portanto a velocidade de crescimento dos cabos de actina diminui. Se a actina cresce mais devagar, as mitocondrias oxidadas têm tempo de ir para a celula filha. Normalmente, as mitocondrias reduzidas são mais leves e chegam lá depressa, quando a velocidade da formação dos filamentos de actina diminui, as mitocondrias oxidadas vão ter tempo de chegar à celula mae logo vão envelhecer mais depressa, a celula filha vai nascer com danos.
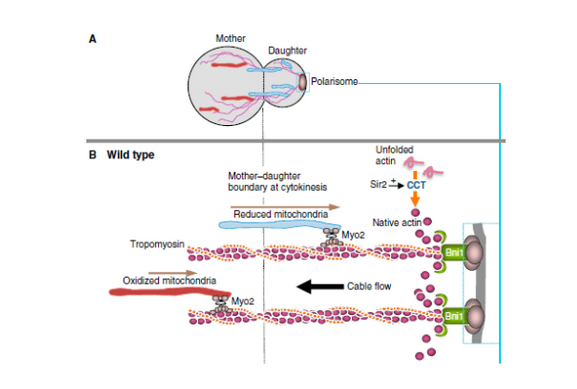
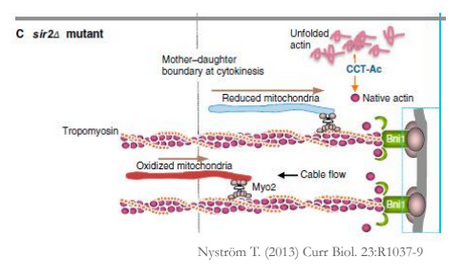
A deficiência na sirtuína Sir2 aumenta a transferência de mitocôndrias oxidadas da célula mãe para a célula filha. A chaperonina CCT está envolvida no enrolamento da actina, e sua atividade é regulada pela deacetilase Sir2.
Existem vários mecanismos de controlo, incluindo a distribuição de vacúolos (lisossomas) mais ácidos para a célula filha.
Na divisão de células estaminais, a célula mãe retém o material de melhor qualidade para garantir uma divisão contínua e preservar a integridade do DNA. As melhores mitocôndrias também permanecem na célula mãe.
Divisão celular assimétrica em células estaminais
Formam-se duas células filha diferentes:
celula estaminal
célula em diferenciação
A célula estaminal:
Retém a cadeia de DNA parental (a cadeia de DNA sintetizada na fase S, que pode conter erros introduzidos durante a replicação, é direcionada para a célula que se vai diferenciar)
Retém mitocôndrias não danificadas
Apresenta níveis elevados de autofagia e de atividade de
proteassoma
A diminuição do nº de células estaminais com o envelhecimento leva a uma diminuição de função em tecidos e órgãos (ex. compromete regeneração de tecidos)
Sirtuina 1
SIRT1 promove a reparação de DNA e silenciamento epigenético, via deacetilação de fatores de reparação do DNA, histonas e proteínas envolvidas em vias de resposta a danos no DNA e stress (inibe p53, inibe RelA/p65 (NFkB), ativa FOXO3a)
Regula o metabolismo celular e a homeostasia energética, estimula a secreção de insulina, promove a homeostasia da glucose e a biogénese mitocondrial.
Diacetilação da p53 e NFbK e o PGC1alfa - sensibilidade à insulina, biogenese mitocondrial e tolerancia à glucose
A PGC1alfa, é um coativador de FOXO1 para diminuir a glicolise, aumentar a utilização de acidos gordos, PPARgamma, imobilização dos acidos gordos, etc…
Sintestase de acido nítrico - promovida a beta oxidação, em vez da glicolise
SIRT1 deacetila e ativa a PGC-1α, que é coativador do FOXO1 (ativa gluconeogénese) e PPARα (ativa oxidação de ácidos gordos), e estimula a biogénese mitocondrial. SIRT1 deacetila e inibe enzimas da glicólise, como a fosfoglicerato mutase (PGAM-1). A disfunção mitocondrial durante o envelhecimento está relacionada com a diminuição de SIRT1 - PGC-1α e SIRT3 (principal deacetilase mitocondrial)
Inter-relações com alterações ao longo do envelhecimento, existe uma ligação entre alterações mitocondriais e alterações epigeneticas:
NAD+ é cofator das sirtuinas, o alfa cetoglutarato é uma molecula que regula a metilação no DNA e histonas e alterações na mitocondria, pode ter efeitos na metilação. A Acetil CoA é usado pelas acetil transferases para as altereações epigenéticas
O metabolismo mitocondrial fornece cofatores e substratos para enzimas epigenéticas (ex: para sirtuínas, α-cetoglutarato para desmetilação do DNA e histonas, acetil-CoA para acetilação).
SIRT1 deacetila e ativa a PPAR-γ (adipócitos), promovendo a mobilização de ácidos gordos, e a eNOS (aumentando NO), promovendo a angiogénese.
A restrição calórica no Homem (6 meses) leva ao aumento de SIRT1, eNOS e número de mitocôndrias em biópsias musculares.
Ativação de FOXO com restrição calórica
Via PI3K na via da metabolização
Estudos em organismos e centenários confirmam a importância destas vias.
Em restrição calórica, observa-se um aumento da sirtuína 1, impulsionado por FOXO3a e AMPK, com a atividade também sendo favorecida por alterações no metabolismo mitocondrial. A sirtuína 1 desempenha um papel crucial na deacetilação de diversas proteínas, influenciando a regulação do NF-κB e a estabilidade genómica. Além disso, ativa a AMPK através da deacetilação da LKB1, com a AMPK também sendo intensificada pelos níveis de AMP em restrição.
AMPK inibe a via mTORC1, suprimindo a via S6 e promovendo a autofagia.
Outro alvo essencial é o Nrf2 (fosforilado pela AMPK), responsável pelas respostas antioxidantes, que transcreve G6PD, GCL e GST.
A AMPK inibe a via do TOR ao inibir (fosforilação) o raptor ou através da ativação de TSC1/2, que inibem a Rheb. Esta inibição pode afetar a AtG1, complexo de iniciação da autofagia, favorecendo este processo.
Ratinhos FOXO3a KO não apresentam aumento da longevidade com restrição calórica.
AMPK ativa o fator Nrf2 (Nuclear Factor like 2), que regula a expressão de genes antioxidantes e de destoxificação (NQO1/2, HO-1, GCLc, G6PD, TKT, Bcl-2, GST, UGT, MRP). AMPK ativa a autofagia através da ativação da TSC1/2 e fosforilação da Raptor, bem como através da ativação da ATG1/ULK1. SIRT1 deacetila ATG5, ATG7, e ATG8, ativando a autofagia.
Miméticos da Restrição Calórica e Nutraceuticos
Metformina, rapamicina, espermidina, aspirina, polifenóis (resveratrol, catequinas, curcumina, apigenina, quercetina, silimarina, EDAG) afetam a AMPK e SIRT1.
Resveratrol estimula a biogénese mitocondrial e aumenta a longevidade em organismos modelo.
Metformina - medicamento utilizado no tratamento do diabetes tipo 2, também demonstrou propriedades relacionadas ao aumento da longevidade e à modulação do metabolismo energético.
Resveratrol, ativador da sirtuina, o primeiro com esta descrição, promove a biogénese mitocondrial, existe muito no vinho tinto. bolos de arroz, mochi com folhas de gengibre, contêm resveratrol (okinawa, shell ginger).
A população de Okinawa: Comem ainda menos calorias que os japoneses, permanecem ativos até bastante tarde, têm receitas contendo Resveratrol de folhas de gengibre.