2. THE AMINO ACIDS
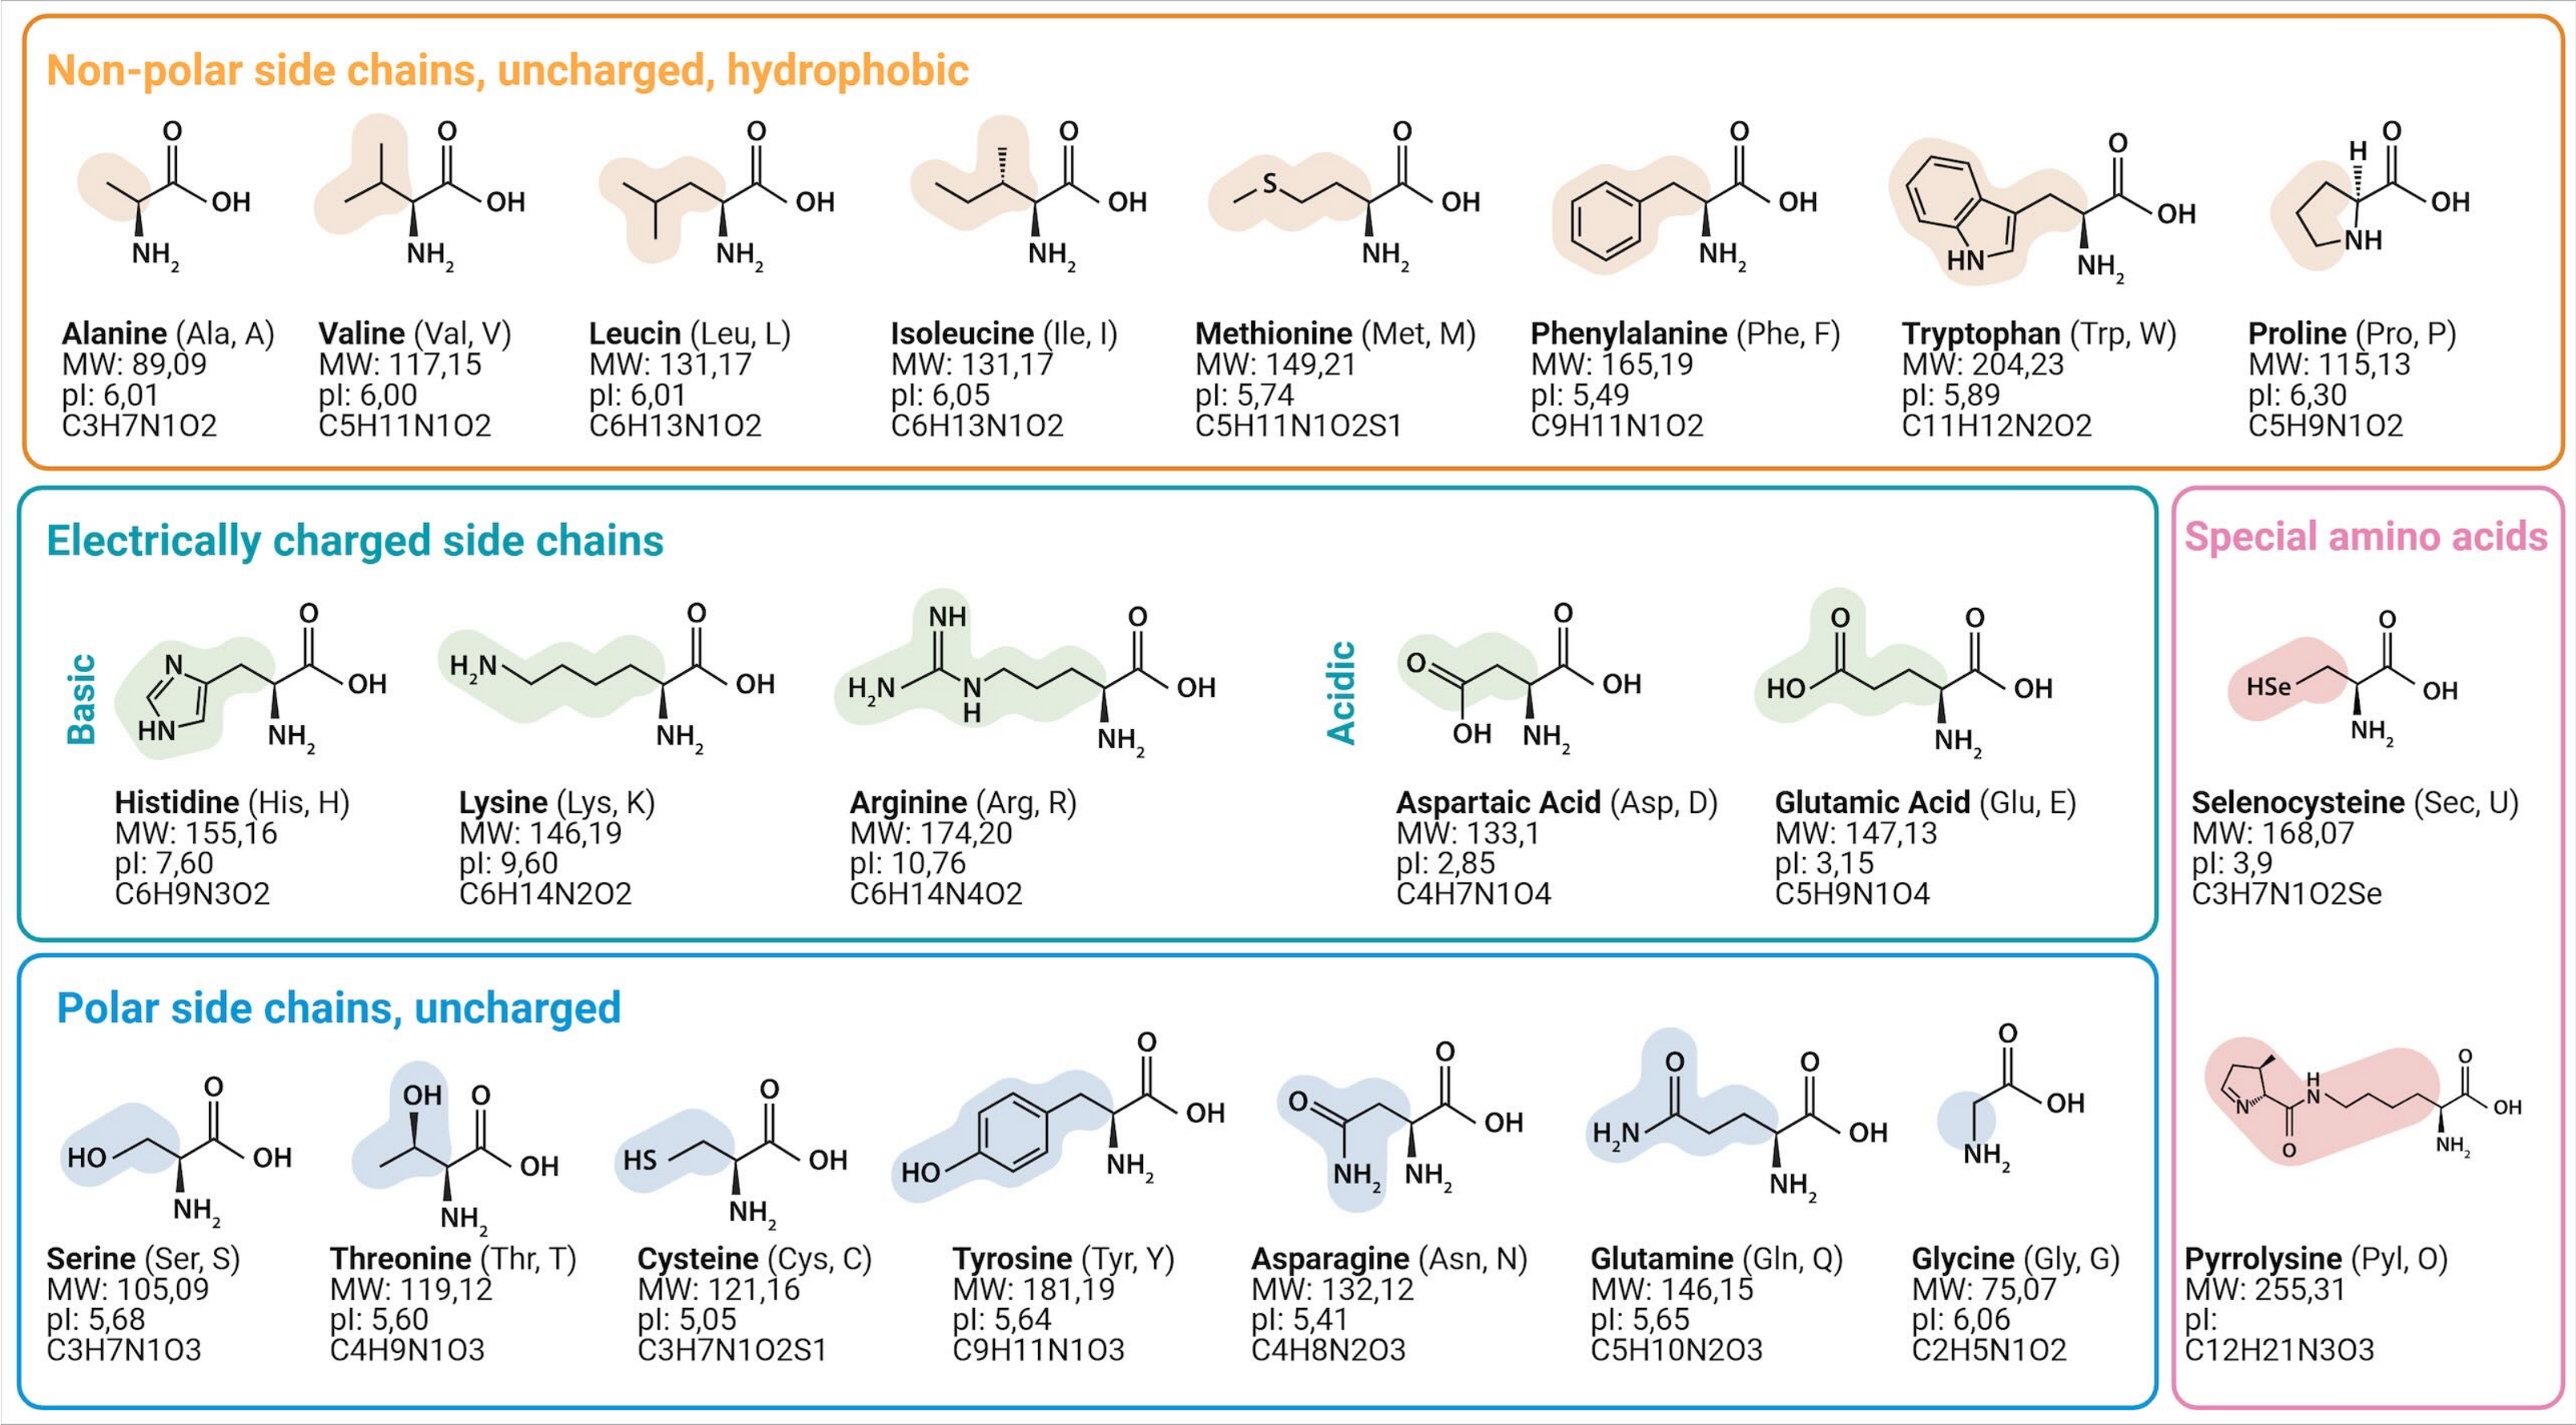
Eiwitten zijn opgebouwd uit L-aminozuren, die via peptidebindingen een lineaire keten vormen. De unieke 3D-structuur en functie van een eiwit worden volledig bepaald door de chemische eigenschappen van de 20 verschillende zijketens (R-groepen), variërend van inert en hydrofoob tot sterk reactief en geladen.
Daarnaast passen cellen deze ketens co- of post-translationeel aan. Gerichte chemische modificaties, zoals fosforylatie, acetylatie en ubiquitinatie, fungeren als moleculaire schakelaars die de activiteit, locatie of afbraak van een eiwit direct aansturen.
Tot slot wordt de uiteindelijke, stabiele driedimensionale werkvorm van het eiwit in stand gehouden door de samenwerking van vier fundamentele, niet-covalente krachten: ionische interacties, waterstofbruggen, vanderwaalskrachten en het hydrofoob effect.
I. De 20 bouwstenen en hun zijketens
Eiwitten zijn opgebouwd uit L-aminozuren, die met elkaar verbonden zijn via peptidebindingen waarbij een watermolecuul wordt afgesplitst. Bij een neutrale pH bestaan vrije aminozuren als zwitterionen (zowel een positieve amine- als negatieve carboxylgroep, in zijn geheel neutraal). De eigenschappen van een eiwit worden volledig bepaald door de chemische aard van de zijketens (R-groepen) van de 20 standaard aminozuren;
Alifatisch (Gly, Ala, Val, Leu, Ile, Pro): Deze zijketens bevatten enkel koolstof en waterstof, zijn hydrofoob en vormen vaak de kern van een eiwit. Proline is speciaal omdat de zijketen een ring vormt met de stikstof van de hoofdketen, wat de flexibiliteit van de eiwitketen sterk beperkt.
Aromatisch (Phe, Tyr, Trp): Tyrosine en tryptofaan absorberen UV-licht (vooral rond 280 nm), wat in het lab gebruikt wordt om eiwitconcentraties te meten.
Hydroxyl en amide (Ser, Thr, Asn, Gln): Deze zijketens zijn polair en vormen gemakkelijk waterstofbruggen, zowel als donor en acceptor.
Zuur en basisch: Aspartaat en glutamaat zijn negatief geladen bij fysiologische pH en fungeren vaak als metaal-chelatoren of in zoutbruggen. Lysine en arginine zijn positief geladen. Histidine is uniek omdat de pKa van de zijketen (rond de 6.4) heel dicht bij de fysiologische pH ligt, waardoor het makkelijk lading kan opnemen en afstaan bij enzymatische reacties.
Zwavelhoudend (Met, Cys): Cysteïne bezit een reactieve thiolgroep die met een andere cysteïne een covalente disulfidebrug kan vormen, wat cruciaal is voor de stabiliteit van extracellulaire eiwitten.
GEHEUGENSTEUNTJES
“Glaciers in Alaska valiently locate isolated prowlers.”
glycine, gly, G
alanine, ala, A
valine, val, V
leucine, leu, L
isoleucine, ile, I
proline, pro, P
“The aroma of fine pine and yellow timber are worth the trip.”
fenylalanine, phe, F
tyrosine, tyr, Y
tryptofaan, trp, W
“Basically, his lost kid always returned.”
histidine, his, H
lysine, lys, K
arginine, arg, R
“Alcohol is a serious threat.”
serine, ser, S
threonine, thr, T
“Methodically check path for sulfur.”
methionine, met, M
cysteïne, cys, C
“As Peter digested the glue, his stomach became acidic.”
asparaginezuur, asp, D
glutaminezuur, glu, E
“Amid this neatly stacked asparagus, is a glutinous quail.”
asparagine, asn, N
glutamine, gln, Q
INVLOED pH
AZ’en dragen afhankelijk van de pH een andere lading omwille van (de)protonatie;
lage pH → H+ in overvloed → groepen geprotoneerd
hoge pH → H+ “tekort” → groepen gedeprotoneerd
pH = pkz → 50% gedeprotoneerd
pH < pkz → meer geprotoneerd
pH > pkz → meer gedeprotoneerd
Conclusie; Bij verlagen v/d pH kunnen AZ’en enkel meer geprotoneerd worden en dus ook enkel maar negatieve lading verliezen.
Henderson-Hasselbalch; pH = pkz + log([A-]/[HA])
pkz is dus de pH waarbij [A-] = [HA], beiden zijn dus 50% aanwezig (in theorie)
ken je pkz, dan weet je wanneer helft lading verloren is
ken je pH waarbij helft lading verloren is, dan weet je pkz
CATEGORIEËN
POLAIR GELADEN
+ → basische; histidine + lysine + arginine
- → zuren; asparaginezuur + glutaminezuur
POLAIR ONGELADEN
alcoholen; serine + threonine
-OH / -SH; tyrosine + cysteïne
amiden; asparagine + glutamine
APOLAIR
overige
POLYPEPTIDEKETEN
ruggengraat van peptidebindingen tussen;
O van C=O (AZ1)
H van NH2 (AZ2)
NH3+ — “RON” — “RON” — … — “RON” — “RON” — RO — O-
R; zijketen op Cα
O; =O
N; NH
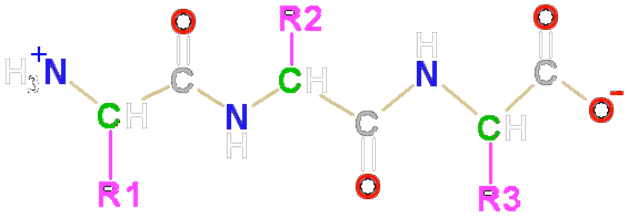
N-terminus (links); C-terminus (rechts)
II. Modificaties
Aminozuren kunnen zowel tijdens (co-translationeel) als na (post-translationeel) de eiwitsynthese worden aangepast om de functie van het eiwit te sturen.
N-terminale acetylatie: Eiwitten krijgen co-translationeel vaak een acetylgroep op hun N-terminus door NAT-enzymen. Dit neutraliseert de positieve lading en speelt een rol in eiwit-eiwit interacties, lokalisatie en de levensduur van een eiwit (de N-end rule).
Lysine-acetylatie: Het toevoegen van een acetylgroep aan lysine (door KAT-enzymen) verwijdert de positieve lading. In de celkern zorgt dit ervoor dat histonen het negatief geladen DNA loslaten, waardoor genen actief afgelezen kunnen worden (actief chromatine).
Fosforylatie: Dit is de ultieme moleculaire aan/uit-schakelaar voor celsignalering. Kinases verbruiken ATP om een negatief geladen fosfaatgroep op de hydroxylgroep van Ser, Thr of Tyr te plaatsen, terwijl fosfatasen deze weer verwijderen.
Ubiquitinatie: Via een enzymatische cascade (E1, E2, E3) wordt het kleine eiwit ubiquitine covalent via een isopeptidebinding aan een lysine van een doeleiwit gekoppeld. Een specifieke keten (poly-ubiquitinatie, zoals K48) markeert het eiwit voor vernietiging in het proteasoom, maar andere ketens sturen processen zoals DNA-herstel of endocytose.
ACETYLATIE
= toevoegen acetylgroep (R-CO-CH3) aan NH van;
N-terminaal AZ — α-NH2
lysine (K) — ε-NH3+ zijgroep
FOSFORYLATIE
= toevoegen fosfaatgroep (PO32-) aan O van;
serine (S) — OH
threonine (T) — OH
tyrosine (Y) — OH
UBIQUITINATIE
= toevoegen van ubiquitine (klein regulerend eiwit van 76 aminozuren) aan NH van;
lysine (K) — ε-NH3+ zijgroep (via een isopeptidebinding)
Functie: Vaak dient het als een label voor eiwitafbraak (polyubiquitinatie markeert het eiwit voor vernietiging door het proteasoom). Het kan ook dienen voor eiwit-eiwit interacties, signaaltransductie of DNA-herstel (monoubiquitinatie).
Mechanisme: Dit gebeurt via een specifieke enzymcascade in 3 stappen: E1 (ubiquitine-activerend enzym), E2 (ubiquitine-conjugerend enzym) en E3 (ubiquitine-ligase). Vooral E3 is bepalend voor de specificiteit (welk eiwit het label krijgt).
III. De vier krachten achter de 3D-structuur
Zodra de keten gevormd is, vouwt deze op basis van niet-covalente interacties;
Ionische interacties: Aantrekkingskracht tussen tegengesteld geladen zijketens.
Waterstofbruggen: Sterk afhankelijk van de juiste bindingshoek en afstand. Deze bruggen tussen de atomen in de eiwit-backbone definiëren de secundaire structuur.
Vanderwaalskrachten: Zeer zwakke krachten die pas werken als atomen extreem dicht bij elkaar komen (sterische complementariteit). Binnenin een opgevouwen eiwit zijn er duizenden van deze interacties, wat zorgt voor een stabiele, massieve kern.
Hydrofoob effect: De ware aandrijvingskracht achter eiwitvouwing. Watermoleculen willen hun entropie maximaliseren en duwen daarom hydrofobe eiwitketens naar binnen, weg van het water.
IONISCHE INTERACTIES
= elektrostatische interactie tussen geladen groepen
~30 kJ/mol
aantrekkingskracht gegeven door wet v. Coulomb
afhankelijk van omgeving, diëlektriciteitsconstante = D
belangrijk voor stabilisatie op afstand;
helix-stabilisatie bij juiste afstand en oriëntatie
van oppervlakken en lusstructuren in eiwitten
indien naast ionaire interacties ook nog een waterstofbrug aanwezig is, spreken we van zoutbrug
WATERSTOFBRUGGEN
EIGENSCHAPPEN
~20 kJ/mol
donor; H moet covalent gebonden zijn aan N, O, F of S → H (δ+)
acceptor; bevat N, O, F of S mét vrij elektronenpaar
niet sterk an sich;
lineaire > niet-lineaire
maar grote aantallen zorgen wel voor stabilisatie
individuele bindingen kunnen snel breken, maakt aanpassing aan snel veranderende omgeving mogelijk
α-helix
elke C=O van residu i vormt een waterstofbrug met de N–H van residu i+4
→ ontstaan regelmatig intern H-brug-patroon (// helix-as) → stabilisatie helix

β-sheet
H-bruggen vormen zich ⟂ tussen verschillende ketens = strands
antiparallel; rechtlijnigere, sterkere H-bruggen → stabieler
parallel; iets schever, iets zwakker → minder stabiel

turns / loops
β-turns maken meestal een H-brug tussen residu i en i+3
→ stabiliseren scherpe bochten in de backbone
VAN DER WAALS KRACHTEN
~4.2 kJ/mol
kortdurend
afhankelijk van afstand zijn ze;
afstotend indien “te dichtbij” = r < vdW radius
aantrekkend indien “te ver weg” = r > vdW radius
F = maximaal wanneer r = vdW radius
we onderscheiden 3 types;
dipool-dipoolinteracties
permanente dipool ←→ permanente dipool
opm; waterstofbinding is bijzonder sterke vorm van deze interactie
AZ;
N-terminus = gedeeltelijk positief → stabilisatie door negatieve groepen
C-terminus = gedeeltelijk negatief → stabilisatie door positieve groepen
dipool-geïnduceerde dipoolinteracties
permanente dipool ←→ geïnduceerde dipool (apolair deel)
AZ;
stabilisatie van (a)polaire interacties in de secundaire en tertiaire structuur
geïnduceerde dipool-geïnduceerde dipoolinteracties → Londonkrachten = dispersiekrachten
geïnduceerde dipool ←→ geïnduceerde dipool
AZ;
α-helix; dicht opeengepakte zijketens = “helix packing”
β-sheet; zijketens steken alternerend boven/onder de sheet → optimale packing tegen naburige sheets
HYDROFOOB EFFECT
Apolaire stoffen lossen niet spontaan op in water; proces
is thermodynamisch ongunstig
en vereist energie.
Thermodynamica — ΔG = ΔH - TΔS
Watermoleculen binden constant aan elkaar via waterstofbruggen. Wanneer er een apolaire molecule in het water belandt, kan deze zelf geen waterstofbruggen vormen. De watermoleculen reageren hierop door een strakke, sterk geordende "kooi" rond de apolaire stof te bouwen om toch hun onderlinge waterstofbruggen te kunnen behouden. Dit zorgt ervoor dat de watermoleculen in die kooi veel bewegingsvrijheid verliezen, wat energetisch erg ongunstig is (een grote daling in entropie).
Oplossen apolaire stof: Watermoleculen moeten zich sterk ordenen rondom de apolaire molecule. Dit geeft een groot verlies aan entropie (ΔS < 0).
Wanneer de apolaire moleculen vervolgens samenklitten, verkleint hun totale contactoppervlakte met het water aanzienlijk. Omdat er nu een veel kleinere waterkooi nodig is om de samengeklitte groep te omsluiten, komen veel vastzittende watermoleculen weer vrij in de oplossing. Ze krijgen al hun bewegingsvrijheid terug. Deze enorme winst in entropie voor het water is de werkelijke, thermodynamische aandrijving van het hydrofoob effect.
Hydrofoob effect: Apolaire moleculen aggregeren (klitten samen). Het contactoppervlak met water verkleint, waardoor sterk geordende watermoleculen terug vrijkomen.
Conclusie
Het proces is entropisch gedreven. De entropiewinst van het vrijgekomen water is veel groter dan het entropieverlies van de samenklittende apolaire moleculen.
Toepassing — belang voor AZ & eiwitten
Drijvende kracht achter eiwitvouwing en stabiliteit.
Hydrofobe zijketens plooien naar binnen (weg van water) en vormen hydrofobe kern.
Essentieel voor de opbouw van α-helices en β-sheets (vb. in β-sandwiches).