Truncus communis
Hfdstk 1: Inleiding tot het immuunsysteem
Terminologie
Antigeen (Ag): molecule die bindt aan antilichaam of aan T-cel receptor (TCR)
Antilichaam (Al) = antistof (As) = immunoglobuline (Ig): glycoproteine, geproduceerd door B cellen en die antigenen bindt
Cytokinen: eiwitten die erg belangrijk zijn in communicatie tussen cellen immuunsysteem. Vele versch cellen kunnen cytokinen aanmaken, kunnen op versch manieren ingedeeld
Belang immuunsysteem
Verdediging tegen infecties
Invasie
Vermenigvuldiging
Verspreiding in lichaam
Ziekteverwekking
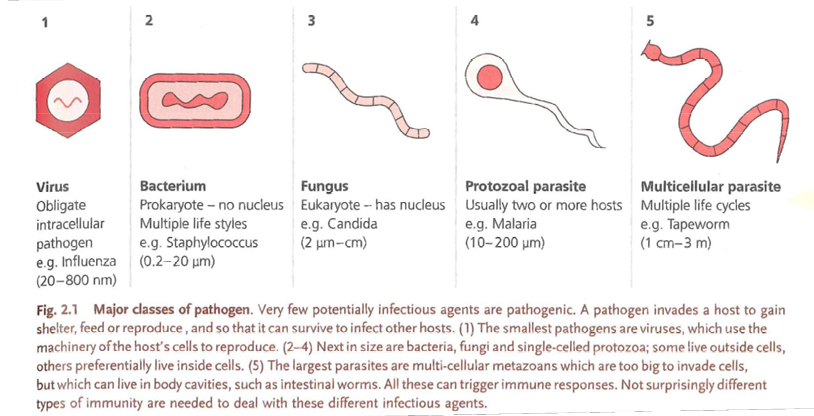
Virussen, bacteriën, fungi (gisten en schimmels), protozoaire parasieten, multicellulaire parasieten (vb helminthen)
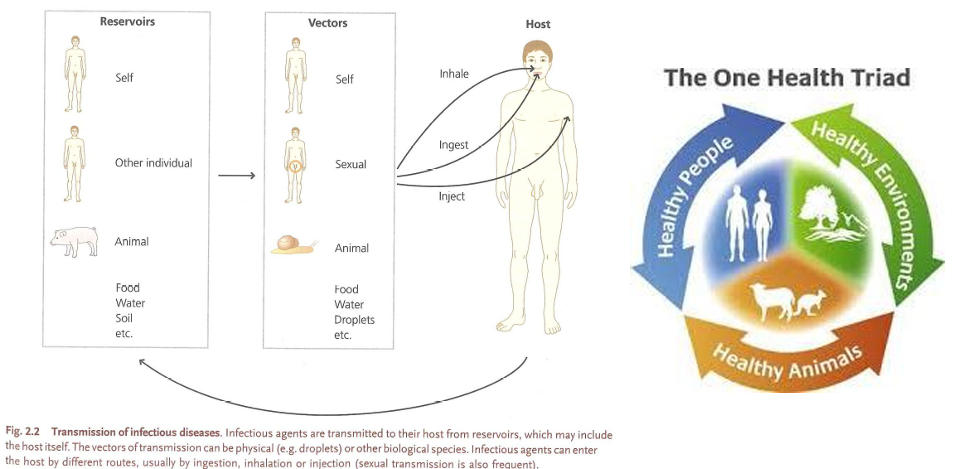
binnendringen pathogenen
Respiratoire mucosa (bv influenza)
GI mucosa (bv salmonella)
Wond (bv clostridium tetani)
Insectenbeet (bv plasmodium)
Intacte huid (bv hoekworm)
IV druggebruik, sexueel contact, … (bv hepB, HIV)
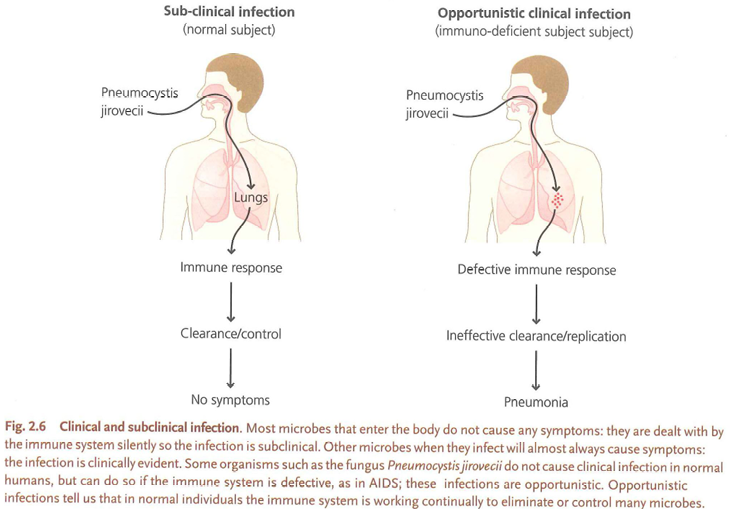
Fungi bij gewone mensen geen symptomen geven-> infectie sub-klinisch
Immuunrespons ->klaring / controle ->geen symptomen
Immuno-defficient persoon: immuunsysteem niet goed werken of onderdrukt (gesuprimeerd)
Fungi infecteren ->te traag of geen immuunrespons ->geen volledige klaring ->repliceren fungi ->pneumonia
=Opportunistisch
Fysiologisch belang immuunsysteem
Verdediging tegen infecties
Verdediging tegen tumoren
Weefselregeneratie en littekenvorming
Immuunpathologie: falen van immuunsysteem
Normale immuunrespons als “probleem”: bij transplantatie en gentherapie
Transplantatie: normale reactie, maar komt niet goed uit ->graag dat het aangenomen word en niet afgestoten
Gentherapie: nieuw eiwit aanmaken ->niet gekend eiwit ->immuunrespons opwekken
Seroconversie: vormen antilichamen tegen antigenen
Immuunsysteem als bron antilichamen. Al en afgeleiden gebruikt als zeer specifieke componenten
In vitro als reagens in onderzoek en diagnostiek
In vivo als geneesmiddelen
Aangeboren en Adaptieve immuniteit
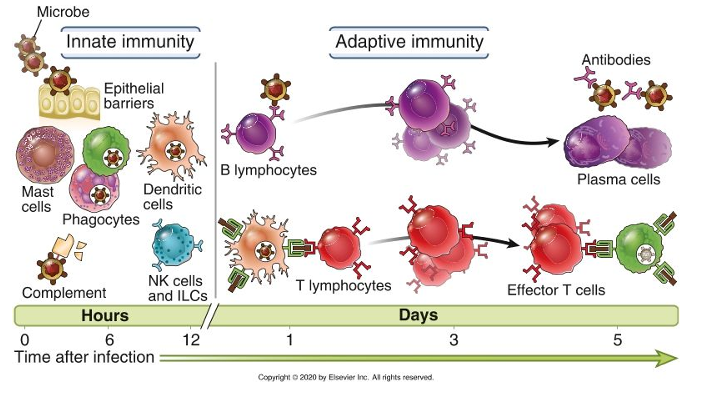
Innate immunity: aangeboren immuunsysteem
Epitheel: 1ste verdediging zodat ze niet zomaar kunnen binnendringen
Fagocyten: groep cellen die micro-org kunnen opnemen (neutrofielen, monocyten)
Dendritische cellen: vangen van antigenen en opnemen
ILC = innate lymfoid cells, lymfoid achtige cellen van aangeboren immuunsysteem
Adaptieve immuniteit: opbouwen nadat antigeen herkennen
Herkenning gebeurt door receptor op b cellen: membraangebonden antilichaam gesecreteerd
In het begin nog geen gesecreteerd antilichaam, pas na enkele dagen
T lymfocyten: antigeen herkennen en binden ->getoond en gepresenteerd door bv dendritische cel (effector functies, kunnen monocyten helpen)
Aangeboren = niet specifieke immuniteit
Adaptieve = specifieke = verworven immuniteit
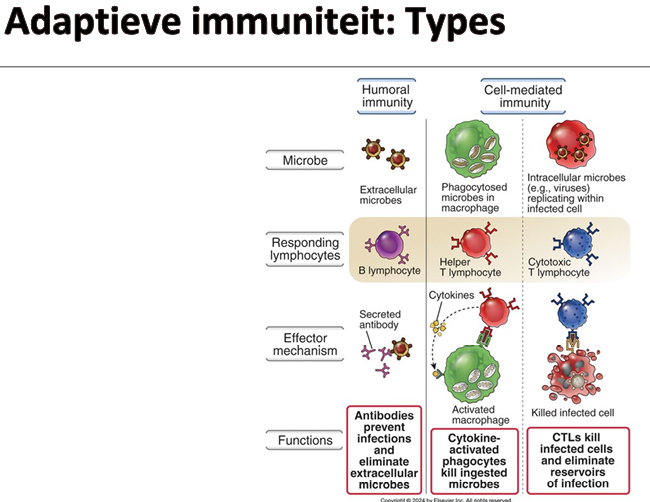
Humoraal: immuniteit in vloeistof (humor) →bescherming overdragen door vloeistof overdragen
Enkel door b cellen aangemaakt!
Antilichamen rol bij extracellulaire micro org
Gesecreteerd ->niet intracellulair kunnen binden, enkel extra-cellulair
Vermijden en verhinderen extra cellulaire infecties
Cell gemedieerd: intracellulair
Macrofaag-> micro org opnemen ->niet op zichzelf micro org doden, dus helper T cel nodig
Helper t cel interageren met macrofaag ->cytokines afscheiden ->macrofaag activeren -> intracellulaire micro org opruimen
Bij virussen belangrijk ook reservoirs opruimen: cytolytische t cellen (=cytotoxische t cellen) ->infecteerde cel herkennen want heeft deeltjes van antigenen van virussen toont ->granules uitstoten naar infecteerde cel en opruimen van gehele reservoir
Actieve vs passieve immuniteit
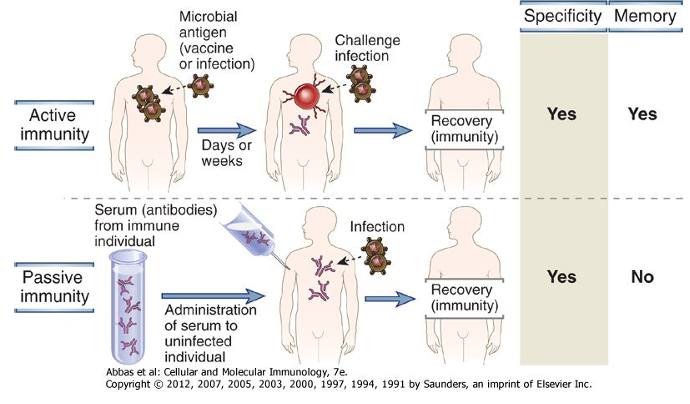
Specificiteit: gericht op een specifiek microbe
Geheugen niet opbouwen: antilichamen tijdelijk overleven
Geheugencellen ontwikkelen bij persoon 1: gaan geheugen krijgen, levenslang in lichaam blijven (in rust zitten in beenmerg)
Passieve immuniteit: onmiddellijke bescherming, kortdurend (~ weken)
Actieve immuniteit: vertraagde bescherming, vaak langdurend (~ jaren, kan geboost worden)
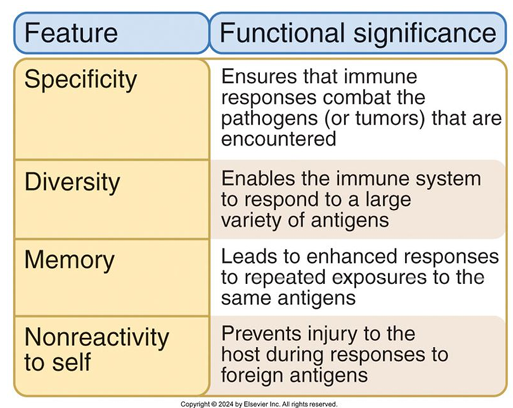
Adaptieve immuunrespons: Eigenschappen
Klonale selectie
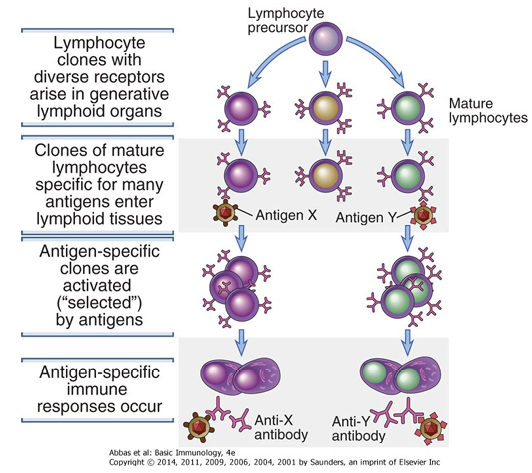
Lymfatische precursoren, tijdens ontwikkeling receptoren krijgen
Antilichamen maken = b cel
Versch klonen met antilichamen op membraan met versch specificiteit -> binden elks ander antigeen
Rijpe lymfocyten: in lymfatisch weefsel ->antigeen tegenkomen
2 microben: x en y
Lymfocytkloon kan of kan niet getriggert worden
Diegene die antigeen binden = getriggert ->gaan prolifereren -> antigeenspecifieke immuunrespons ->differentieren tot plasmacellen (celkern niet in midden, veel aanmaak antilichamen)
Specificiteit en geheugen
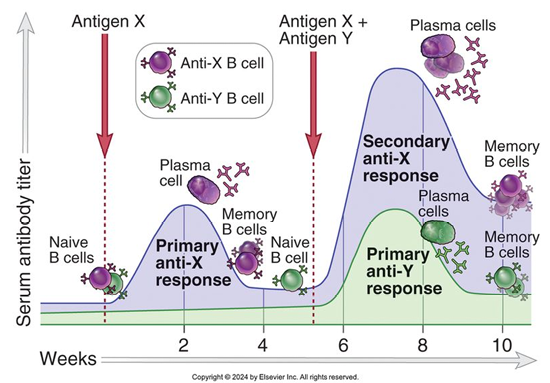
Y-as: serum antilichaam titer (=maat voor concentratie AL)
Moment 0: antigen x krijgen, naieve b cellen geactiveerd (met receptor) ->vermenigvuldigen ->AL secreteren in serum ->na 3-4w concentratie terug naar beneden
Moment 5w: b cellen geheugen gevormd van X ->sneller reageren en meer aanmaken
Intensere en snellere piek van AL x
Er is een geheugen gemaakt
Wanneer booster geven x en hiermee ook antigen y: respons tegenover antigen y = primaire respons = respons voor 1ste keer optreden ->lagere concentratie en tragere respons, hierna pas geheugen maken
Geheugen is specifiek
Veestapel vaccineren: hoeveel % na 10-11w min niveau AL? zijn geseroconverteerd
Cellen van immuunsysteem: overzicht
Meeste cellen in immuunsysteem en alle WBC < hematopoëtische stamcellen
Rijping immuuncellen: belang
Cel-cel contact
Oplosbare groeifactoren , behorende tot cytokine familie
Belang oppervlaktemoleculen als merkers
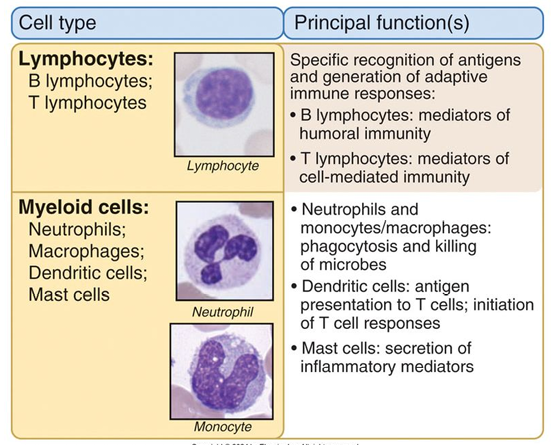
Overzicht WBC = leukocyten
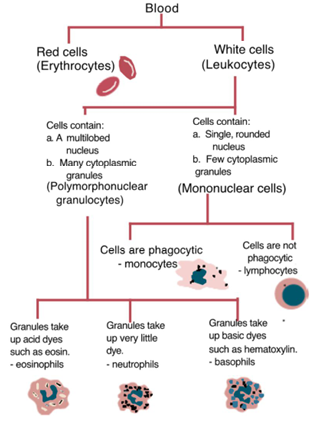
WBC onderverdeeld in polymorfonucleairen granulocyten (gelobde kern, granulen) en mononucleaire cellen
PMN: eosinofielen, neutrofielen, basofielen (basische kleurstof)
Mononucleaire: lymfocyten (b, t cellen), grotere monocyten (fagocyteren)
PMBC: monocyten, lymfocyten
Bloed en zijn componenten
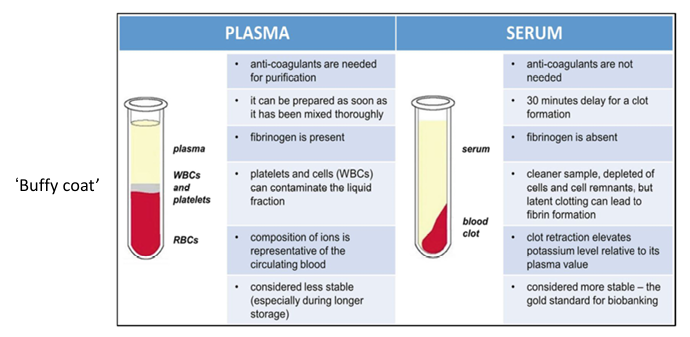
Plasma = vloeibare, gele gedeelte van bloed dat overblijft nadat bloedcellen zijn verwijderd, maar voordat het bloed is gestold.
Het bevat water, elektrolyten, eiwitten (zoals albumine), stollingsfactoren (bijv. fibrinogeen), hormonen, voedingsstoffen en afvalstoffen.
Serum = vloeibare deel dat overblijft nadat het bloed is gestold en het stolsel is verwijderd.
Het is dus vergelijkbaar met plasma, maar zonder stollingsfactoren (zoals fibrinogeen), omdat die zijn opgebruikt bij de stolling.
Plasma = met stollingsfactoren
Serum = zonder stollingsfactoren
Anti-coagulantia: EDTA, Citraat, Heparin, …
Lymfocyten
= Weinig spectaculaire, ronde mononucleaire leukocyten
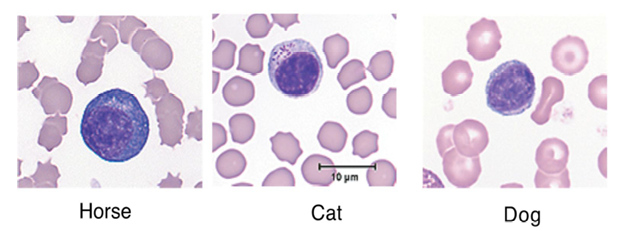
Omvatten vele versch subpopulaties die niet kunnen onderscheiden worden door hun vorm, grootte of morfologie
Klassen:
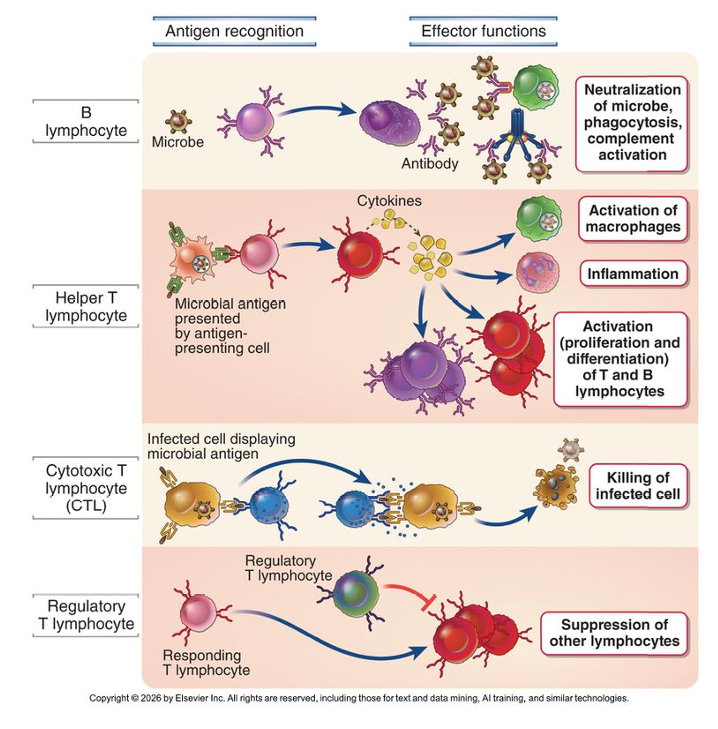
B cellen: gestimuleerd ->cel antilichamen secreteren
Helper t cel (b cellen helpen), secretie van cytokines
Cytotoxische t cellen: andere cellen doden, granules uitstoten
Regulerende t cellen: immuuncellen onderdrukken
regulatoire T-lymfocyt (Treg) heeft als hoofdfunctie: het afremmen en controleren van immuunreacties, zodat het immuunsysteem niet te sterk reageert.
Immunologisch doen Tregs dit door:
remmende cytokinen af te geven, zoals IL-10 en TGF-β
de activiteit van andere T-cellen te onderdrukken
B-cellen en antigeen-presenterende cellen af te remmen
ervoor te zorgen dat het immuunsysteem tolerantie voor lichaamseigen weefsels behoudt
Belangrijkste functies:
voorkomen van auto-immuunreacties
beperken van overmatige ontsteking
de immuunrespons beëindigen zodra een infectie onder controle is
Overzicht rijping en bestemming:
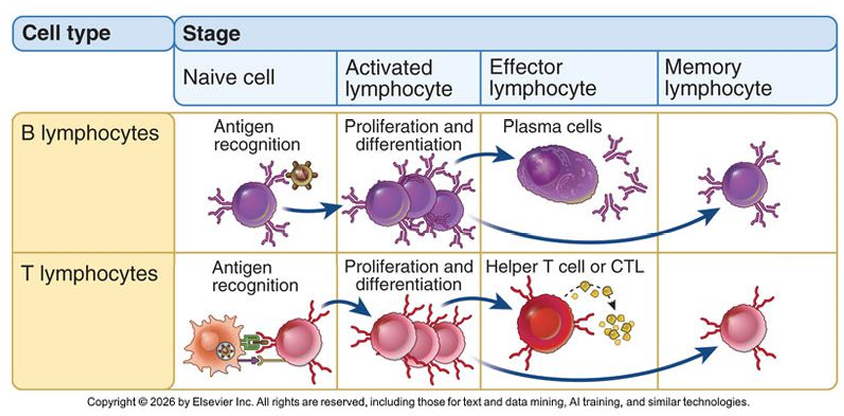
Naieve cel: celrijp maar nog niet antigen heeft ontmoet
Geactiveerde lymfocyt: antigen tegengekomen ->actief, bezig met verdedigen
Na activatie niet allemaal heel actief bezig, maar bewaart als geheugencel
Antigeenherkenning door lymfocyten
Antigenen: moleculen/structuren herkend door TCR of antilichamen (als BCR of in oplossing)
B-cel: herkent vaak intacte antigenen
T-cel: herkent antigen fragmenten aan oppervlak van andere cel (=antigeen presenterende cel)
Dendritische cellen kunnen heel goed antigenen presenteren
Karakteristieken van naïeve, effector en geheugen lymfocyten
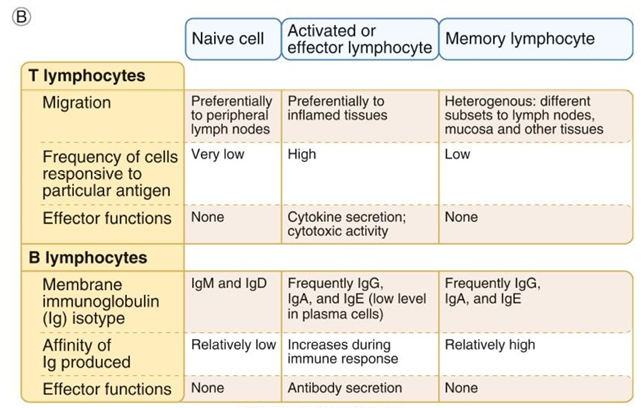
Lymfocyten migreren doorheen lichaam
Naive gaan anders migreren dan geactiveerde
Naive cellen graag zitten in perifere lymfeknopen
Geactiveerde cellen graag naar plaatsen infectie en inflammatie
Op moment activatie: klonaal expanderen , frequentie hoog
Bij naive heb je een lage frequentie
Geheugencellen wachten gewoon
Affiniteit: hoe sterk bind antilichaam aan antigeen
Gemiddeld relatief lage affiniteit
Tijdens immuunantwoord verhoogd affiniteit
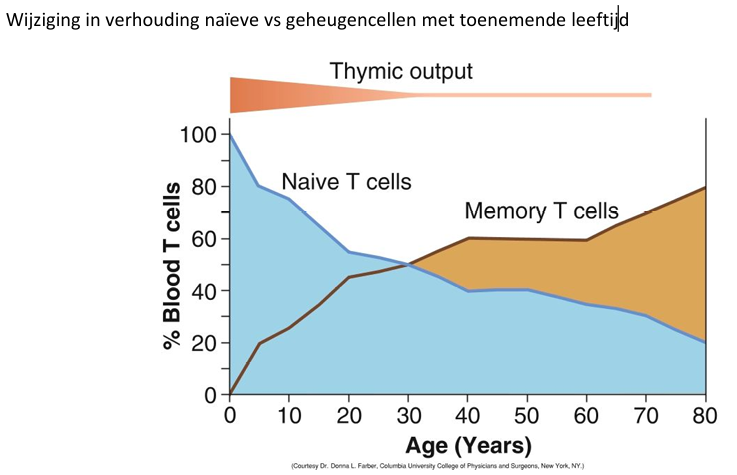
Morfologisch lijken vele cellen op elkaar: onder lichtmicroscoop zijn naïeve B en T-cellen niet te onderscheiden. Hoe gaan we ze karakteriseren?
Overzicht Clusters of Differentiation = CD system en techniek Flow Cytometrie genoemd
Te kennen CD merkers Hfdstk 1
CD3: component van T-cel Receptor complex
CD4: merker van een subpopulatie van T-cellen, de T- helpercellen
CD8: merker van cytotoxische of cytolytische T-cellen
CD19, CD20: B cel merkers
CD11/CD18: adhesie molecule op meeste leukocyten
CD28: costimulatie molecule op T cellen
Flowcytometrie en celsortering
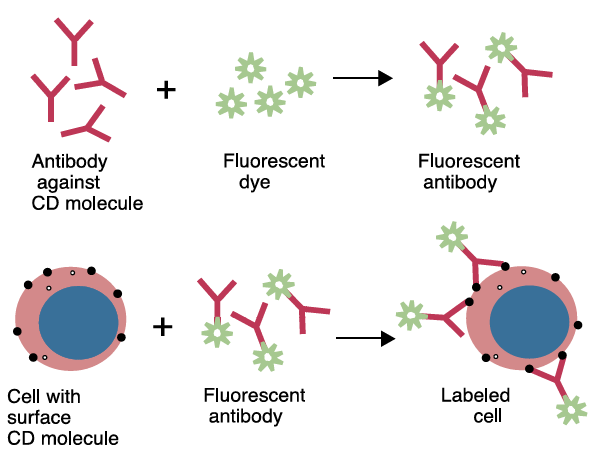
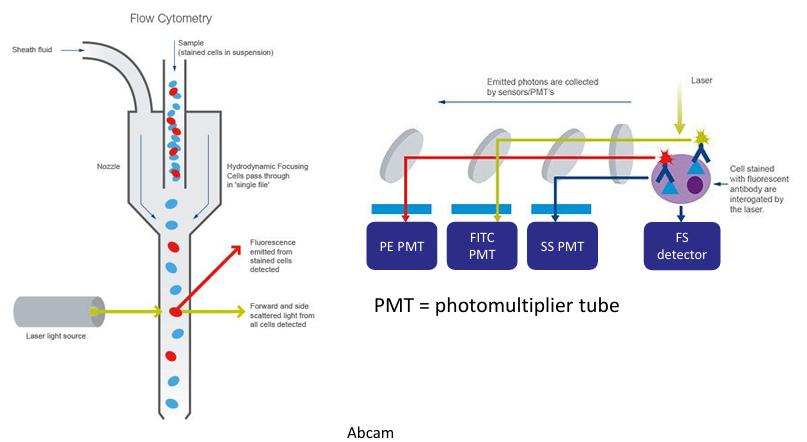
Mengsel een voor een in vloeistofstroom voorbij laser sturen ->exciteren -> fluorescentie aflezen
Partiekels ook scatteren: grootte en intra-cellulaire granulariteit
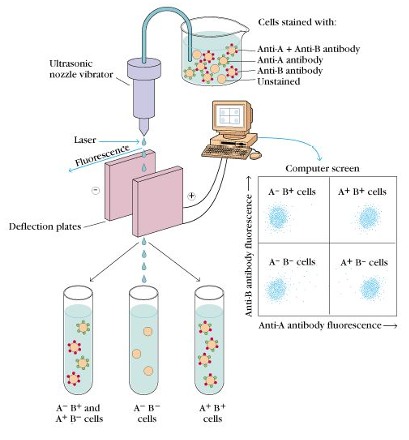
Cellen sorteren ->apart kunnen bestuderen
Flowsortering
Scatterplot: elk stipje = cel
Lymfocyten kenmerken en CD merkers
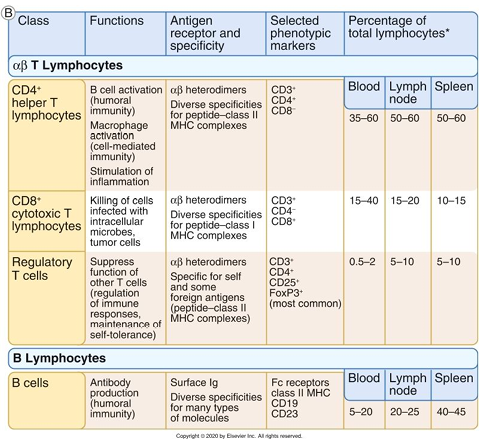
Resultaat van karakteristieken
Voor bep subpopulaties t cellen: helper cellen CD4 positieve ->geselecteerde fenotypische markers
Te laag worden cd4: niet meer kunnen verdedigen immuunsysteem
Hiv patienten opvolgen cd4 aantallen ->verminderen betekent dat er infectie is
Alfa en beta t lymfocyten: duid op ketens waar t cel is opgebouwd
Mens: alfa en beta belangrijkste
Bij sommige diersoorten gamma delta belangrijker
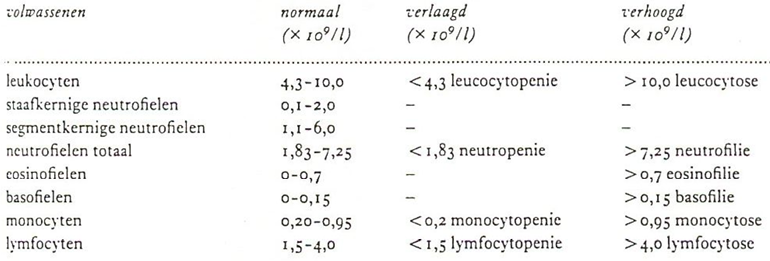
Terminologie gewijzigde WBC aantallen
Functionele indeling van cellen betrokken bij immuunrespons
Lymfocyten: specifieke antigeen herkennende cellen
Antigeen presenterende cellen: dendritische cellen, T cellen
Effector cellen
Fagocyterende cellen (neutrofielen, macrofagen, monocyten)
Cytotoxische = cytolytische cellen (cytotoxische t cellen, NK cellen)
Organen en Weefsels van het immuunsysteem”
Generatieve = centrale = primaire lymfatische organen (rijping)
Perifere = secundaire lymfatische organen (contact met antigeen)
Lymfocytenrecirculatie: migratie van naïeve en effector T-cellen
Cutane immuunsysteem
Mucosale immuunsysteem
Lymfatische Organen en Weefsels vormen het Lymfatisch systeem
Discrete omkapselde organen
Accumulaties van diffuus lymfatisch weefsel
Lymfevaten
Lymfatische organen en hun functies bij vertebraten
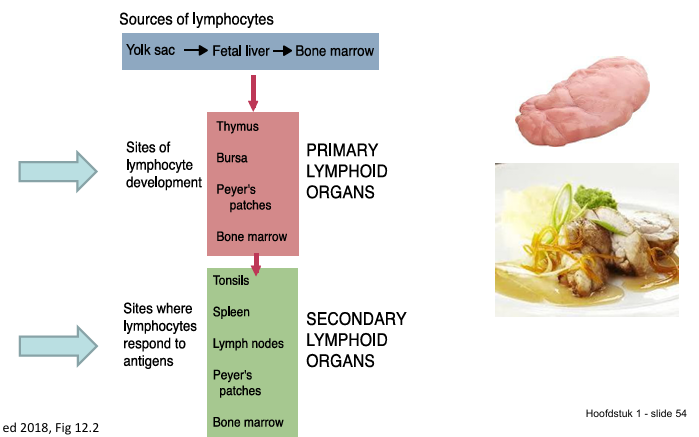
Vroeg in dooierzak gevormd
Hoe ouder feutus, hoe meer beenmerg rol krijgt
Primaire lymfatische organen: plaatsen van lymfocytontwikkeling (rijping voorloper tot naief)
Thymus, bursa (vogels, ontwikkeling b cellen), platen van peyer (thv darmen, sterk verschillend ook in rol, bij mens niet belangrijk bij primair), beenmerg
Secundair lymfatische organen: immuunresponsen plaatsvinden
Amandelen, milt, lymfeknopen, beenmerg en platen van peyer (afh species)
Belangrijke lymfatische organen en weefsels
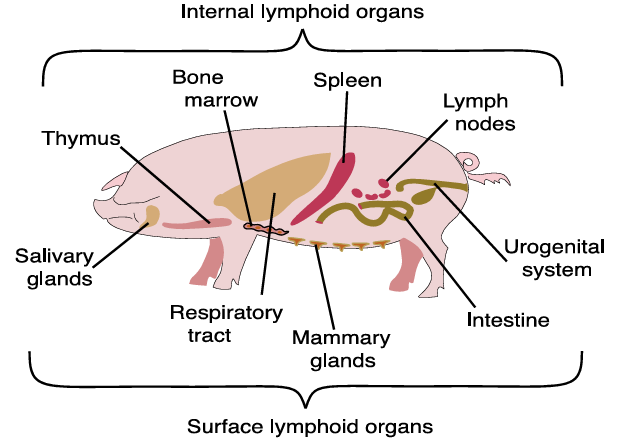
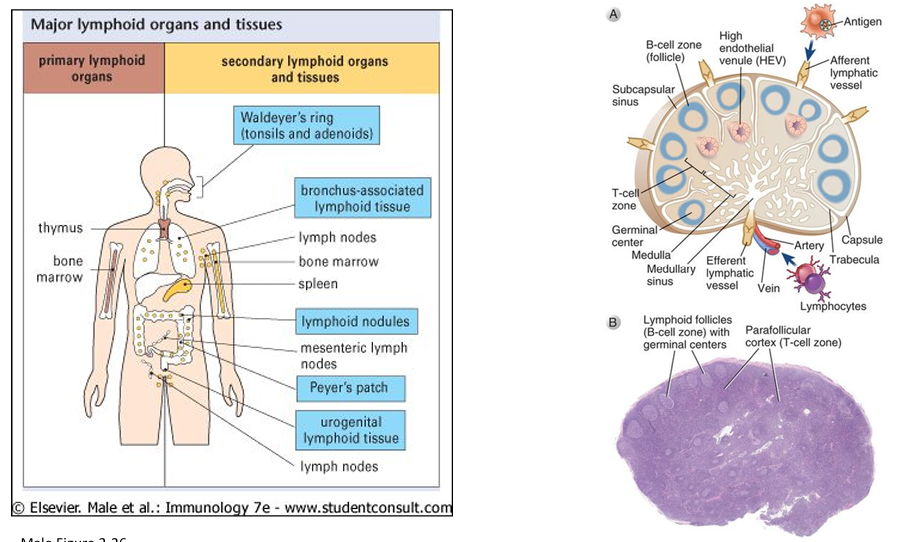
Balt: broncheo-associated lymfoid tissue
Mucosale associaties lymfatisch weefsel
Lymfeknopen
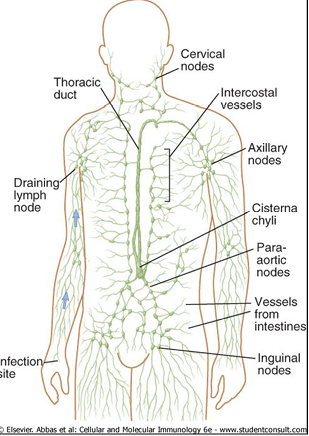
Lymfatisch systeem
=netwerk van lymfevaten draineert en filtreert interstitiële vloeistof
Lymfevaten brengen Ag van hun toegangspoort naar de lymfeknopen
Lymfeknopen (= lymfeklieren) verzamelen en concentreren Ag aanwezig in weefselvloeistof
Ze filtreren lymfe aangevoerd via afferente lymfevaten
Morfologie van Lymfeknopen
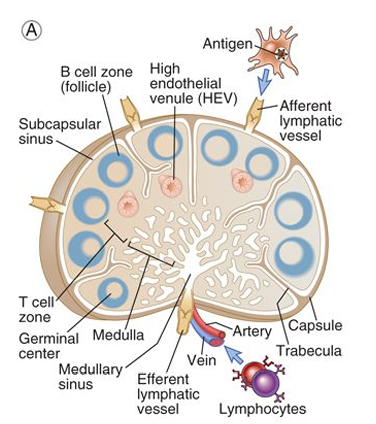
This schematic diagram shows the structural organization and blood flow in a lymph node.
Omkapseld orgaan
Via afferente lymfatische weefsels antigen binnenkomen, kan ook gepresenteerd worden door dendritische cel ->binnenkomen
Witte cirkels: kiemcentra, geactiveerde b cellen
Follikels (blauw): rijping b cellen
T cellen zitten onder de b cellen
Efferent lymfatisch bloedvat en arterie / vene
Thv lymfeknopen speciale kleine vaten met specifiek endotheel (high endothelial venue): cellen makkelijk binnendringen in lymfeknoop
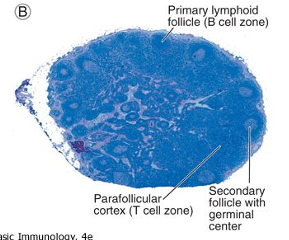
This light micrograph shows a cross section of a lymph node with numerous follicles in the cortex, some of which contain lightly stained central areas (germinal centers), and the central medulla.
T- en B cel zones in lymfeknopen
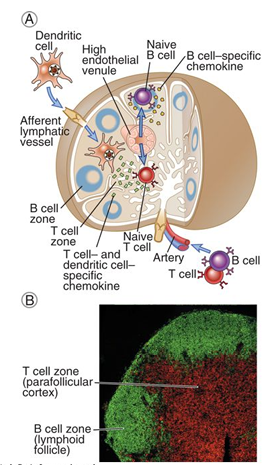
Naive t cel kan binnenkomen
Chemokines: Groep cytokines die cellen aantrekken met hoge concentratie cytokines
CCL, CXCL
Binden met chemokinereceptor: CCR, CXCR
Migratie van cellen zodat ze elkaar kunnen vinden en activeren is belangrijk! Chemokines en receptoren
Milt
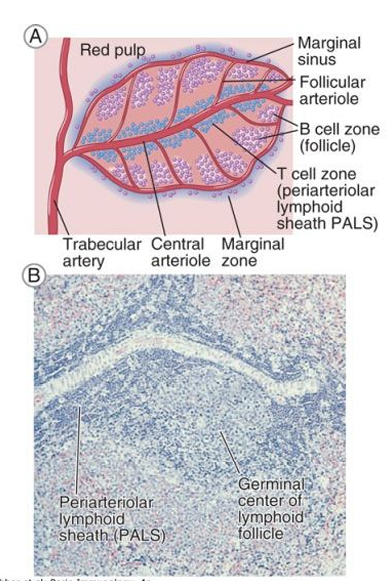
Structuur
Rode pulp: bevat veel bloed (in sinussen ) en veel macrofagen
Witte pulp: sterk georganiseerde regio met veel lymfocyten (Periarteriolar lymfoid sheats PALS )
Marginale zone
Bevat vele B cellen en dendritische cellen (IgM productie, APC)
Hier gereguleerde migratie lymfo’s
Functies
Verwijderen van oude RBC uit circulatie
Fe recyclage
Vangen en presenteren circulerende Ag (micro-org en celdebris)
Brug tussen adaptief en aangeboren immuunsysteem
Cutane immuunsysteem
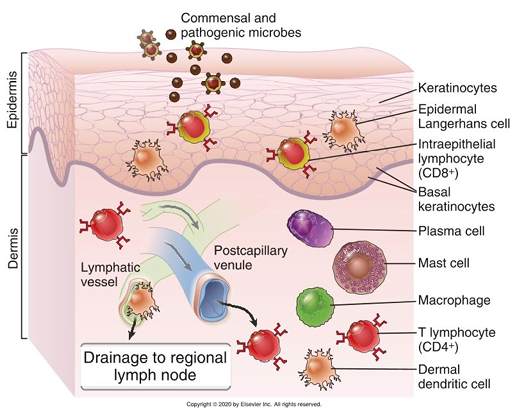
In epidermis epidermale langerhandscellen (dendritische cellen in de huid)
Lymfocyten: intra-epitheliale lymfocyten, meeste CD8 pos (cytotox)
Andere kenmerken, onderscheiden van circulerende cellen
Dermis: lymfevaten, venules, plasmacellen (differentieerde b cellen), macrofagen, t cellen, dendritische cellen, ….
MALT = Mucosa-associated Lymphoid Tissue
Aggregaten ingekapseld en niet ingekapseld lymfatisch weefsel vnl. in lamina propria en submucosale regio
Mucosae bevatten dendritische cellen voor opname, processing en transport van Ag naar drainerende lymfeknopen
MALT-lymfocyten recirculeren vnl. binnen hun mucosaal systeem
Bevindt zich:
Gastro-intestinale tractus GALT (bv Peyers platen, lymfatische nodules in appendix)
Respiratoire tractus BALT (bv amandelen)
Genito-urinaire tractus
Organisatie:
Mesenterische lymfeknopen en dan naar effector plaats (bv villi)
IEL: intra epitheliale lymfocyten (veel T cellen)
LPL: lamina propria lymfocyt (geactiveerde T cellen, B cellen, plasmacellen)
Innate lymfocyt: lymfocyten zonder t cel receptor
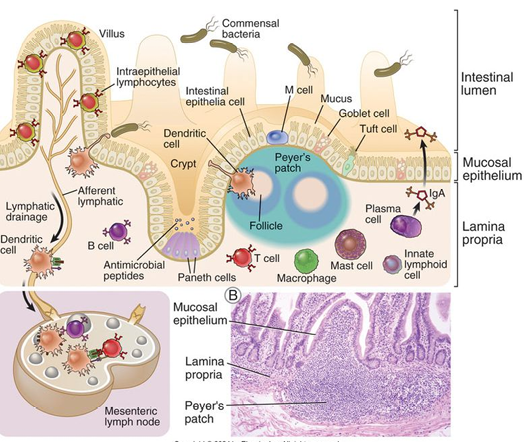
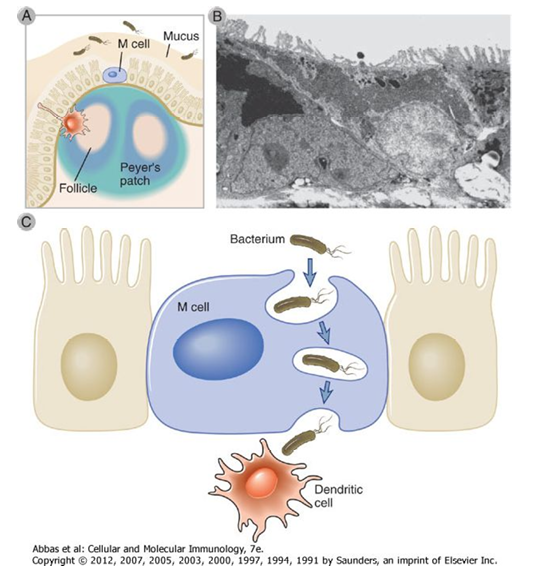
Mucosaal lymfatisch weefsel: Lokalisatie M cellen
M cel: epitheliale cel gespecialiseerd in transport van Ag naar lymfatisch weefsel Bv in Peyers platen (darm)
Vergemakkelijkt opname
Leukocyten migreren: overzicht
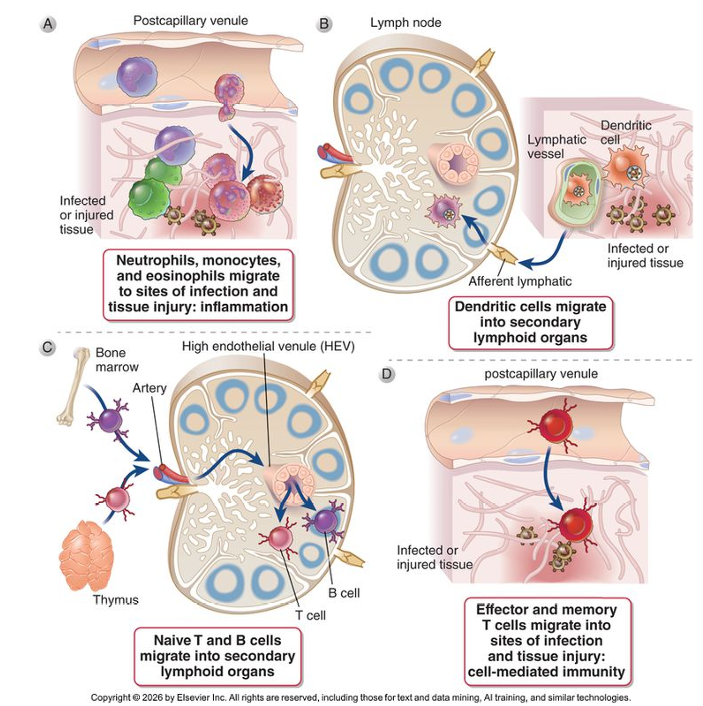
Monocyten en neutrofielen kunnen uit bloedbaan treden ->begeven naar beschadigd of geinfecteerd weefsel (ontsteking of inflammatie)
Dendritische cellen naar drainerende lymfeknoop gaan voor te presenteren
Naive cellen naar lymfeknoop komen vanuit thymus of beenmerg -> migreren naar sec lymfatische organen ->hopen om antigeen tegenkomen ->activeren ->lymfeknoop verlaten ->circuleren-> infecteerde weefsel tegenkomen uittrede bloedbaan
Effector en geheugen t cellen uittrede uit bloedbaan
Naieve blijven tussen lymfeknopen migreren
Lymfocytenrecirculatie: migratie naïeve en effector T-cellen: op zoek naar Ag
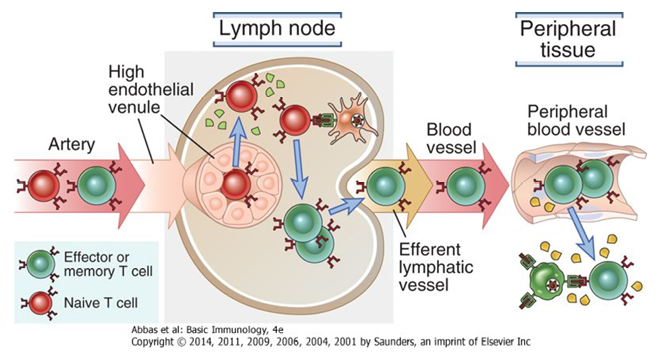
1 à 2% lymfocyt pool recirculeert elk uur
Verhoogt kans op contact met hun Ag in lymfeknoop
Bij Ag herkenning in lymfeknoop →24u stop van recirculatie
Naive cellen terug naar circulatie, enkel wanneer geactiveerd kunnen ze uit de bloedbaan treden
Migratie B-cellen (gedirigeerd door chemokines, kijk hfstk 7)
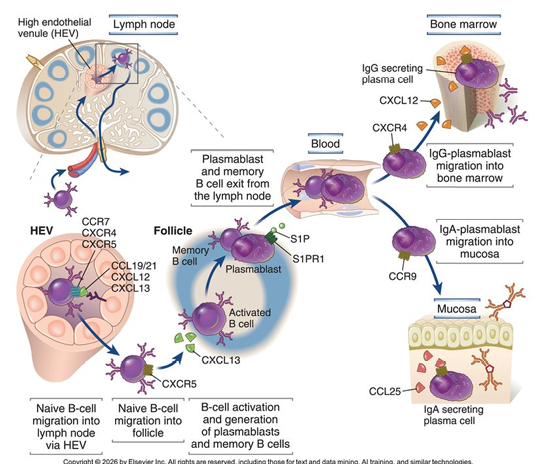
Immuunsysteem is verweven met het centraal zenuwstelsel
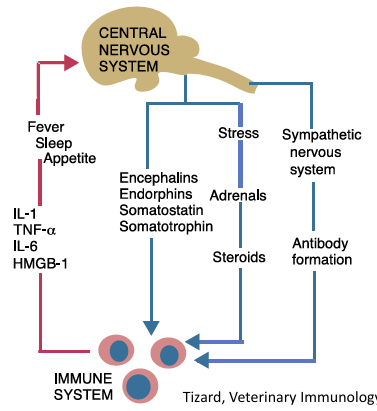
Inflammatie veroorzaakt ziek gedrag en koorts
Stress is sterk immunosuppressief
Aantal zenuwbanen werken in op milt en lymfeknopen
Hfdstk 2: Aangeboren immuniteit en ontsteking
Kenmerken aangeboren immuunantwoord
In alle multicellulaire organismen aanwezig
Scala van mechanismen gericht tegen pathogenen en/of schade
Eerste lijn verdediging tegen pathogenen
Afh aard microbe/parasiet
Vaak niet voldoende →eliminatie door adaptief immuunantwoord
Herkenning/Specificiteit: aangeboren immuunsysteem herkent patronen
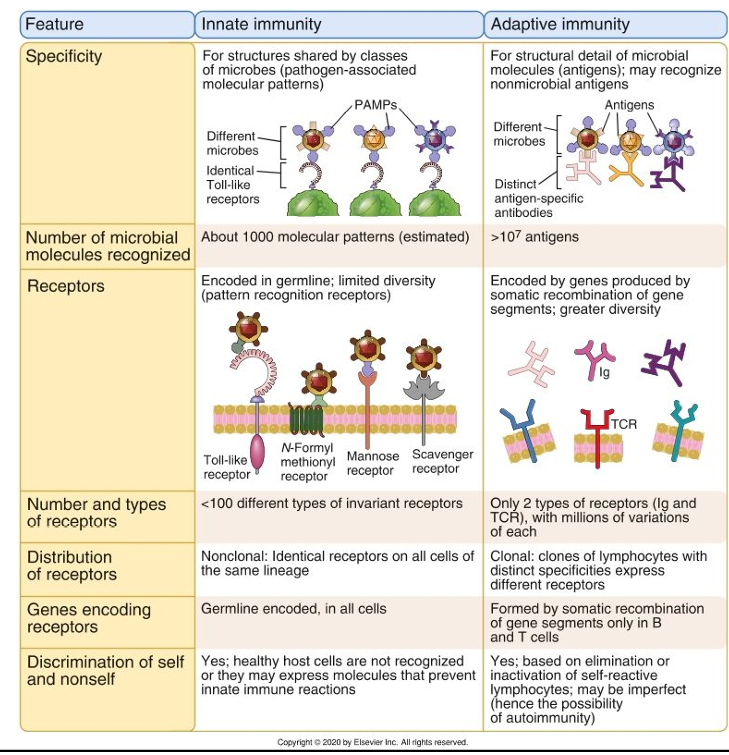
Aangeboren
Granulocyten: neutrofielen, eosinofielen, basofielen
Indringer of schade herkennen door aantal receptoren ->specifiek voor structuren voorkomen op klasse micro org
Pathogen associated moleculer (pam) pattern = patronen die herkent worden door immuunsys
Receptoren op cellen aangeboren immuunsys: pattern recognition receptor (prr)
Invariant: toll like receptor heeft zelfde structuur
Nonclonal: identieke receptoren op alle cellen
Vanaf dat cel ontwikkelt ->gensequenties zo in zitten = kiemlijn gecodeerd
Intacte gastheercellen niet herkent, eens schade er is dan wel
Adaptief
Kan niet microbiele structuren herkennen
T cel receptor nooit gesecreteerd, b cel receptor wel gesecreteerd
Gecodeerd door genen geproduceerd door somatische recombinatie van genen segmenten (geschikt) (verder in hfdstk4)
Klonaal: wanneer gastheer in contact ->enkel diegene die geschikte receptor heeft gaan prolifereren
Pathogen Associated Molecular Patterns (PAMPs): bv

PAMPs = Pathogen-Associated Molecular Patterns = moleculaire structuren die voorkomen op of in ziekteverwekkers (pathogenen) en die door het aangeboren immuunsysteem worden herkend als “vreemd”
Het aangeboren immuunsysteem gebruikt ze om snel “vreemd” van “eigen” te onderscheiden
Herkend door receptoren van het aangeboren immuunsysteem, zoals Toll-like receptoren (PRR's = pattern recognition receptors).
LPS (lipopolysaccharide) bij gram-neg bact
Peptidoglycaan bij bact celwand
Flagelline bij bact flagellen
…..
Damage Associated Molecular Patterns (DAMPs): bv

DAMPs = lichaamseigen moleculen die vrijkomen bij celbeschadiging of celdood en zo het immuunsysteem waarschuwen dat er schade is
2 grote groepen DAMPs: vrijkomen bij schade→ niet allemaal kunnen, enkele voorbeeldjes kunnen geven en de 2 groepen kennen
Pattern Recognition Receptors (PRRs)

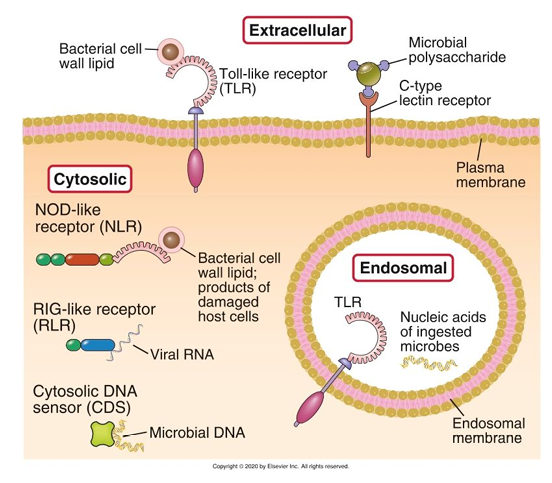
PRRs = herkenningsmoleculen van aangeboren immuunsysteem en hun localisaties =receptoren van het aangeboren immuunsysteem die gevaar herkennen door het binden van PAMPs en DAMPs
Belangrijkste soorten PRR’s: TLRs, NLRs, RLRs, CLRs
Toll-like receptoren:

Linkse figuur
Intracellulaire staart met typische vorm extracellulair
Niet kennen bindingsliganden
Belangrijk weten dat er veel voorkomen aan opp en dat ze veel gaan herkennen
In endosomen nucleinezuren
Rechtse fig
PAM binden aan toll like receptor
Toll like receptor: cytosolische staarten ->signalerend domein dienst doen ->activeren transcriptiefactor nf kb
Naar nucleus ->adhesiemoleculen en co-stimulatoren
Niet enkel zorgen acute inflammatie maar ook adaptieve immuunsys
Ook activatie IRF: transcriptiefactoren die heel typerend productie type 1 interferon (cytokines heel typisch antivirale werking)
NOD-like Receptoren (NLRs) en inflammasoom

Nod like receptoren: hele familie van aantal eiwitten
Na PAM herkennen ->getriggerd ->grote complexen intracellulair maken
Inflammasoom in staat om caspase activeren
Caspase: protease in staat andere eiwitten knippen
Caspase 1 ->knippen pro inflammatoire interleukines
Porie vormen in celmembraan gasdemine
Actieve cytokines uit membraan
Vorm van celdood pyroptosis door te veel water binnenkomen door porie
Cytosolische RIG-like receptors en cytosolische DNA sensoren stimuleren Type I interferon productie
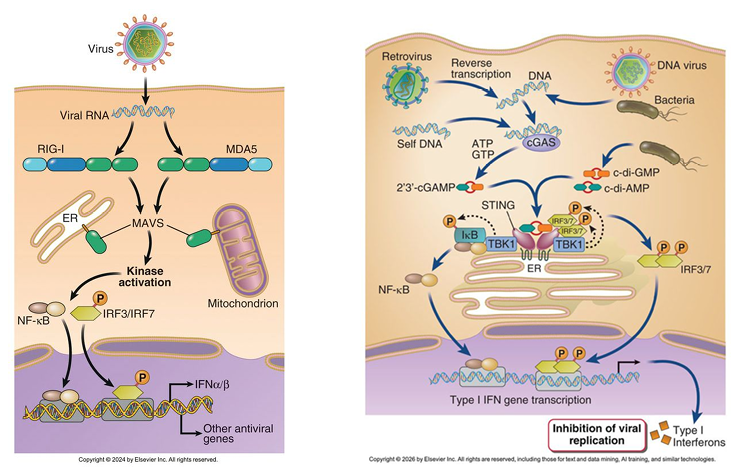
Links: activaties nf kapa b en irf
Rechts: intracellulaire sting activatie→ zorgen voor nf kapa b en irf activatie
Componenten aangeboren afweer
Barrières
Cellen aangeboren immuunsysteem (circulerende en in weefsels)
Neutrofiele (en basofiele en eosinofiele) granulocyten
Mestcellen in weefsels
Monocyten/macrofagen
Dendritische cellen
Innate lymfatische cellen (ILCs)
Natural killer cellen
Oplosbare componenten
Anti-microbiële peptiden
Pentraxinen
Collectinen en ficolinen
Complementsysteem
Cytokinen
Barrières: brede diversiteit aan aangeboren beschermingsmechanismen, veelal aan lichaamsopp
Fysische barrières: huid, mucosa met epitheliale cellen (grootste lichaamsopp), respiratoir, GI
Chemisch/biochemische componenten: speeksel met versch anti-microbiële eiwitten, lysozyme in tranen/zweet, HCl in maag, melkzuur, zuur in vagina, urinaire tractus
Versch celtypes en hun producten in epidermis en dermis zorgen voor fysische barrière en actieve verdediging tegen infecties (fig hfdstk1)


Belang partikelgrootte bij penetratie luchtwegen geldt bij versch mammalia
Aantal mechanismen aangeboren verdediging in respiratoire tractus ter illustratie
Enkel kleinste partikels penetreren diep en raken tot bij alveolen
Cellen aangeboren immuunsysteem (circulerende cellen en cellen in weefsels)
Overzicht
Circulerende granulocyten (neutrofielen, basofielen, eosinofielen)
Mestcellen in weefsels (zie ook verder in cursus)
Monocyten/macrofagen
Dendritische cellen
Innate lymfatische cellen (ILCs)
Natural killer cellen

Granulocyten (polymorfonucleaire cellen)
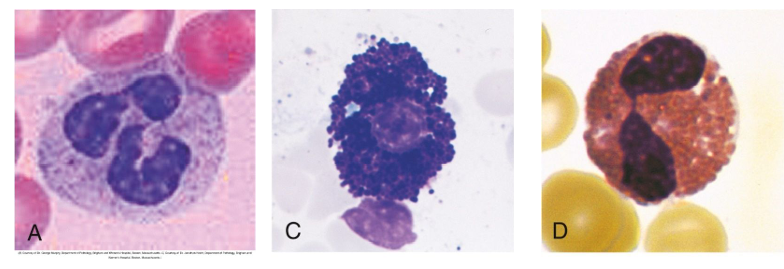
Neutrofielen als belangrijke granulocyten, naast basofielen en eosinofielen
Fagocytose: opnemen en vernietigen microben
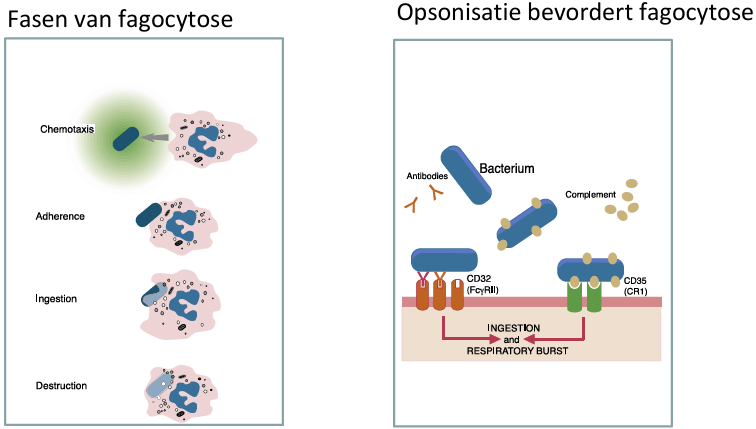
Principe opsonisatie = bekleden van micro-org met antilichamen
Wanneer bekleed met antilichamen ->beter herkent door bep receptoren op fagocyt (samenwerking aangeboren en adaptief)
Complement eiwitten ->receptoren voor betere opname
Neutrofielen en monocyten/macrofagen

Beide celtypes migreren naar plaats infectie
Ingestie en intracellulair doden microbe: beide zijn fagocyten

Neutrofielen
Behoren tot granulocyten
Bij mens meest abundante leukocyten in bloed (4000-10000/mm3)
Bacteriële of fungale infectie →neutrofilie met evt linksverschuiving
Veelal overleeft granulocyt fagocytose niet (cfr geelgroen pus)
Monocyten
Behoren tot Perifeer Bloed Mononucleaire Cellen (PBMC)
Bij mens in bloed slechts 5-10 % leukocyten (500-1000/mm3)
Na extravasatie differentiatie tot geactiveerde macrofagen
Neutrofiele respiratoire burst: productie van ROS

Functies Neutrofiel Extracellulaire Traps (NETs)
Extracellulaire fibrillaire netwerken op plaats van infectie
Bevatten hoge concentratie aan antimicrobiële stoffen
Voorkomen spreiding microben door trapping in fibrillen
Geproduceerd door neutrofielen
Basofielen maken klein % uit van leukocyten en lijken functioneel erg op mestcellen in weefsels

Rol in antimicrobiële en anti-parasitaire immuniteit
Bezitten vele PRRs en Fc receptoren (zie later)
Produceren vele inflammatoire mediatoren
Eosinofielen kleuren rood aan met eosine; werken samen met mestcellen

Eosinofielen bezitten vele PRRs, =gespecialiseerde anti-helminthen cellen
Eosinofielen gespecialiseerd in extracellulair vernietigen parasieten
Degranulatie belangrijk werkingsmechanisme
Verhoogde aantallen in bloed bij worm-infecties of allergie
Aangetrokken door mediatoren geproduceerd door mestcellen
Komen veel voor in darm

Mestcellen

Signalen die leiden tot mestceldegranulatie
Mestcel veel receptoren ->getriggert na binding antigen en antilichaam complexen
Heel veel versch factoren kan getriggert worden→ zorgen voor inflammatoire producten
Monocyten macrofagen (mononucleaire cellen)

Vele weefsel-residente macrofagen ontwikkelen tijdens foetale leven
Nog veel onderzoek naar precieze origine van weefselmacrofagen
Mononucleair fagocytsysteem kent species verschillen
Activatie en functies macrofagen
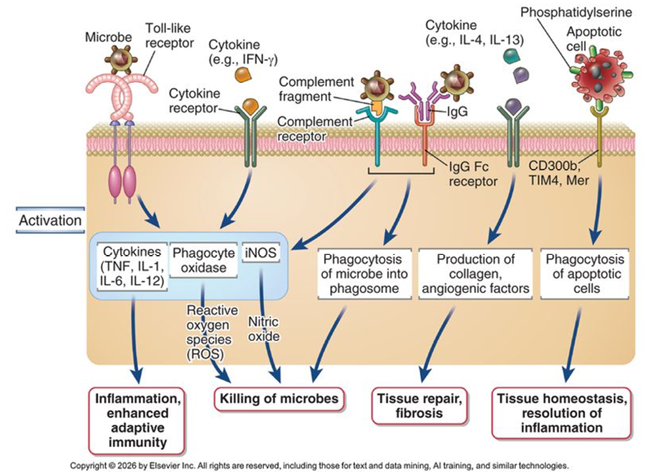
Zorgen voor inflammatie en ontsteking
ROS aanmaak iets minder dan bij neutrofielen
Kleine moleculen bijdrage dode micro-org
Rechterkant: productie collageen ->angiogene factoren -> zorgen voor weefselherstel, maar als niet functioneel: weefselfibrose
Versch factoren celdood
Macrofagen kunnen veranderen van m1 naar m2 (subtypering)
Mechanisme fagocytose en intracellulair doden micro-organismen

Wat wordt opgenomen ? Pathogenen, dode cellen, stukjes weefsel, …
Bevordende receptoren
Opgenomen in vesikel (fagosoom) ->fagocytmembraan rond micro-org afgesnoerd en versmelten met lysosoom ->micro org afbreken ->activatie fagocyt en enkele enzymen voor NO en ROS productie
Niet altijd efficient gebeuren
Granuloma vorming:

Ophoping van immuuncellen en fibrotisch weefsel
Gevormd rond lintworm in hart van dier
Macrofagen die proberen infectie opruimen
Collageen aanmaken, cytokines, ….. ->inkapseling van schadeprikkel = granuloma
Dendritische cellen
Vormen schakel tussen aangeboren en adaptieve immuunsysteem
Er bestaan versch types dendritische cellen (zie hoofdstuk 3)
Dendritische cellen kunnen micro org opnemen, maar slecht in staat ze te doden
Hoofdtaak: vnl antigentransport en presentatie

Dendritische celprecursor ->conventionele en plasma cytoid
In huid: langerhans cellen ->vanuit macrofaagprecursor ontstaat
Plasmacytoide dc: snelle, grootschalige productie van type 1 interferonen
Conventionele dc: gespecialiseerde apc, efficiente t cel activatie
Innate lymfocyten cell (ILCs)
Lymfocyt-achtige cellen afkomstig van Common Lymphoid progenitor
Produceren cytokinen
Voeren functies uit gelijkaardig aan die van T lymfocyten
Brengen geen TCR of BCR tot expressie
Dragen bij tot vroege verdediging tegen infecties
NK cellen zijn eerst beschreven ILCs

Geen t cel of b cel receptor
Versch subpopulaties: op versch manieren geactiveerd
Enorm bepalend voor type lymfocyt
Innate (aangeboren) lymfocyten: geen t cel of b cel receptor
Natural Killer (NK) cellen gericht tegen veranderde lichaamscellen
Gestimuleerd door IL-12
1-5% leukocyten in bloed bij de mens
Cytotoxische eigenschappen
Functies inhiberende receptoren op NK cellen
Functies
Eliminatie geïnfecteerde of beschadigde cellen (vb door stress)
Bijdrage tot inflammatoire respons via IFN secretie

Rol in verwijderen beschadigde cellen
Cel abnormaal geworden is (tumoraal) of cel die beschadigt is
Secretie cytokine (interferon gamma) ->stimuleren macrofagen en monocyten
Stimuleren opgenomen microben doden
Interferon gamma aanmaken: geactiveerd door il 12, afkomstig van macrofaag die iets heeft opgenomen
Wisselwerking macrofaag en nk cellen
Balans tussen activatie van inhiberende en stimulerende receptoren bepaalt of NK cel tot doden van doelwitcel overgaat

Inhiberende receptoren: ligand binding ->geen activatie
Activerende receptoren: ligand binden ->activatie
Virale infectie expressie mhc onderdrukt (later op terug komen)
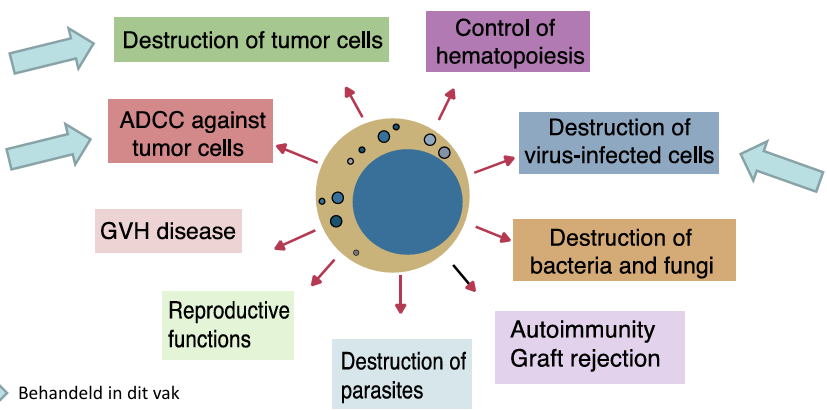
Veel andere functies hebben
Destructie tumoren
ADCC: antibody dependent cellular cytotoxic (ander hfdstk)
Oplosbare componenten aangeboren immuunsysteem
Anti-microbiële peptiden
Defensinen: kleine kationische peptiden
Direct antimicrobiële en immuunregulerende eigenschap
Geproduceerd door granulocyten en speciale epitheelcellen
Pentraxinen: pentamere plasma-eiwitten
C-reactief proteïne (CRP) (conc tot stijgt 1000x na infectie)
Synthese in lever; stimulatie door IL-1 en IL-6
Herkent fosforylcholine ->verbeterde opname microben door fagocyten-> betere eliminatie
Zie ook acute fase respons
Collectinen: eiwitten met collageen-achtig en lectine-domein
Mannose-bindend lectine (MBL)
Surfactanten A en D (SP-A en SP-D) aanwezig in alveolen longen
Ficolinen: eiwitten met collageen-achtig en fibrinogeen-domein
Complementsysteem
Cytokinen
Waaier oplosbare componenten aangeboren immuunsysteem draagt bij aan voorkomen en verdediging tegen infecties
Vele eiwitten met antimicrobiële functie afgegeven aan huid, slijmvliezen en in secreten (speeksel, tranen, slijm, zweet, moedermelk)
Sommigen doden microben, vertragen hun groei of ondersteunen immuunrespons
Cytokinen (oa interferonen) en complement hebben ook indirecte antimicrobiële effecten
Complement systeem kan op versch manieren geactiveerd en leidt tot lysis en versnelde fagocytose micro-organismen (zie ook HFDST 8)

Groot geheel eiwitten die elkaar activeren als cascade
Meeste hebben precursor vorm ->worden geactiveerd
C1 ….c9: eiwitten van compliment systeem
Er zijn versch manieren om dit te activeren
Alternatieve pathway: aanwezigheid microben voldoende om kleine activatie trigger te geven aan sys
C3 eiwit: heel belangrijk eiwit ->geactiveerd: verdere cascade activeren
Proteolytische splitsing ->omzetting tot groot fragment c3b en klein fragment c3a
Lectine pathway: getriggert doordat mannose bindend lectine mannose residu ontdekt op een bact→ activatie c4 en c2 ->splitsen c3 in c3b en c3a
Adaptieve immuunsysteem: klassieke pathway
Antilichaam
Verder zien bij andere hoofdstukken
Geactiveerd c3b en c3a
Klein fragment c3a: inflammatie veroorzaken ->andere cellen aantrekken, inflammatoire cellen naar plaats infectie gaan
Groot fragment c3b: hechten aan micro org ->bekleden
Complex gevormd (zie hoofdstuk 8) ->scheiding van c5 in c5b en c5a
C5a: diffunderen en inflammatie veroorzaken
C5b: complexeren aan opp (zie later hoofdstuk)
Uiteindelijk porievorming ->lyse van microbe
Functies: verbeteren fagocytose, inflammatie veroorzaken, uiteindelijk lyse microben
Cytokinen

Autocrien: inwerken op zelfde cel waar ze worden aangemaakt
Paracrien: inwerken in de buurt
Pleiotrope moleculen: versch cellen beinvloeden en versch functies uitvoeren
Rudendant: overlappende functies hebben
Niet allemaal, maar enkele zijn toxisch in hoge dosis
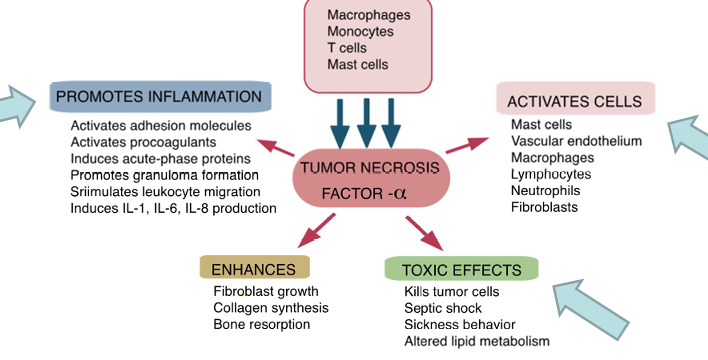
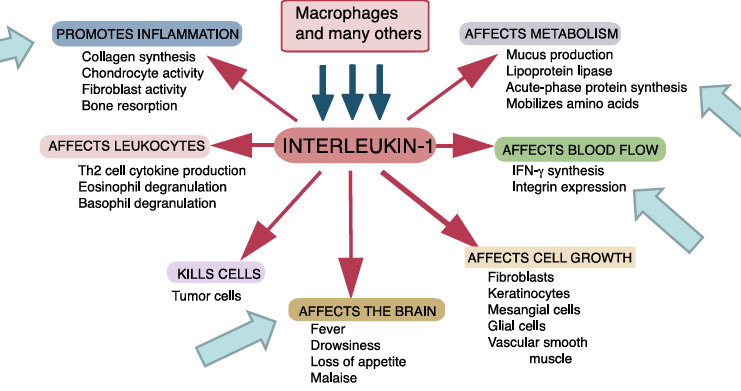
Belangrijke pro-inflammatoire cytokinen: TNFa, IL-1, IL-6 en vele chemokinen

Dendritische cellen en macrofagen bron van il12
Nk cellen ifn gamma aanmaken dat invloed heeft op dendritische cel
Moment geinfecteerd en geactiveerd worden van macrofagen ->tnf, il1, chemokines invloed op bloedvatwand: door activiteit endotheel ->neutrofielen uittreden bloedbaan ->acute inflammatie (ontstekingsproces)
Cytokinen aangeboren afweer (kennen)

Macrofagen belangrijke bronnen voor aanmaak cytokines
TNF: celdood veroorzaken (apoptose)
Hoge concentratie TNF kunnen tumoren laten necroseren
Interleukine 1: in hoge concentratie minder toxisch (minder nadelen)
T cellen activeren, th17 differentiatie
Type 1 inteferonen: alfa en beta vorm ->heel veel cellen
Antivirale cellen: meer weerstand tegen virus
Interleukine 6→ B cellen activeren
Interleukine 15: niet veel in detail op in, voor NK cellen belangrijke groeifactor
Tumor Necrosis factor alfa
Interleukine 1
Interleukine 6

Heel typerend: ook b cellen beinvloeden en activeren
Zeer sterke activator hepatocyten en acute fase respons
Beinvloed brein hypothalamus ->koorts veroorzaken
Belangrijke antivirale cytokinen: Type 1 interferonen

Links
Type 1 interferonen: interfereren met virale infecties
Cytokine die als eerste ontdekt zijn
In grote hoeveelheden aanwezig
Virale infectie aanleiding geven tot aanmaak interferon type1
Toll like receptoren virale PAMs herkennen, aanleiding tot interferonen
Activatie toll like receptor ->transcriptie ->IRF aanmaken ->interferon alfa en beta transcriptie initiëren
Rechts
Type 1 interferonen die inwerken in interferon receptor op niet geinfecteerde cel ->antivirale status krijgen
Rode kadertjes belangrijk
Functies aangeboren immuunrespons
1. Bij infectie met extracellulaire bact en fungi
Acute inflammatoire respons opwekken: vroege lokale reactie met aantrekken neutrofielen en monocyten naar infectieplaats
Complement activeren (zie eerdere slides) ! Soms weefselschade !
2. Verdediging tegen virussen via Type I IFN en NK cellen (zie eerdere slides)
3. Stimulatie van de adaptieve immuunrespons (zie volgende slides)
Acute inflammatoire respons

= Lokale respons
Getriggerd door schade (bv snede) ->binnendringen micro org ->prikkels cellen activeren (aangeboren immuunsys) ->oplosbare mediatoren aanmaken ->zorgen thv endotheel voor vasculaire permeabiliteit → vloeistof gaat uittreden met enkele eiwitten ->bron van inflammatie, 1ste klinische tekenen inflammatie ->activatie pathway ->anti microbiele eiwitten aanmaken ->cellen uit bloedbaan treden (neutrofielen ook mediatoren uitstoten ->verdere inflammatie) ->fagocytose /doden micro org
Migratie leukocyten naar plaats van infectie

Macrofaag die microben opneemt →aanmaak cytokines en chemokines →uitscheiden → zorgen voor receptoren proteoglycanen op de bloedvatwand die chemokines gaan concentreren →neutrofiel aangetrokken en gaat over bloedvatwand rollen →selectine ligand en chemokine receptor gaan binden aan selectine en chemokines op bloedvatwand →vertragen →loskomen →rollen →verder vasthechten →integrines krijgt een hoge affiniteit door de extra triggers van selectine binding en chemokine binding →integrine ligand sterk bind aan integrine op bloedvatwand →neutrofiel gaat uittreden uit de bloedbaan →chemokines van de macrofaag zorgen voor fibrine en fibronectine aanmaak in het weefsel →extracellulaire matrix (neutrofiel gaat hier verder matrix aanmaken, NETs)
Bovenaan bloedstroom en onderaan weefsel geinfecteerd
Macrofaag gestimuleerd door opname micro org chemokine aanmaken ->receptoren op endotheel, proteoglycanen (concentreren van chemokinen)
Selectine ->liganden op WBC die migreren ->neutrofiel in bloedstroom vertraagd worden want hechten aan selectine ->terug loskomen en beetje rollen en terug vasthechten (vertragen) ->geactiveerde endotheel
Thv endotheel integrine liganden ->integreren met integrine op leukocyt
Wanneer geen andere triggers thv selectine liganden ->integrines conformatie die zorgen voor lage affiniteit (niet hard binden)
Maar wanneer rollen neutrofiel triggers aanwezig dat integrine naar hoge affiniteit kan gaat die meer hechten en sterker hechten
Neutrofiel uiteindelijk uit bloedbaan treden
Chemokines thv proteoglycanen integreren met receptoren op leukocyt
Naar buiten treden: chemokines verder activeren door fibrine en fibronectine aanmaken ->matrix veranderen door afzetting van meer extracellulaire matrix eiwitten
Aangeboren afweer stimuleert adaptieve immuunrespons

Stimuleren adaptieve immuunrespons: b en t cellen
Rechts:
Micro org opp complement activatie ->kunnen binden aan complement receptor ->b cellen hebben complement receptor (bekleed)-> wanneer antigen is dat door b cel herkent word ->triggeren: proliferatie en activatie en uitscheiden antilichamen
Altijd antigen herkenning nodig voor b cel activatie (stimulatie)
Aangeboren immuniteit ook adaptieve immuniteit activeren: dendritische cellen nodig (hfdstk3 en 5)
Cytokines en aan opp costimulerende eiwitten tot expressie
Wanneer naive t cellen activeren is niet enkel activatie t cel nodig maar ook andere stimuli nodig
Aangeboren zorgen voor expressie dendritische cellen
Antigen herkenning nodig
Links
2de signaal nodig: costimulator, ….
Lymfocyt in staat prolifereren en differentieren
Micro-organismen ontsnappen aan aangeboren afweer

Ontsteking

= Inflammatie = reactie van gevasculariseerd weefsel op beschadigende prikkel waarbij mediatoren van verdediging circulerende cellen en eiwitten naar plaats van infectie of schade gebracht
In principe goedaardige gastheerreactie, maar kan zelf ook weefselschade veroorzaken
Ontstekingsreactie kan acuut of chronisch van aard zijn
Pus= etterig ontstekingsexsudaat rijk aan dode neutrofielen en resten van necrotische weefselcellen (debris)
Initiatie en verloop - overzicht

Aangeboren immuunsys gestuurd door PAMPs en DAMPs
Zorgen voor signaal ->versch responsen:
Cytokine release ->activatie adaptieve response en vasoactief (bloedflow veranderen, verhoogde permeabiliteit)
Destructie indringer en soms ook weefselschade
Verloop acute ontsteking

Respons op versch stimuli kan sterk verschillen
Ontstekingsmediatoren ter plekke bepalen klinische aspecten
Fase 1: Hyperemie, versterkte doorbloeding weefsel
Fase 2: Exsudatie, buiten bloedbaan treden van vocht met plasma-eiwitten
Fase 3: Infiltratie: migratie leukocyten uit circulatie (= diapedese)
Fase 4: Herstel weefsel: soms complete resolutie, soms fibrosering, soms ontstaan chronische ontsteking
Chemische mediatoren
Vaak aanwezig als precursoren in plasma
Sommige opgeslagen in granula van cel en gesecreteerd na stimulatie, vb: histamine uit mestcellen en serotonine uit mestcellen en bloedplaatjes
Andere de novo aangemaakt, vb: prostaglandinen en cytokinen
Vele ontstekingsmediatoren geproduceerd in lever en in circulatie uitgescheiden
Er bestaan ook gasvormige ontstekingsmediatoren zoals NO dat intracellulair reageert met superoxideanionen (ONOO-)
Chemische mediatoren: leukotriënen en prostaglandines

Chemische mediatoren: versch interactieve pathways

4 plasma-enzymsystemen zijn verantwoordelijk voor gecoördineerde productie van veel versch ontstekingsmediatoren
Versch cascades elkaar beinvloeden
Complement cascade beinvloed door fibrolytische cascade, kinine cascade en coagulatie cascade
Door splitsing vaak geactiveerd en met elkaar interageren
Acute fase respons: systemische effecten van ontsteking

Neutrofilie zien na infectie (beschermende effect)
Tumor necrotisch factor: schade veroorzaken aan organen
Lagere output, trombusvorming, stolling, verhoogde permeabiliteit
Acute fase-eiwitten = er treden veranderingen op in concentratie aantal plasma-eiwitten
C-reactief proteïne (CRP) bij mens, varken en hond
Concentratie stijgt 100-1000x
Bindt fosforylcholine op bact, schimmels en parasieten en bevordert fagocytose
Bepaling in bloed is snelle, gevoelige en betrouwbare methode om systemische ontsteking opsporen
Serum Amyloid A (SAA) bij mens en vele species
vb C3 en mannosebindend lectine
Fibrinogeen
Concentratie stijgt 1,5-5x →leidend tot aggregatie en verhoogde sedimentatie RBC
Ook andere ...
Sepsis =klinisch syndroom dat gekenmerkt wordt door levensbedreigende orgaanschade die veroorzaakt wordt door schadelijke respons van gastheer op binnendringende micro-organismen of hun toxinen
= levensbedreigend orgaanfalen veroorzaakt door ontregelde respons van gastheer op infectie
Nagenoeg elke infectie kan resulteren in sepsis
Incidentie sepsis stijgt, onder meer door vergrijzende bevolking, toenemend gebruik immuunsuppressiva en AB resistentie

Hfdstk 3: Opname antigenen en presentatie aan lymfocyten
Antigeenherkenning door T-lymfocyten

MHC-moleculen = Ag presenteerblaadjes aanwezig in alle vertebraten
MHC= majeur histocompatibiliteitscomplex
Niet zonder antigeenpresenterende cel kunnen
Dendritische cel iets opgenomen en verwerken ->antigen presenteren aan oppervlak (gebonden aan molecule MHC)
Opname microbiële antigenen

T-cel respons in lymfeknopen binnen 12-18u
Opgenomen door langerhanscellen of dendritische cellen
Micro org opgenomen in dendritische cel en via lymfatische weefsels naar lymfeknoop gaan ->via tocht doorheen vaten gaat die matureren en veranderen van karakteristieken
Lymfeknopen verzamelen antigenen die in weefsels zitten
Via bloedbaan in milt ->opgenomen door antigeenpresenterende cellen ->presenteren aan t cellen
Wanneer t cel gepresenteerde antigen ziet ->aantal uur verblijven om goede activatie te hebben
Dendritische cellen: vele subpopulaties
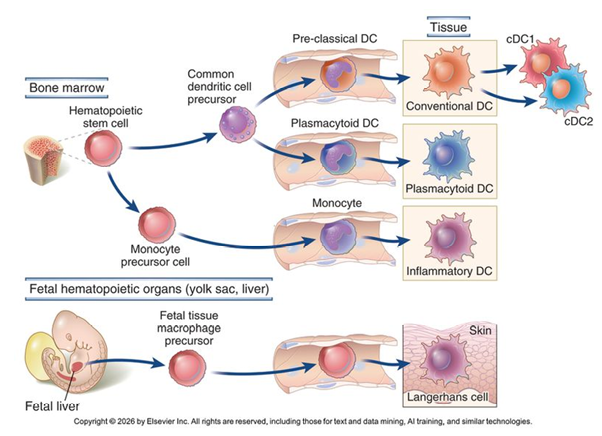
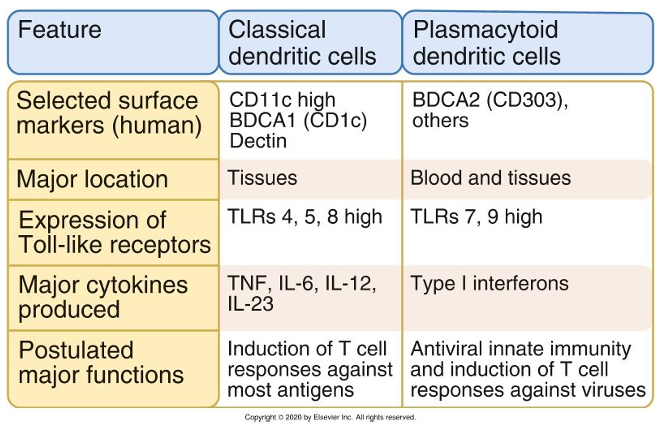
Vaak in weefsels voorkomen van klassieke en plasmacytoide vinden we ook terug in bloed
Patroonherkenning
Versch TLRs->versch rollen opnemen
Klassieke: typische tnf, il6 en il12 (kennen!)
Plasmacytoid: type 1 interferon (zijn antiviraal)→ induceren t cell antwoorden (antivirale respons)
Opname en presentatie eiwitantigenen door professionele APCs

Dendritische cellen
Antigenen presenteren ->in MHC molecule
In staat om costimulatoren tot expressie brengen -> nodig om naive cel over activatiedrempel te houden (gezien als signaal 2)
Naive cel nodig om effector cel te worden
Macrofaag
Verwerken en presenteren aan t cell
T cel die al eens eerder is geactiveerd is geweest ->sneller over activatiedrempel→ heeft niet evenveel costimulator nodig als naive
Interactie t cel: meer efficient doden micro org
B cel
Een van de professionele presenterende cel
Heeft een receptor die een antigen kan binden (versch lineaire stukjes die herkent worden)
Epitopen: herkent worden
Antigen afgebroken in b cell ->stukje van dat eiwit gepresenteerd worden aan t cell
Interactie b cel – t cel ->belangrijk voor b cel activatie
Gaat effector t cel activeren

Typische dendritische cel die antigeen opneemt ->vervoeren naar lymfeknopen -> proces gaat dendritische cel activeren, van antigeenopnemende cel naar antigeenpresenterende cel
Fc receptoren: binden constant deeltje van antilichaam
T cellen activeren, bv B7: afwezig of heel laag in rust en aankomen in lymfeknoop heel veel
MHC molecule: verhoogde expressie, half leven heel fel vergroot
Dendritische cel evolueert, uit zich in gewijzigd expressiepatroon namelijk MHC en costimulatoren
Structuur en functie van MHC-moleculen
MHC genen en moleculen
Membraaneiwitten gecodeerd door genen in MHC
2cellen met zelfde MHC->weefsel van elkaar aanvaarden
Weefselcompabiliteit (transplantatie geneeskunde)
Naam van membraaneiwitten verschilt tussen specie mens: Human LeukocyteAntigens (HLA), hond: DLA, …
MHC moleculen controleren Ag presentatie aan T-cellen
Belangrijke rol in T cel ontwikkeling in thymus (Hfdstk 4)
Belangrijke rol bij resistentie tegen infecties: bep immuunrespons
Selectiedruk op MHC genen: survival of the fittest: snelle evolutie
MHC die goed beschermen voorkeur tot expressie
MHC haplotype: volledig set MHC allelen gevonden in individu
Genetische organisatie: elk zoogdier heeft klasse I, II en III regios
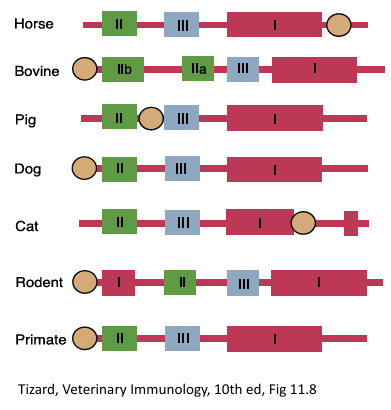
2 sets sterk polymorfe genen MHC I en MHC II
Klasse I MHC locus (HLA-A, HLA-B, HLA-C)
Klasse II MHC locus (HLA-DP, HLA-DQ en HLA-DR)
Set van genen vnl betrokken in aangeboren inmmuniteit: Klasse III locus
MHC polymorfisme bij mens: elk individu heeft uniek haplotype

Structuur MHC moleculen

Boven: 1 lange keten met gesloten groeve
Immunoglobulinedomein: bestaat uit 100az die vorm krijgen door disulfidebrug, in veel molecule voorkomen oa ook in antistoffen
Dicht bij eindterminus: groeve ->peptidebindende groeve aflijnen
Peptide binden tussen 8-11az lang
Gestabiliseerd
Residuen contact maken met t cell
Alfa 3 binden met cd8 moleculen ->cellen die mhc 1 tot expressie brengen
Beneden: 2 lange ketens met open groeve
Moleculen gelijkenissen met klasse 1 maar andere opbouw
B2 keten, immunoglobuline domein, terminus, 2 polymorfe residuen
Peptidebindingsgroeve meer open ->tussen 10-30az binden
B2 binden met cd4 moleculen ->klasse 2 t helper cellen interageren
Eigenschappen MHC en hun betekenis

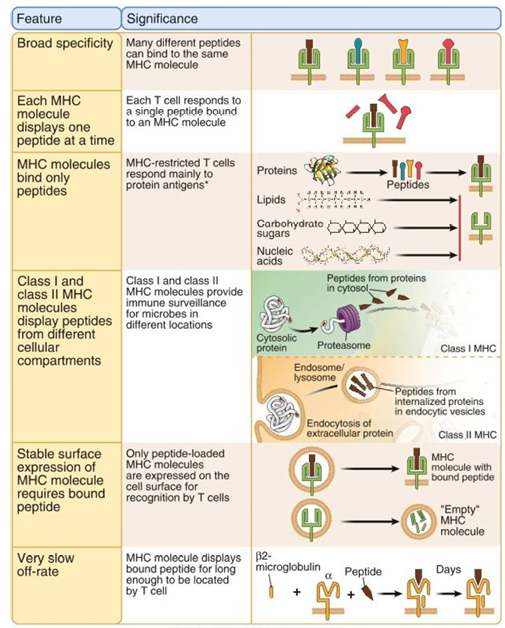
Betreft polymorfe genen: veel allelen aanwezig in populatie ->binnen populatie enkele indiv die bep peptiden kunnen binden→ meer overlevingskans
Codominante expressie: zowel allel vader als moeder tot expressie→ meer MHC moleculen in expressie komen en dus meer presenteren
Waar vinden? Vinden we op alle cellen die kern hebben -> antigeenpresenteren aan cytotoxische t cel ->elke cel geinfecteerd kan doden bv: epitheelcellen, mesenchymaalcellen, ..
Klasse 2 op dendritische cellen, macrofagen en b cellen terug vinden
Cd4 helper cellen activeren

Heterozygote dieren met 2 MHC allelen op elke locus, brengen 6 versch MHCs tot expressie
Zij genereren meer diverse en effectieve immuunrespons dan homozygote dieren
= vb van heterozygoot voordeel
MHC I en MHC II geen gelijk expressiepatroon
Binding peptiden aan MHC-moleculen
MHC pockets binden AZ zijketens
MHC moleculen maken geen onderscheid tussen eigen of vreemde peptiden
MHC allel bepaalt welke peptiden binden
MHC molecule kan +/- 2500 versch peptiden binden
Binding peptiden aan MHC-moleculen
Verwerking (processing) eiwitantigenen
Voor presentatie via MHC-klasse II-moleculen
Voor presentatie via MHC-klasse I-moleculen
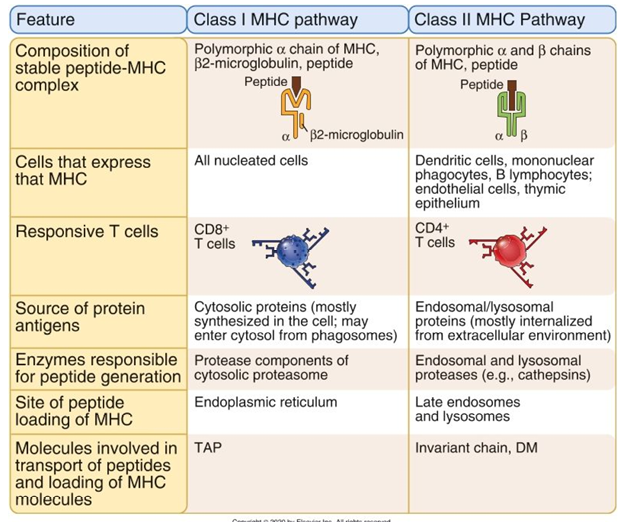
Rol MHC-gemedieerde Ag-presentatie in herkenning microben door CD4 en CD8+ T-cellen

Bovenste
Cytosolisch eiwit (afgebroken in proteasoom) ->complex ->peptiden uitkomen die via tap transporters terecht in endoplasmatisch reticulum ->klasse 1 mhc ->binden hieraan en eiwit gestabiliseerd ->terecht in golgi apparaat en aan oppervlakte komen -> invariant stuk binden aan cd 8 molecule (typerend cytotoxische t cellen)
Onderaan
Eiwit opgenomen door endocytose (extracellulair) ->komt in endosomale lysosomale pathway en afgebroken ->klasse 2 mhc molecule in RER -> invariante keten krijgen: stabiliseert vormend molecuul->versmelten met endosomale pathway en invariante keten uiteindelijk verwijdert en vervangen door peptide die bind in peptidegroeve
Binden met cd4 op t helper cellen
Presentatie via MHC-klasse I-moleculen

Klasse 1 belangrijk voor virale infecties (vaak intracellulair aangemaakt)
Mhc 1 moleculen beladen met moleculen in ER en hierna naar golgi ->in vesikel
Eiwitten in cytosol afkomstig van opgenomen micro org en waar fagosoom verlaten →kunnen in klasse 1 pathway komen
Presentatie via MHC-klasse II-moleculen

Complex naar golgi ->bij versmelting vesikels eerst stuk afgeknipt (clip peptide) ->met helper molecule peptide in bindingsgroeve terecht komen ->tot expressie
Kruispresentatie

Professionele APC óók betrokken bij activatie van naïeve CD8+ T cellen
Belangrijk bij virale infecties
Viraal geinfecteerde cel (links)
Virale antigenen in cel ->gepresenteerd in klasse 1 mhc ->cel kan schade ondervinden en fragmenten van cel en antigenen opgenomen door fagocyterende cel (dendritisch) ->zowel aan opp mhc2 als 1: geactiveerd door opname ->costimulatoren tot expressie
Resultaat: virale antigenen van opgenomen fragmenten terecht in cytosol ->via klasse 1 kunnen gepresenteerd worden in mhc 1 van dendritische cel ->activatie van cd8 cytotoxische cel
Wat is nut van cel in verdediging? Transport lymfeknoop, verzamelen virale antigenen, OOK costimulator tot expressie ->onmiddellijk 2de signaal voor t cel
Als naive cel is: helemaal rijp maar nog niet geactiveerd dus costimulator nodig
Initiatie immuunantwoord cross presentation: costimulator belangrijk voor activatie t cel (cd8)
Klassieke lichaamscellen hebben geen mogelijkheid voor de costimulator
Kruispresentatie (cross-presentation) is een uitzondering op de normale MHC-regels.
Normaal:
MHC I → presenteert materiaal van binnen de cel → aan CD8⁺ T-cellen
MHC II → presenteert materiaal van buiten de cel → aan CD4⁺ T-cellen
Bij kruispresentatie nemen bepaalde cellen (vooral dendritische cellen) materiaal van buiten de cel op, maar presenteren het toch via MHC I.
Waarom is dit belangrijk?
Stel dat een virus een cel infecteert, maar de dendritische cel zelf niet. De dendritische cel kan:
virusdeeltjes of resten van geïnfecteerde cellen opnemen
die presenteren via MHC I
CD8⁺ T-cellen activeren
Zo kan het lichaam toch een sterke cytotoxische afweer opstarten.
Kort geheugensteuntje:
Normaal: buiten → MHC II → CD4
Kruispresentatie: buiten → tóch MHC I → CD8
Rol van MHC-gemedieerde Ag-presentatie in herkenning microben door CD8+ T-cellen en CD4+ cellen

Cytotoxische cel die goed geprimed is, kan elke lichaamscel die geinfecteerd is doden
Intracellulaire reservoirs waar virus schuil houd ook kunnen vernietigen
Rol van MHC-gemedieerde Ag-presentatie in herkenning microben door CD8+ cellen en CD4+ T-cellen
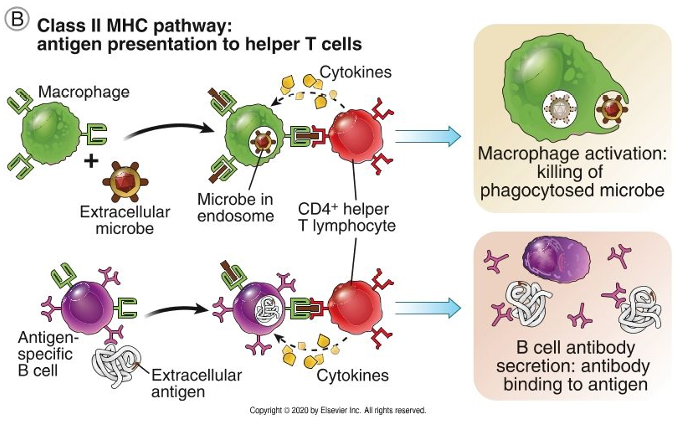
Klasse 2 pathway
Extracellulaire microbe door macrofaag opgenomen ->presentatie in klasse 2 pathway ->als we dan tonen aan t helper cel (liefst een die al geactiveerd is) cytokine aanmaken en macrofaag hiermee van profiteren (goed microbe kunnen doden)
T cell nodig als bron cytokines ->zorgen verdere activatie macrofaag
(zie hoofdstuk 5 en 6)
B cel
Lineair stukje van extracellulair microbe gaat tonen ->cytokines ook b cellen aanzetten om antilichamen tot expressie brengen en secreteren
B cel activatie
(zie hoofdstuk 7 en 8)
Resultaat: activatie en presentatie aan t cellen ->macrofaag activatie
Immunodominantie

B cel van gevouwen eiwit herkennen, lineaire stukken herkent en gepresenteerd
In eiwit veel lineaire epitopen
Binnen bep peptide paar epitopen die immunodominant zijn: t cel antwoord opwekken (cd4 t cel activeren)
Dominant binden en zorgen voor immuunantwoord
Waarom belangrijk? Vaccin ontwikkelen -> kijken naar wat de immuno dominanten epitopen zijn en het meest worden gepresenteerd
Immunodominantie betekent dat het immuunsysteem niet op alle mogelijke antigenen of epitopen even sterk reageert, maar vooral een sterke reactie richt op een klein aantal “dominante” epitopen.
Een epitoop = een klein stukje van een antigeen dat via MHC wordt gepresenteerd en door T-cellen wordt herkend.
Voorbeeld:
Een virus bevat tientallen of honderden mogelijke eiwitfragmenten. Toch reageren T-cellen vaak vooral op slechts enkele fragmenten → die noemen we immunodominante epitopen.
Waarom gebeurt dit?
Sommige epitopen binden beter aan MHC
Sommige worden efficiënter verwerkt en gepresenteerd
Sommige T-cellen herkennen bepaalde epitopen sterker
Er kan competitie zijn tussen verschillende epitopen
Kort schema:
Veel mogelijke epitopen → selectie → enkele dominante epitopen → sterkste immuunrespons
Waarom belangrijk?
Vaccins: men kiest vaak immunodominante epitopen om een sterke afweer op te wekken.
Immunodominantie is op korte termijn vaak voordelig (sterke reactie), maar op lange termijn kan een té smalle focus een zwakke plek worden.
Dat idee zie je veel terug in vaccinontwerp: onderzoekers proberen soms een bredere respons tegen meerdere epitopen op te wekken, zodat één mutatie niet alles onderuit haalt.
Antigenen herkend door B cellen en andere lymfocyten
B cellen kunnen variëteit aan antigenen herkennen, waaronder eiwitten, polysacchariden, lipiden, kleine chemicaliën
Ag processing is niet nodig
APCs nodig voor initiatie humorale respons ???
Folliculaire DCs: concentreren antigen in nabijheid van b cellen; spelen rol bij affiniteitsmaturatie (Hfdstk 7)
Belang MHC typering in kliniek
Transfusie reacties
Transplantatiegeneeskunde
Vaderschapsbepaling
Ziekte associaties
Hfdstk 4: Antigeenherkenning in adaptieve immuunsysteem
Antigeenreceptoren op lymfocyten

b cel
Antigeen in oplossing
B cell receptor voorkomen in gesecreteerde vorm ->zijn bifunctioneel: antigenbinding en effectorfuncties
Effectorfuncties: gemedieerd door delen ??? →complementen activeren, binden met fc receptoren en nog functies bevorderen
Elke kloon specificiteit, potentieel om veel versch klonen te hebben (10^11) →t cel receptor
Peptide herkennen gepresenteerd aan opp
Voornamelijk peptiden herkennen, getoont door mhc en dat t cell receptoren lineaire epitopen herkennen
Elke t cel kloon specificiteit ->nog meer versch bindingsspecificiteit mogelijk (immuunrepertoir)
Alle 2 niet zelf zorgen voor signaaltransductie ->enkele ketens op membraan die zorgen voor signaal
B-cel receptoren/Antilichamen (BCR/Al/Ig) op B-cellen
Basisstructuur BCR en Antilichaam
2 Zware Ketens (Heavy chains) verbonden met disulfide brug
2 Lichte Ketens (Light chains) verbonden met disulfide brug

Hebben 2 Ag-binding sites
Zware ketens opgedeeld in enkele domeinen
Lichte ketens opgedeeld in 2 domeinen
Antigeenbindende site aan aminoterminus van antilichaam
Klassiek antilichaam 2 bindende sites
Onderscheid scharnierzone: zone tussen antigen bindende deel en fc deel (constante domein)
Hinge regio: flexibiliteit

Gecontroleerde proteolyse genereert interessante Al fragmenten
Fab: fragment Ag-binding
Fc: fragment crystalline / constant
In contact met papain: 3 fragmenten ontstaan
Digestie: fragment bestaat uit 2 fab’s en disulfide bruggen, maar fc stuk helemaal kapot, disulfide bruggen verbreken ->zware keten en lichte keten apart
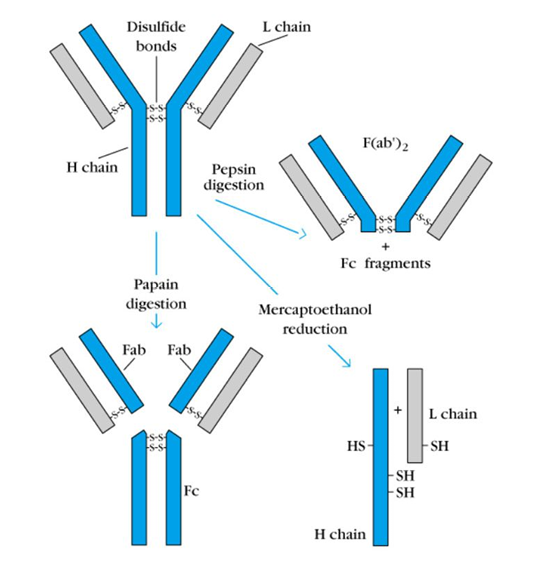

Structuur antilichamen: ketens opgebouwd uit Ig domeinen
Al zijn Ag-bindende moleculen met Fc regio die effectorfuncties medieert
Structuur zware keten bepaalt klasse(=isotype)
Bij mens onderscheiden 5 klassen: IgA, IgD, IgE, IgG, IgM
Zware ketens van die Igs zijn respectievelijk a, b, d, y en µ ketens
Voor IgA en IgG zijn er nog versch subtypes: IgA1, 2 ; IgG1 - 4
2 lichte ketens bekend: k en landa ketens


Bij zware keten meest aminoterminale deel: VH = variabel heavy chain →variabel: structuur van dit domein verschilt van antilichaam tot antilichaam (hier zit specificiteit)
Constante domeinen van zware keten, versch klassen antilichamen hebben nog 4de constante
Lichte keten ook variabel domein heeft (variabel light chain)
2 domeinen samen: antigeenbindende deel
Verder in zware keten: hinge (scharnierzone) →hieronder domeinen van fc regio (verantwoordelijk binding complement en fc regio)
Onderaan kristalstructuur igG: Fc deel meer gewrongen en deel glycolatie (versuikering), aminoterminaal vanboven antigenbindende deel
Structurele klasse verschillen in zware keten ->invloed op welke klasse ze behoren
Zware en lichte ketens zijn met elkaar verweven en vormen zo duidelijke regios binnen Al molecules: elke regio heeft zijn biologische functies
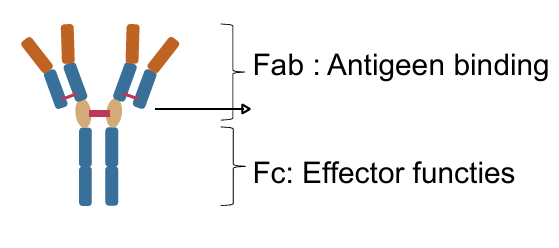
Binnen variabele domein 3 regios: waar nog meer variabiliteit is (hypervariabele regios)
Maken loops -> thv loops antigenbinding tot stand brengen (genummerd 1, 2, 3 = complementeitsbepalende regios = cdr ->contact met antigen)
Structuur cdr bepalen welk antigen gaat kunnen binden met affiniteit
CDR staat voor Complementarity-Determining Region. Dit zijn de hypervariabele stukjes van een antilichaam die rechtstreeks contact maken met het antigeen.
Waar zitten de CDR's?
Een antilichaam heeft een lichte en een zware keten. Aan de uiteinden bevinden zich de variabele domeinen.
In elk variabel domein zitten 3 hypervariabele regio's:
CDR1
CDR2
CDR3
Omdat er een variabel domein is op zowel de lichte als de zware keten, heeft één bindingsplaats in totaal:
3 CDR's van de lichte keten + 3 CDR's van de zware keten = 6 CDR's
Waarom worden ze "loops" genoemd?
De eiwitketen van een antilichaam vormt een relatief stabiel β-sheet-"skelet". Tussen die β-strengen steken kleine lusjes (loops) uit.
Deze uitstekende lusjes zijn de CDR's.
Epitoop versus paratoop
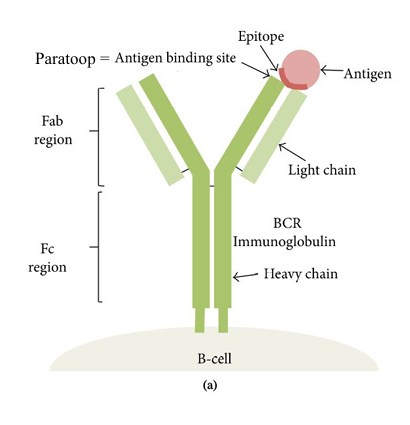
Epitoop: deel van antigen dat bind met antilichaam
Paratoop: antigen bindende site van het antilichaam (deel van antilichaam)
Verschillende soorten epitopen kunnen herkend worden

Links
Eiwit gevouwen en 3d structuur gevormd door 3 kleine loops
Denatureren: helemaal apart gaan liggen-> kan niet meer binden (epitoop verloren gaan)
Midden
Lineair stuk herkent door antilichaam
1 lineair epitoop helemaal toegankelijk, het ander is helemaal verborgen
Denatureren ->beide toegankelijk en binden
Rechts
Epitopen gecreeerd door proteolyse ->nieuwe terminus
Door bep antilichamen herkent worden
Was er eerst niet, en nu ineens wel gevormd
Antilichamen of Immunoglobulinen: Functies en klinisch belang (zie hfdstk8)

Versch structurele klasse zware ketens, 5 belangrijke klassen bij de mens
Afh structuur ook nog 2 subklassen, hoeveel klassen circuleren in plasma, hoe lang leven na secretie
Igg meest voorkomt
Versch subtypes
Verder onderscheid omdat het heel lang leven (enkele weken)
Komt voor als monomeer, alle functies zien in hfdstk8
Iga: als dimeer in plasma ->verbonden met j keten
Vooral in mucosale immuniteit (verder in hfdstk 8)
Igd: minst belangrijk ->slechts kleine sporen in plasma, monomeer, pasgerijpte b cel: dienst als b cel antigen receptor
Ige: zeer lage concentratie voor bij gezonde indiv, kort halfleven en monomeer, vooral in verdediging parasitaire reactie
Igm: lage concentratie, kort halfleven maar komt voor als pentameer, aan opp b cel
Zo groot ->niet zomaar in weefsels binnendringer
Activator complementsysteem
Antilichamen ( =Immunoglobulinen) in serum eiwitelektroforese

Gamma globuline fractie
Verhoging bij polyclonale gammapathy: b cellen van versch klonen allemaal actiever zijn
Hypogammaglobilineamie: geen gamma globuline
Monoclonale gammapathy: scherpe hoge piek van gamma globuline = paraprotein
1 welbepaalde b cel gaat prolifereren, bv kanker van b cellen
Zo veel prolifereren ->duidelijk zien als indiv piek
Verontrustend, buiten controle
Neoplastische proliferatie van plasmacellen in beenmerg: Multiple myeloom

Synoniemen: ziekte van Kahler = plasmacel myeloma (WHO)
Monoklonale gammopathie
Productie van monoklonaal Ig M-component, paraproteïne
Waarom antilichamen opwekken in Camelidae?

Camelidae hebben naast klassieke antilichamen ook Heavy Chain Only Antibodies: hun variabele delen, VHHs, zijn gekend als sdAbs single-domain Abs
Wanneer aanmaken, makkelijker om 1 enkele keer tot expressie, ook stabiel ->enkel variabel deel aanmaken, gemakkelijker om 1 kleiner eiwit aanmaken dan een groot
1 enkel eiwitdomein
Deze dieren zijn bijzonder omdat ze twee soorten antilichamen hebben:
Klassieke antilichamen (zoals mensen hebben)
Heavy Chain Only Antibodies (HCAbs) → antilichamen zonder lichte ketens
Normaal ziet een antilichaam er ongeveer zo uit:
2 zware ketens
2 lichte ketens
De antigeenherkenning gebeurt samen door variabele delen van beide ketens.
Bij Camelidae bestaat er ook een speciale versie:
alleen zware ketens
géén lichte ketens
Het deel dat nog steeds het antigeen herkent heet het VHH-domein.
Dat VHH wordt ook genoemd:
sdAb = single-domain antibody
Waarom is dit interessant?
Omdat je eigenlijk maar één klein eiwitdomein nodig hebt om binding te krijgen.
In plaats van een volledig groot antilichaam te maken:
⬜ groot eiwit (meerdere ketens en domeinen)
maak je:
⬜ één klein VHH-domein
Voordelen:
kleiner eiwit → makkelijker te produceren
stabieler
slechts één domein tot expressie brengen
goedkoper en eenvoudiger in bacteriën of gist te maken
kan soms op plaatsen binden waar gewone antilichamen niet bij kunnen
Aanmaak antilichamen
Aanmaak van monoklonale antilichamen (zie ook verder in cursus)

Heterogeen mengsel antilichamen
Antilichaampreparaten maken die afkomstig zijn van zelfde b cel (monoclonaal)
Dier immuniseren ->versch b cellen activeren
B cellen fusioneren met onsterfelijke myoloma lijn ->gemodificeerd dat die op bep selectie niet kan groeien ->enkel die cellen verder groeien die afkomstig was van b cel en myoloma cel = hybridoma cel
Door telkens verdunnen indiv clonen isoleren ->enkel hybridoma cellen bijhouden: secreteert bep antilichamen (allemaal identiek)
Veel beter kunnen bewaren en karakteriseren
In therapie gebruikt, vooral humaan
T-cel receptoren op de T cel

B keten met constant domein en variabel domein
1 enkele antigenbindingsplaats
T cel receptor altijd membraangebonden
Eigenschappen van Ag herkenning via Ig en TCR

Affiniteit van antilichaam-antigen sterker dan tcel-antigen
Antilichaam snel binden met antigen maar dat tcel reactie vaak trager zijn
Ontwikkeling B en T lymfocyten (Ontstaan immuunrepertoire)

Pre-b/t cel brengt 1 keten tot expressie
Hoe gebeurt is veel onduidelijkheid (zie seminarie)
Proliferatie ondergaan: niet lukken = celdood ondergaan
Verdere stap differentiatie komt de cel tot expressie (immature b of t cel)
Stappen tot hiertoe gebeuren zonder antigenen aan bod komen
Welke cellen bruikbaar? Wanneer zwakke herkenning mhc met peptide ->positief geselecteerd
In beenmerg of thymus sterk antigeen herkennen ondergaan ze negatieve selectie ->daar zitten eigen antigenen ->teken dat ze auto-immuun activatie kunnen ondergaan
Balans tussen pos en neg maakt welk venster we hebben van bruikbare cellen

Belangrijkste gebeurtenissen per stap
Stamcel pluripotent
Pro-lymfocyt antigen receptor gen herschikking
Beperkt aantal genen groot repertoir: omdat genen herschikt worden thv antigeenreceptor
Eens we genreceptor herschikking hebben moet je selectie krijgen ->selectie pre-antigen receptor tot expressie hebben en hierna selectie van volledige receptor ->rijpen
Naar sec lymfatische organen en recirculeren
B cellen rijpen in beenmerg en t cellen rijpen in thymus
Productie diverse antigeenreceptoren
Kiemlijnorganisatie van Ag-receptor genloci (niet volgorde, wel kennen welke er zitten)

Hoe gen er uit ziet van zware keten bij mens
Lichte keten bep niet klasse, maar wel 2 soorten: kappa en landa (constant domein verschilt)
N aantal v (variabele) domeinen: 100 versch gensegmenten
Aantal d (diversity) domeinen
Aantal j domeinen: hierachter constante domeinen
Tcr: variabele delen, diversity minder dan bij zware keten
Tcr alfa: afwezigheid diversity lichte keten
Recombinatie en expressie van Ig-genen: van kiemlijn naar zware Ig keten in B lymfocyten

Recombinatie
Zware keten locus:
Er gaat deel dna weggeknipt, willekeurig = somatische recombinatie
2de recombinatie stap, V-DJ joining: vdj segment krijgen -> samenstelling anders tussen de 2
Prim rna transcript→ splicing en mrna krijgen
Constante deel in contact komt, deel uit maakt van initiele antilichaam
Variabel domein en opeenvolgende constante domeinen
Cdr3: meest variabiliteit inzit→ regio bijeenkomen gensegmenten
Mechanismen van diversiteit in antigeen receptoren

Junctionele diversiteit: bij recombinatie telkens nucleotide weggehaald worden of toegevoegd worden (diversiteit)
Grote mogelijke repertoir
Enkel plaatsvinden bij b-cellen thv zware en lichte keten, bij t cellen plaatsvinden thv lichte keten
Genconversie draagt in sommige species bij tot de diversiteit in het Al repertoire
AgR diversiteit wordt op versch manieren bereikt, afh species
Vele mammalia slechts weinig V genen zodat diversiteit Al niet kan uitgelegd worden met hoger genoemde mechanismen
Sommige species gebruiken genconversie, =proces waarbij upstream genen of pseudogenen ingevoegd worden in 1 enkele V regio en zo variabiliteit genereren

Epigenetische regulatie van genexpressie via 3 grote mechanismen:
DNA methylatie om gen uit te zetten
Histonmodificaties (methylatie, fosforylatie, acetylatie)
Productie microRNAs(miRNAs)

Voor genherschikking: kiemlijn herschikking
Hierna herschikte lichte of zware keten
Onrijpe b cel: igm molecule op opp hebben ->mu keten tot expressie
Rijpe b cel zowel mu als delta constant deel hebben

Mhc restricted: t cellen kunnen activeren als het mhc presenteert
T cellen spreken we over dubbel neg proces
Pro t cel nog geen cd4 en cd8 op zijn membraan
Evolueert als pre t cel receptor op komt
Volgend stadium: allebei cd tot expressie
Thymus heel rijk weefsel: lichaamseigen cellen presenteren
Mogelijkheden
Thymus immatuur cel= thymocyt
Mhc bind op cd4 molecule: aanmaak gestimuleerd word ->cd8 onderdrukt, maken dat thymocyt uitrijpt tot cd4 pos cel (pos selectie)
Zwakke herkenning mhc: cd8 molecule blijven tot expressie en cd4 verdwijnen (pos selectie)
Helemaal geen mhc binding: geen nut want t cel nooit vreemde peptiden kunnen detecteren ->geen herkenning = apoptose (falen van pos selectie)
Sterke herkenning mhc peptide en binding te sterk ->neg selectie, want dat zou risico kunnen vormen voor auto immuun ziekte ->apoptose
Wanneer neg selectie niet goed doorgaat: iemand die voorbestemd is op auto immuunziekte krijgen

Bij versch species zijn gamma delta cellen belangrijker dan bij mens
Lymfatische cellen met gelimiteerde diversiteit: waar horen ze thuis? Wat is hun functie?
Vele vragen →wetenschap nog geen duidelijkheid
Betrokken in vroege respons tegenover microben
Ze bezitten somatisch herschikte AGR, zij het met gelimiteerde diversiteit in sommige
gamma delta T cellen in epithelia
NK-T cellen
B-1 cellen
Marginale zone B cellen
Species verschillen!
Hfdstk 5: Cel-gemedieerde immuunresponsen - activatie T-cellen door cel-geassocieerde antigenen
Types van intracellulaire micro-organismen die bestreden worden via T-cel gemedieerde immuniteit

1ste belangrijke groep: opgenomen door fagocyten ->niet volledig efficient afgebroken
Mycobact: persisterende intracellulaire bact infecties, ook fungis en protozoa persisteren
Lysteria: zwangere vrouwen veel risico, rauwe melk-kazen
Legionella: infectie bij oudere mensen (40j), verspreid in gesproeid water, longinfecties
2de groep: niet-fagocyterende ->cellulaire receptoren voor virus→ cellulair immuunantwoord
Fasen in een T-cel antwoord
Inductie- en effectorfasen in T-cel immuniteit

Inductiefase van immuunantwoord
Dendritische cellen antigeen presenteren thv lymfeknoop (cd4 of cd8 activeren)
Gedifferentieerde effectorcellen uit bloedbaan treden ->naar weefsels -> antigenen herkennen
Effectorcellen geactiveerd -> secretie cytokines: andere cellen activeren
Resultaat cd4 pos t helper cel activate: inflammatie, fagocytose, ….
Hoofdfunctie cd8: doden van infected cells

Rode kaders kennen!
In begin naive cellen (nog niet geactiveerd)
Activeren: vrij hoge drempel ->t cel receptor antigeen interactie + 2de signaal nodig
2de signalen: interactie cd28 molecule op naive t cel met costimulerende molecule op antigeenpresenterende cel
Na activatie naive t cell: cytokines aanmaken (proliferatie,….) ->effectorcellen (functie uitvoeren)
Prolifererende cellen geheugencellen vormen ->sneller geactiveerd worden
Cel abnormaal omdat geinfecteerd of andere eigenschappen gekregen ->niet meer herkent als normale cel ->herkent + gedood worden door cd8
Antigeenherkenning en co-stimulatie
Ligand-receptor paren in T-cel activatie (overzicht)

Mhc antigeen presenteren ->signaal 1 voor t cel activatie
Naive cel vanonder: meer signalen nodig
Signaaltransductie ketens: cd3 en zijketens geactiveerd door cd4
Belangrijk voor signaaltransductie
Kleine structurele motieven die voorkomen = itam = Immunoreceptor Tyrosine-based Activation Motifs.
Cd28: interageert met b7-1/2
Ctla-4: in competitie met cd28 voor b7 binding
Hogere affiniteit voor b7
Inhiberend effect
Pd-1: inhiberende interactie (later bekijken)
Adhesie: lfa-1→ antigeenpresenterende cellen lang genoeg interageren
T-cellen en APCs communiceren intens
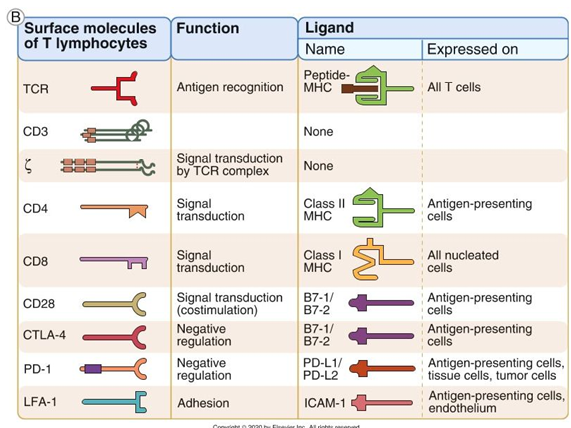
Ag herkenning en signaaltransductie in T-cel activatie

Zie hfdstk 4
Geassocieerde ketens hebben voor activatie
Cd4 molecule kinase geassocieerd om motieven in cd3 en zijketens fosforyleren ->zorgen voor signaaltransductie en activatie moleculen
Rol adhesiemoleculen in T-celactivatie - regulatie integrine aviditeit
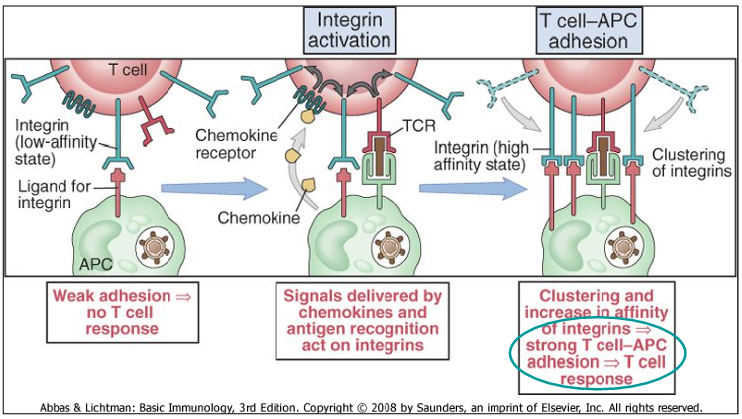
Integrines: adhesiemoleculen→ conformatie die sterke binding toelaat of lage affiniteit heeft
Links: heel zwakke adhesie interactie
Ligand voor integrine en integrine zelf, maar geen contact
Heel zwakke interactie ->leid niet tot t cel respons
Midden: antigeen gepresenteerd
Binden hiermee ->affiniteit ->singaal naar integrines ->conformatieverandering ->integrines naar hoge affiniteit
Chemokines op receptoren t cel werken ->bijdrage grote affiniteit
Recruteren thv immunologische synaps: interactie vind hier plaats
Rechts: lang genoeg contact moeten maken om t cel te activeren→ clusteren en verhoogde integrine affiniteit
Rol van adhesiemoleculen
Adhesiemoleculen op T-cellen herkennen hun liganden op APCs →stabilisatie APC-T-cel binding
Integrinen (heterodimere eiwitten) belangrijke familie bv LFA-1 (= leukocyte function antigen1)
Ligand: ICAM-1 (= intercellular adhesion molecule1)
Integrinen richten ook migratie van effector T-cellen van de circulatie naar plaats van infectie
Rol van co-stimulatie in T-celactivatie

B7 geinduceerd naar opname microbe
Apc in rust geen b7, niet activeren→ tegengaan overactivatie t cellen
Eiwitten van B7 en CD28 families

Bovenaan
Liganden aanwezig op antigeenpresenterende cellen en andere cellen
B7 voorkomen op dendritische cellen, macrofagen en b cellen = professionele antigeenpresenterende cellen (beste trio)
Icos ligand: single transmembraan met 2 immunoglobulinedomeinen
Lijken hard op elkaar
Interageert op cel met icos
Vinden we op geactiveerde t cellen
Op geactiveerde t cellen en folliculaire t helper cellen (in lymfeknoop in b cel regios zitten ->rol in b cel activatie)
Pdl1: zorgen voor inhibitie t cel activatie
Wanneer tumorcel veel pdl1 ->binden met pd1 ->afremming t cel activatie
Bij immuuntherapie kanker zorgen dat pdl 1 binding met pd1 verbroken worden
Onderaan
Cd28 op naive t cellen
Ctla4: op geactiveerde t cellen ->ook op regulerende t cellen
Inhibitie t cel activatie en hogere affiniteit (voorsprong om te binden met b7)
Werking van CTLA-4 op Treg

Ook voorkomen op t regulerende cellen
Ctla4 interageert met b7 ->b7 internaliseren en niet meer beschikbaar voor binding cd28
Natuurlijk mechanisme om immuunantwoord afremmen→ blokkering en verwijdering b7 ->vermindert immuunantwoord t cel
Signalisatie pathways geïnduceerd na activatie naïeve T-cel met dendritische cel
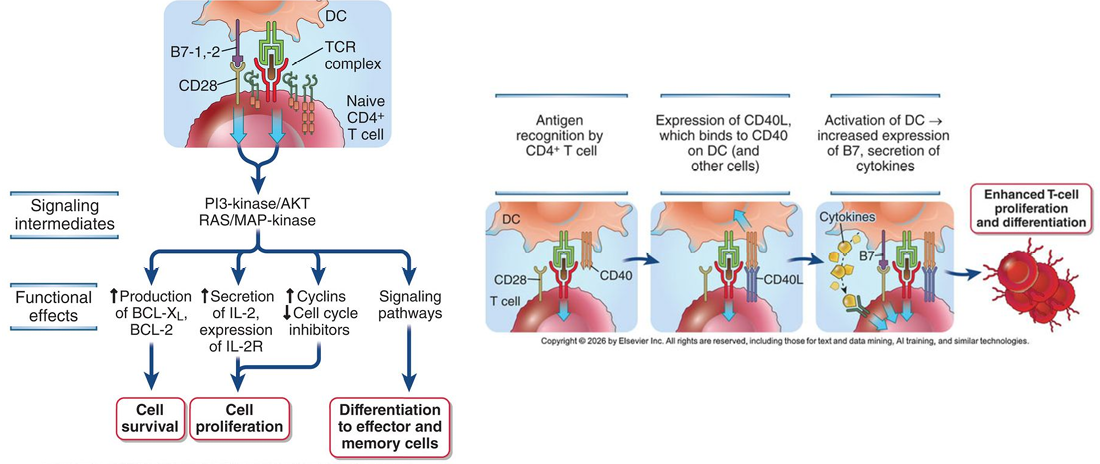
Naive t cel met cd28 ->costimulatie doorgaan ->interactie ->singaaltransductie
Intermediairen optreden ->meer productie bcl proteinen (cell survival), verhoogde secretie interleukine 2 (autocrien en paracrien voor celproliferatie), opgereguleerde cycline voor celproliferatie
Signaalpathways nog niet in detail
Geheel = typisch activerende stimulus voor t cel
Rechts meer info, naive cel die antigeen herkent
Cd40: interageren met molecule na activatie t cel tot expressie = cd40ligand
Interageren ->stimulatie aanmaak b7 ->zodat cd28 signalen kan doorgeven
Verhoogde proliferatie en differentiatie
Cd40 ligand interactie belangrijke reactie bij immuunactivatie
Co-stimulatie: toepassingen

Te veel immuunactivatie: auto-immuunaandoening
Te snel geactiveerd zonder dat het nodig is
Reageren op moleculen van ons lichaam
Als costimulatie blokkeren ->t cel niet over drempel gaan
B7 molecule binden met hoge affiniteit aan ctl4
Als we recombinant ctl4 aanmaken, immunoglobuline domein aanhangen (molecule wat groter gemaakt) ->therapeutisch gebruiken voor blokkage
Activatie CD8+ T-cellen

Cd4 t helper cellen moleculen produceren die ook stimulerend zijn om ???
Via mhc1 pathway presentatie, in vesikels opgenomen dus ook mhc2 met cd4
T helper cell in buurt: cytokine aanmaak zorgen dat er efficient b7 of andere costimulatie tot expressie gebracht
Differentieren cytotoxische t cellen
Bv hiv virus ->cytotoxische antwoorden ook slecht worden
Biochemische pathways van T-celactivatie

Signaalactivatie pas doorgaan als molecule met elkaar in contact ->verzameling rond bep plaats om celmembraan = immunologische synaps
Na initiele activatie: activatie biochem mediairen ->fosfolipase c activatie, gtp gdp en activatie pi3kinase
Geheel van mediairen: activatie enzymen ->
Calcinerin: fosfatase voor immunotherapie
Kinases: proteine synthese
Op hun beurt voor transcriptiefactoren zorgen –
Nfat: nucleaire factor voor geactiveerde t cellen
Nf kapa b en ap1
Initiatie cytokine productie
Vergelijking rustende en prolifererende T-cellen en hun metabole pathways
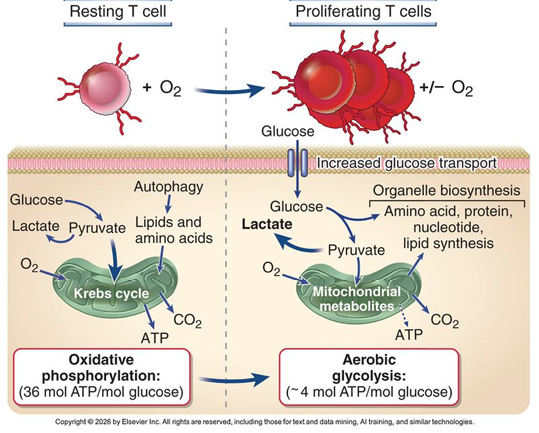
Proliferende t cellen: verhoogd glucose transport ->heel wat biosynthetische molecule behouden voor aanmaak eiwitten en vorming nieuwe cellen
Uiteindelijk energie die men haalt per glucose meer aerobe glycolyse
Functionele respons van T cellen op antigeen en costimulatie
Secretie van cytokinen en expressie van cytokine receptoren
Clonale expansie
Differentiatie van naïeve T cellen tot effector cellen
Ontwikkeling van geheugen T cellen
T-cel activatie, IL2 secretie, ILRR vorming en IL2 geïnduceerde proliferatie

IL2 productie reeds na 1 à 2 uur
Antwoord op IL2 mogelijk dankzij stijging IL2R
Il2r bestaat uit 2 ketens: beta en gamma (c staat voor gemeensch keten, andere hebben die ook)
T cel reageren op veel lagere concentraties dan naive t cel
Groeifactor en gebruikt in therapie

Initiele proliferatie en differentiatie naar geheugencell en effectorcel
Interlueukine 2 ook stimulerend voor regulerende t cellen (zorgen voor onder controle houden, zorgen voor niet te harde effectie)
Klonale expansie

Heel weinig naive cellen met specificiteit
Clonale expansie: sterke verhoging van aantal microbe specifieke t cellen
Veel sterkere stijging van cd8 dan cd4
Cd4 gaan voornamelijk voor secretie cytokines
Cd8 cytotoxiciteit veroorzaken
Na infectie onder controle geheugencellen overblijven
Differentiatie van naïeve T cellen naar effector cellen

Th1, Th2 en Th17 cellen zijn betrokken in volgende types complexe immuunresponsen:
Th1 in de Type 1 immuunrespons (T1)
Th2 in de Type 2 immuunrespons (T2)
Th17 in de Type 3 immuunrespons (T3)
Naive cd4 cel ->differentieren naar versch functionele subpopulaties
Foliculaire th: in lymfeknoop migreren en in buurt b cellen ->b cellen bijstaan in functie produceren hoge affiniteit antilichamen
Ontstaan van geheugen T-cellen
Deel van antigeen geactiveerde T-cellen differentieert tot geheugen cellen
Geheugen T-cellen
Waar? Lymfatisch weefsel Mucosaal weefsel Circulatie
Wat? Cellen die wachten tot een infectie terugkeert
Migratie van T lymfocyten in cel-gemedieerde reacties
T cellen migreren verschillend tijdens opeenvolgende stadia in hun leven
Naïeve vs effector T cellen
Verscheidene groepen moleculen betrokken
Selectines en hun liganden
Integrines en hun liganden
Chemokines en hun receptoren
Sfingosine-1 fosfaat en zijn receptor
Migratie van naïeve en effector en T-cellen: een overzicht

Afname van de immuunrespons
Klaring infectie = daling survival factoren voor lymfocyten = daling Ag stimulatie
=>Celdood via apoptosis
Polyklonale T-celactivatoren
Binden TCR van veel of alle T-cel klonen ongeacht peptide-MHC specificiteit van de TCR
Welke?
AL specifiek voor TCR of CD3
Polymere koolhydraat bindende eiwitten vb Fytohemagglutinine A (= PHA)
Bepaalde microbiële eiwitten superantigenen genaamd
Belang van polyklonale T-celactivatoren
Experimentele moleculen om T-cel activatie te bestuderen
In vitro gebruik in klinische context
Testen van T-cel functie
Om metafase-DNA te bekomen voor chromosoom analyse
In vivo belang: microbiële superantigenen →excessieve cytokine vrijstelling van T-cellen
Superantigenen veroorzaken een polyklonale T cel activatie

T cel receptor geen goede binding met peptide
Geen activatie
Maar als superantigen aanwezig is dat zorgt voor binding mhc met tcel receptor (met veel t cel klonen) dan krijg je groot percentage dat geactiveerd word
Gevaarlijk met superantigen: veel schade
Superantigenen geproduceerd door Staphylococcus aureus kunnen toxic shock syndroom veroorzaken

Bact infectie: toxines aanmaken en infectie aanleiding geven tot toxic shock
Aanmaak toxine functioneren als superantigen ->t helpercellen activeren ->veel il 2 en interferon gamma ->macrofagen activeren ->veel il 1 en tnfa ->hoge concentratie systemische effecten vooral tnfa veel orgaanschade
Grote cascade van massale il productie
Hfdstk 6: Effectormechanisme van T cel gemedieerde immuniteit - functies T cellen in verdediging
Types celgemedieerde immuniteit tov intracellulaire micro-org

Effectorfuncties CD4 T-lymfocyten bij intracellulaire listeria monocytogenes

Muizen geinfecteerd met lysteria bact
1 groep t cellen gegeven van herstelde muizen
1 groep t cellen gegeven van controle muizen
T cellen helpen (geheugencellen)

In serum geen actieve t cellen
Wat zit er in serum, wat brengen we mee over: antilichamen
Muizen waarvan serum afkomstig was en vooraf geinfecteerd hadden antilichamen maar die helpen niet , geen bescherming
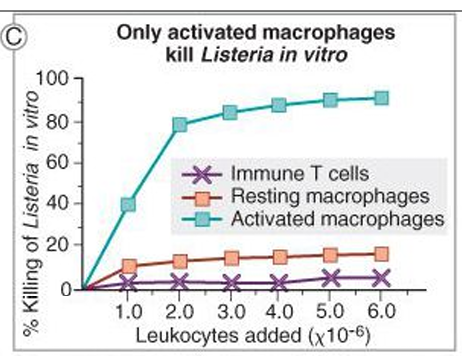
Macrofagen activeren ->veel efficienter doden van microben
Immuun t cellen: niet veel zin, cellulaire activiteit macrofagen nodig
T cellen maken cytokines aan die macrofaag activeren en dan pas kunnen ze microben doden
Ontwikkeling en functies van CD4 effector T cellen
subsets CD4 helper T cellen onderscheiden door hun cytokine profiel

Eigenschappen belangrijkste cytokines geproduceerd door CD4 helper T lymfocyten
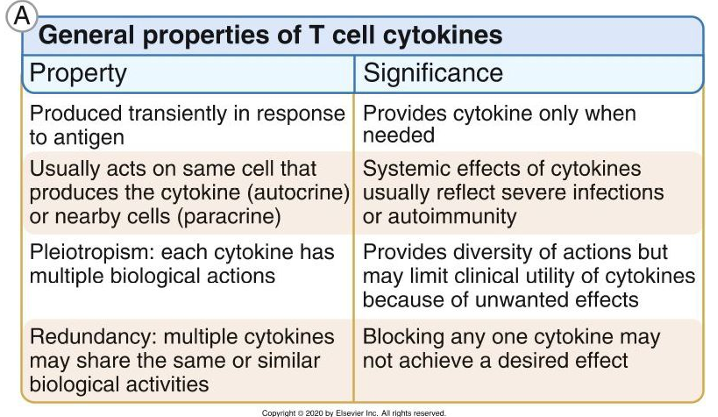
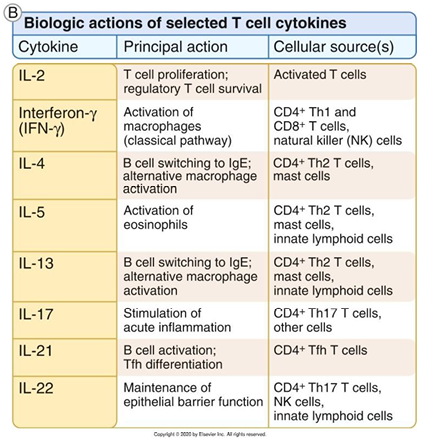
Th1-cellen zorgen voor klassieke activatie van macrofagen (M1) en dragen bij tot type 1 immuunrespons
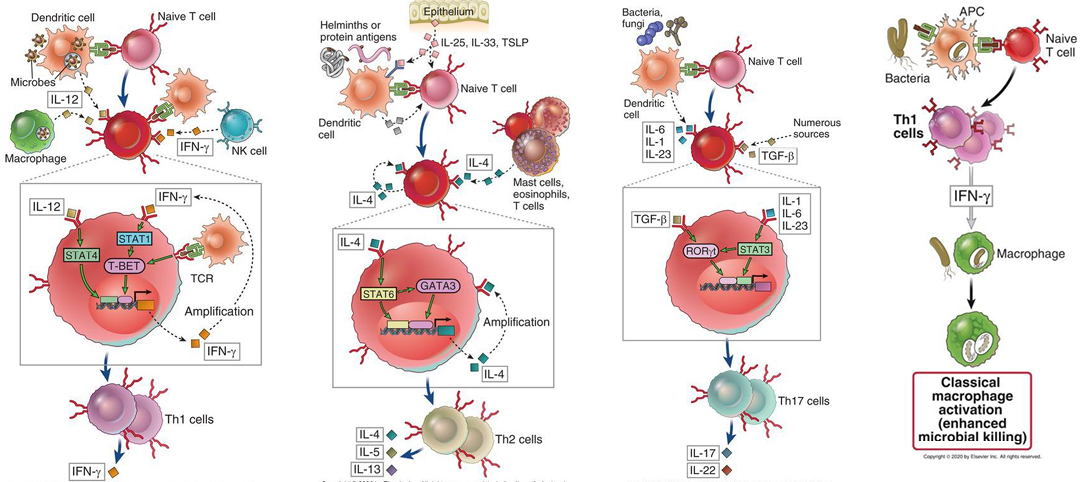
Niet indiv transcriptiefactoren kennen, gewoon weten dat ze der zijn
Wat zijn de inducerende signalen? Dit is belangrijk!
Links: naive t cel die evolueert als th1
Cytokines die dit stimuleren: il12 (van macrofaag), ifn gamma (van nk cel)
Signalen om differentieren
Via activering transcriptiefactoren (stat factoren, typisch als transcriptiefactoren)
Middelste
Th2 cellen
Naive cel aanzetten om te evolueren
Worminfectie en blootstelling antigenen
Epitheelcelactivatie en typerende cytokinen door epitheel
Vanuit mestcellen ook nog il4
Rechts: Th17
Vooral bact en fungale infecties triggers aan dendritische cel
Nog veel tgf beta, zien we ook evolutie
CD4 T-cellen herkennen MHC2 en activeren macrofaag

Klassieke activatie van macrofaag: helpen doden van micro org
ROS, NO, …. (zie hoofdstuk 2)
Geactiveerde macrofaag bron van cytokine productie (il1, tnfa, ….)
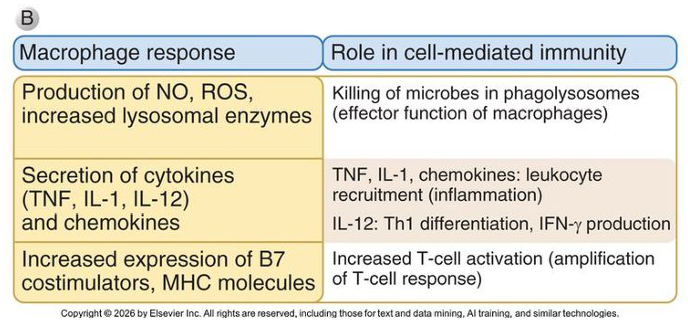
Functies Th2 cellen in hun bijdrage aan T2 immuunrespons

Triggers: antigenen, worminfecties, ….
Gedifferentieerde t helper cellen: il4, il13, il5
Il4: b cellen beinvloeden ->aanzetten tot versch isotypen van antilichamen aanmaken, gevolg: ige aanmaken ->met hoge affiniteit binden aan fc receptoren van mestcellen (als antigeen binden ->degranuleren), ook verhoogde peristaltiek en mucusproductie
Il13: macrofagen activeren, alternatieve activatie: macrofaag zorgen voor fibrose vorming (weefselherstel bevorderen, ….)
Il5: eosinofielen activeren ->verdediging worminfecties, granulen uitstoten die helminen vernietigen
Maar ook ten onrechte geactiveerd zoals bij asthma
Blokkeren bij asthma medicatie ->minder eosinofiel activatie
Functies Th17 cellen in hun bijdrage aan type 3 immuunrespons

Aparte subpopulatie: ander patroon cytokine productie dan t helper 1
Il17
Wbc activeren en aantrekken (chemokines)
Meer productie van costimulating factors: cytokine die hematopoese bevorderen
Aantrekken neutrofielen
Inflammatie met neutrofielenrespons
Epitheelcellen gestimuleerd op antimicrobiele peptide
Il22
Epitheelcellen gestimuleerd op antimicrobiele peptide
Verhoogde barriere functie: zorgen dat die goed bewaakt blijft
Differentiatie en functies van CD8 cytolytische T-cellen

In lymfeknopen antigenen aangebracht door apc
Mhc1 complex herkennen en costimulator binden op dendritische cel ->naive cel in lymfeknoop blijven + prolifereren ->verlaten en terecht in bloedbaan -> in circulatie naar plaats van infectie gaan en uittreden ->infectie cellen doden

A
Naive cd8 t cel costimulator nodig (Cd28 b7)
Apc antigen opnemen in vesiculaire pathway ->mhc2 presenteren ->complex ->cd4 t helper cellen dit herkennen ->gaan cytokines uitstoten die naive t cel helpen over drempel
Geheugen cellen en differentieerende ctl
B
T helper cel ook nog apc stimuleren om costimulatoren krijgen om membraan tot expressie brengen
Cd40-cd40 ligand ->belangrijk in de immunosupressie
Cytokine maken en apc stimuleren op cytokines aanmaken
CD4⁺ helper-T-cellen “helpen” APC’s om CD8⁺ T-cellen goed te activeren.
Stap voor stap, kort:
Een APC (meestal een dendritische cel) neemt een pathogeen op.
De APC presenteert:
antigeen via MHC II aan CD4⁺ helper-T-cellen
antigeen via MHC I (vaak via kruispresentatie) aan CD8⁺ T-cellen
Eerst wordt de CD4⁺ helpercel geactiveerd.
Die helpercel doet daarna twee belangrijke dingen:
1. Activeert (“licentieert”) de APC
De CD4⁺ cel geeft signalen aan de APC (bv. via CD40L–CD40).
Daardoor gaat de APC:
meer co-stimulatoren (zoals B7) uitdrukken
meer cytokines produceren
De APC wordt dus een krachtigere activator.
2. Zorgt voor cytokines
CD4⁺ helpercellen maken cytokines (zoals IL-2) die helpen bij:
groei
proliferatie
overleving van CD8⁺ T-cellen
Daarna krijgt de CD8⁺ T-cel zijn drie signalen:
Signaal 1: TCR ↔ peptide-MHC I
Signaal 2: co-stimulatie
Signaal 3: cytokines
Dan pas ontstaat een sterke cytotoxische T-celrespons
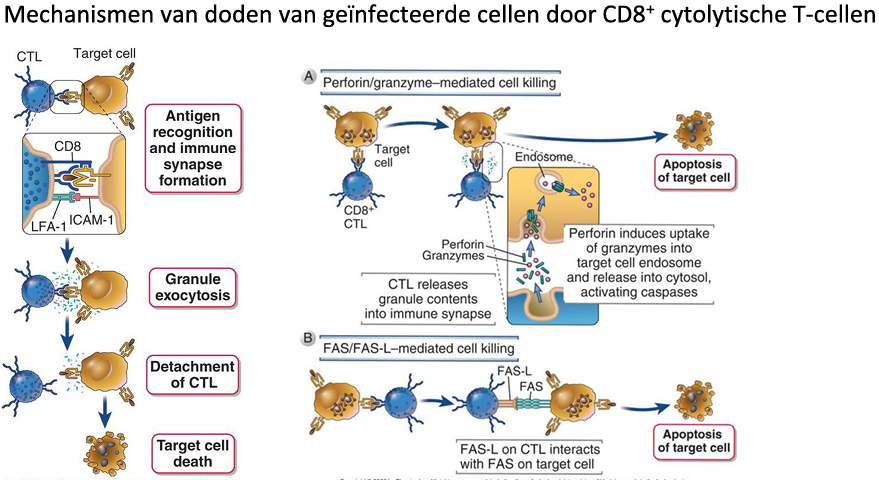
Ctl ook tumorcellen doden
Links
Initiele activatie cytolytische cel
Geen antigenherkenning = geen activatie
Integrine ligand paar ->contact lang genoeg tussen cellen
Als veel adhesie op doelcel ->langere binding
Granules vanuit cytolytische cel in buurt doelwitcel vrijgegeven ->loskomen van doelwitcel en ondergaan celdood = apoptose
Rechts: granule exocytose
Cytotoxische cel perforine maken ->binnendringen van bep enzymen in doelwitcel activeert
In doelwitcel: caspase activeren
B: celdoodliganden, 2 moleculen ->aan elkaar met fas molecule ->apoptose
Samenwerking tussen CD4 en CD8 T cellen in de eradicatie van intracellulaire infecties: cytotoxische t cel nodig om cel helemaal te doden
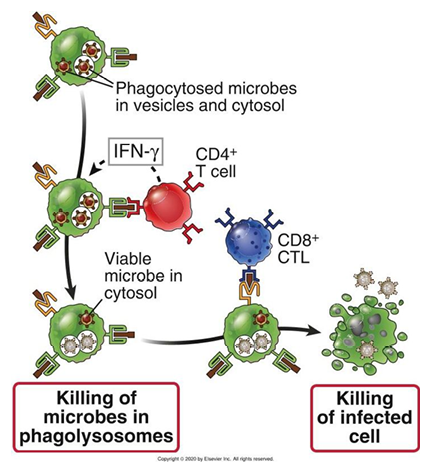
Resistentie van pathogene micro-org tov cel gemedieerde immuniteit
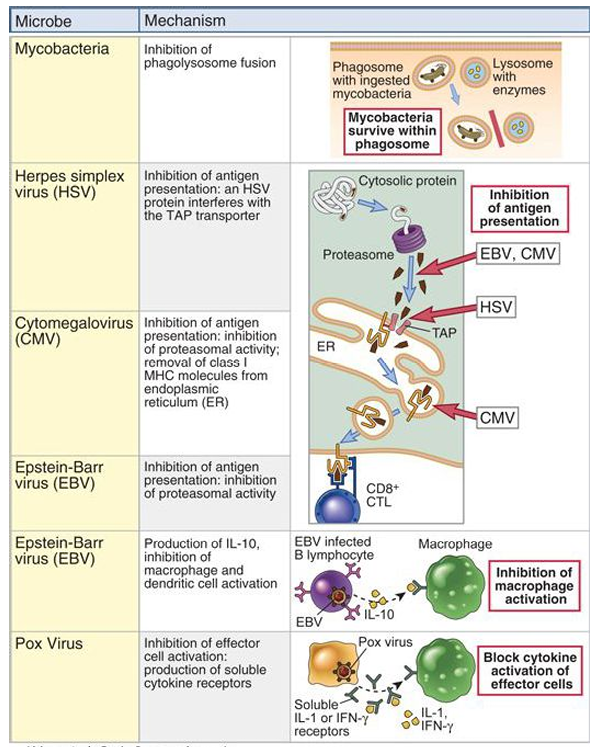
Mycobact: lastig want inhibitie fagolysosoomfunctie ->niet efficient gebeuren ->niet tot bij opgenomen microben tot bij fagosoom
Hsv, cmv, ebv:
Virussen interfereren met antigeenpresentatie
Inhibitie van transporter
Inhibitie proteazoom ->cytologische eiwittenMhc molecule niet intact in RER uitkomen
Op versch stappen ->belangrijke bron resistentie
Niet weten wat er indiv gebeurt bij hsv, cmv, … ->gewoon algemeen
Pox: cytokines wegvangen door oplosbare receptoren ->binden zodat niet meer aan cellulaire receptor binden
Overzicht aantal manieren die virussen gebruiken om ontkomen aan destructie door immuunsysteem
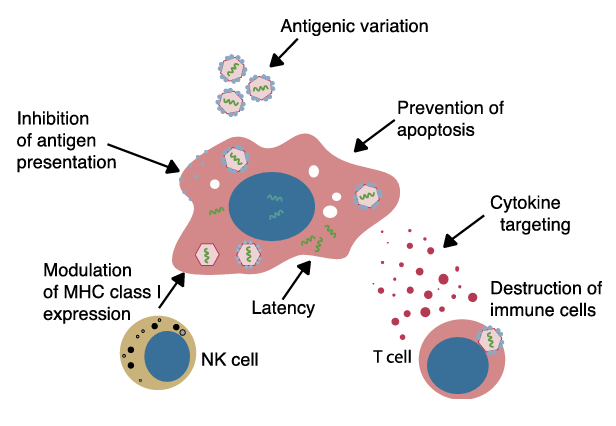
T cel activatie en uitputting
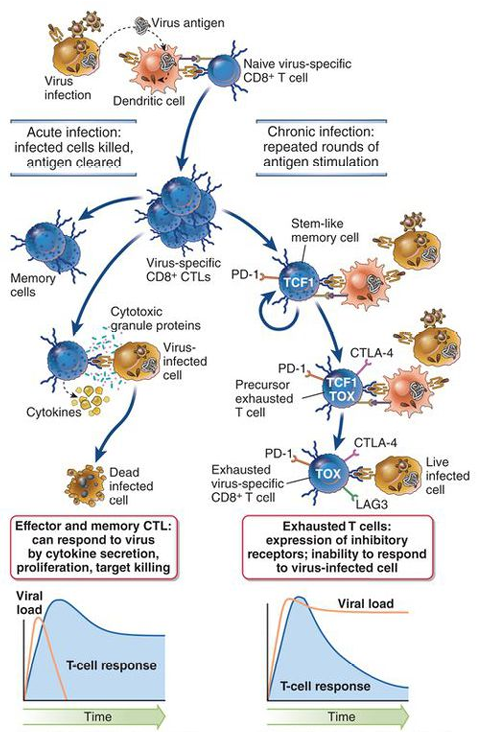
Continue re-infectie: mogelijk dat t cellen veel meer pd1 tot expressie brengen
Pd1 binden met ligand ->t cellen interageren: neg signalen krijgen
Cel niet efficient gaat doden
Precursoren van uitgeputte cellen
Neg signalen doorgeven ->kenmerk uitgeputte t cellen ->minder efficient doden; latente infectie
Blauwe lijn te snel afzakken ->niet efficient
T-celuitputting (T-cell exhaustion) ontstaat wanneer T-cellen heel lang of voortdurend worden gestimuleerd, bijvoorbeeld bij chronische virale infecties of kanker.
Normaal:
antigeen → T-celactivatie → T-cel doodt doelcellen
Maar als het antigeen blijft aanwezig (bv. tumor of chronische infectie):
voortdurende stimulatie → T-cellen raken geleidelijk “moe”
Wat gebeurt er dan?
T-cellen maken minder cytokines
delen minder
doden slechter
verliezen stap voor stap hun functie
Een belangrijk kenmerk is dat uitgeputte T-cellen veel PD-1 tot expressie brengen.
Programmed cell death protein 1 (PD-1) is een remreceptor op T-cellen.
Wanneer PD-1 bindt aan zijn ligand (PD-L1):
→ remsignalen
→ minder activatie
→ minder T-celfunctie
Waarom is dit belangrijk?
Bij kanker gebruiken tumoren dit systeem vaak: ze drukken veel PD-L1 uit en zetten T-cellen als het ware “op de rem”.
Tuberculose: belang cellulaire immuniteit
Problemen:
Toenemende resistentie
Fatale afloop bij AIDS patienten
Toenemende migratie van en naar endemische gebieden
Mycobact: intracellulair, vnl macrofaaginfectie
Cellulaire immuniteit belangrijk!
Verhoogde incidentie bij AIDS patienten (verlaagd CD4 t cel)
Ernstig verloop bij defecten in Th1 cytokine receptoren
Gevolg intracellulaire infectie in macrofagen: granulomateuze inflammatie
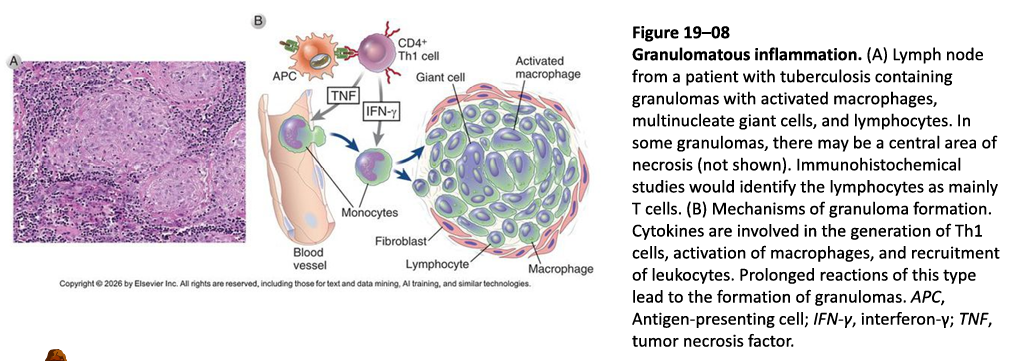
TST= tuberculin skin test = mantouxtest

Gebruikt om na te gaan of iemand eerder in contact geweest met M. tuberculosis
Intradermale injectie van kleine hoeveelheid tuberculin (gezuiverde eiwitcomponenten van M tuberculosis)
Bij personen met eerder contact ontstaat een T cel afh reactie: Th1 effector T cellen naar plaats van Ag en ontstaat lokale ontsteking met macrofaagactivatie
Max zwelling en induratie na 48-72u
IGRA= interferon gamma release assays = maat voor cellulaire immuniteit tegen Mycobacterium tuberculosis (TB contact)
Bloedstaal geincubeerd met antigenen uniek voor mycobacterium tuberculosis en niet voorkomend op meeste andere mycobacterien
Vrijstelling IFN gamma gemeten →resultaten binnen 24-48u bekend

Hfdstk 7: Humorale immuunresponsen - activatie B cellen en productie antilichamen
Fases en types humorale immuunantwoorden

Niet alle chemokines kennen! Weten dat er er zijn maar niet specifiek weten welke
Naive b cel: igm en igg
Variabele deel: antigenherkenning (igm en igg identiek)
Geactiveerde b cel hulp van t helper cel en andere stimuli ->gaat prolifereren ->antilichamen niet meer op membraan maar secreteren ->b cel gaat andere klassen aanmaken = isotype switch
Hoge affiniteit voor antigeen = affiniteitsmaturatie
Rechts
In lymfeknoop thv kiemcentra activatie b cellen
Plasmablast in bloedbaan treden ->migreren naar beenmerg ->vaak in beenmerg zitten om van daaruit antilichamen secreteren
Plasmacellen: b cellen die geen ig tot expressie brengen aan opp maar secreteren
Iga: migreren naar mucosae
S1p: sfingosine 1 fosfaat
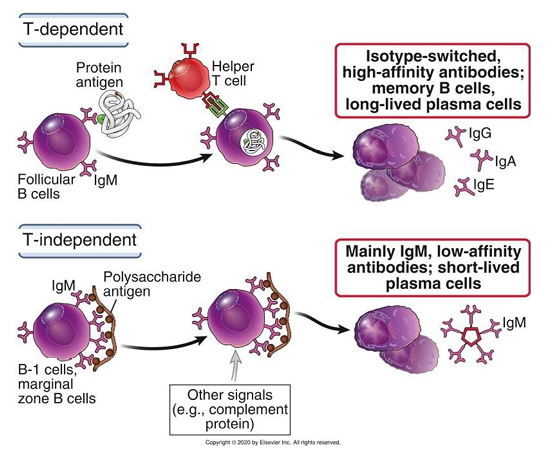
T-afh
Proteine antigen opnemen ->peptide presenteren in kader mhc2-> t helper cel activeren
T cel zorgen voor presentatie aan t helper cel ->antilichamen secreteren ->switchen van zware ketens + langlevende plasmacellen en geheugencellen ontstaan
B cel mogelijk conformationeel epitoop herkennen->epitoop herkent door t cel is lineair stukje
T-cel-afhankelijke B-celrespons betekent dat een B-cel hulp nodig heeft van een CD4⁺ helper-T-cel om volledig geactiveerd te worden.
Stapjes:
B-cel bindt een antigeen via zijn B-celreceptor
B-cel neemt het antigeen op en verwerkt het
B-cel presenteert stukjes via MHC II
Een CD4⁺ helper-T-cel herkent dit met zijn TCR
De helpercel geeft hulp:
co-stimulatie (bv. CD40L–CD40)
cytokines
Gevolg:
De B-cel gaat:
sterk prolifereren
plasmacellen vormen
klasseswitching doen (IgM → bv. IgG/IgA/IgE)
affiniteitsmaturatie uitvoeren
geheugencellen vormen
Waarom belangrijk?
Zonder T-celhulp krijg je vaak alleen een zwakke, kortdurende IgM-respons.
T-onafh
Andere antigenen antwoorden
Antwoorden op polysacch ->epitopen die herhaalt worden ->versch igm kopien triggeren ->voldoende signaal
Resulteert in plasmacel die antilichamen secreteert, maar vooral igm, nauwelijks een switch krijgen
T-cel-onafhankelijke B-celrespons betekent dat een B-cel geactiveerd wordt zonder hulp van CD4⁺ helper-T-cellen.
Hoe werkt dat?
Sommige antigenen (vaak van bacteriën) hebben veel herhaalde structuren op hun oppervlak, bijvoorbeeld polysachariden.
Die kunnen heel veel B-celreceptoren tegelijk cross-linken, waardoor de B-cel rechtstreeks sterk geactiveerd wordt.
Voorbeelden:
kapsel-polysachariden van bacteriën
lipopolysachariden (LPS)
Gevolgen:
De respons is meestal:
snel
vooral IgM
weinig of geen klasseswitch
weinig affiniteitsmaturatie
weinig geheugenvorming
Primaire en secundaire immuunantwoorden

Sec respons meer switch zien
Voornamelijk bij eiwit antigenen, anders geen triggers om naar igg of igm te gaan
Protein antigenen
Stimulatie B cellen door antigenen
Antigeen geinduceerde signaaltransductie in B cellen (niet in detail kennen)

Belang aangeboren immuun signalen in B cel activeren: rol voor CR2 en TLRs

2 versch vormen van sec signaal
Cr2: complement receptor 2 ->op b cel zitten, binden aan c3d
Micro org bekleed worden met fragmenten complement systeem ->binding complementfragment c3d aan cr2
Ook microbe antigeen hebben ->2de signaal voor b cel activatie
Ook nog andere signalen voor 2de signaal
Toll like receptor (pams herkent door patroonherkenning toll like)
Pam herkenning
1. CR2 (Complement Receptor 2)
Wanneer een pathogeen bedekt wordt met complementfragmenten (bv. C3d), kan de B-cel dat herkennen via CR2.
Dus:
BCR bindt antigeen + CR2 bindt C3d
→ veel sterker activatiesignaal
CR2 werkt dus als een versterker van B-celactivatie.
2. TLRs (Toll-like receptors)
B-cellen hebben ook Toll-like receptors.
TLRs herkennen PAMPs (zoals bacterieel DNA of LPS).
Dus:
BCR ziet specifiek antigeen
+
TLR ziet “gevaarssignaal” van een pathogeen
→ sterkere activatie van de B-cel
Functionele consequenties van antigeen gemedieerde b-cel activatie
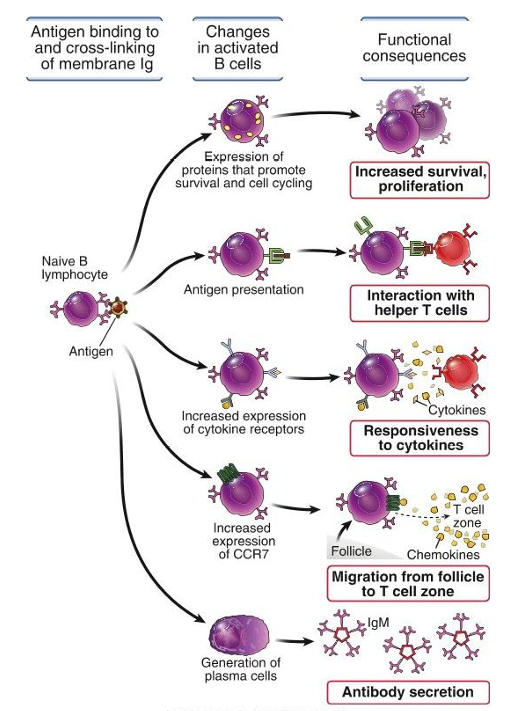
Functies van Th lymfocyten in humorale immuunrespons
Activatie en migratie T helper cellen en B cellen: verloop T cel afh humorale immuunrespons

Naive cd4 cel geactiveerd door protein antigen op dendritische cel gezien ->ondergaat klassieke activatie als t cel ->migreren richting follikel ->b cel in follikel geactiveerd, kan antigen verwerken en tonen aan mhc2
Krijgt signalen om uit follikel te treden en naar t cell zone migreren->immuunantwoord buiten follikel ->ontstaan plasmacellen ->t cel = extrafolliculaire t hleper cel
Sommgie b cellen terug naar follikel en herkent nog altijd antigen maar kan zijn dat die dat gepresenteerd ziet als folliculair dendritische cel (duidelijk versch van klassieke folliculaire dendritische cel)
Antigen aan opp concentreren, groen: binden op folliculaire dendritische cell met fc receptor ->complexeert immuuncomplexen ->concentreert antigen daar en kiemcentrum b cellen kunnen dit gemakkelijk binden en krijgen snel signaal om geactiveerd te worden

Lymfeknoop
Kleine antigenen diffunderen tot in follikels
Macrofagen die grotere antigenen opnemen en presenteren
Presentatie van antigenen door B-cellen aan Th cellen en mechanisme van Th cel gemedieerde B cel activatie

Rechts
Cd40 ligand (omdat t cel al geactiveerd was) gaat interageren met b cel ->stimulatie b cel ->isotype switch
T cel door activatie cytokines aanmaken →inwerken receptoren b cel
Principe geconjugeerde vaccins: resultaat inzichten vanuit hapteendrager concept

Antilichamen aanmaken tegen typerende polysaccharide complex
Polysacchariden enkel toedienen ->t onafh respons hebben
Om tegen polysacchariden een hoge affiniteit antwoord krijgen ->covalent binden met eiwit (TT, onschadelijke variant van tetanus) ->eiwit wordt geprocessed en presenteren aan specifieke t helper cel -> produceert costimulatoren en cytokines en maakt dat er lang levende plasmacellen zijn en switch naar igg
Hapteen (kleiner fragment) drager (t cel activator) concept
Extrafolliculaire en kiemcentrum reacties

B cellen en folliculaire t helper cellen
Wanneer cellen prolifereren elke proliferatieronden mutaties
Bij b cellen in variabele regio veel hogere concentratie puntmutaties dan andere regios = somatische hypermutaties
Wanneer sterk prolifereren en richting fdc zone ->heel snelle affiniteit antigeen herkennen en binden→ krijgen overlevingssignalen ->eiwit opnemen en presenteren aan folliculaire t helper cellen (en nog eens signalen krijgen)
Voordeel hebben ->geselecteerd worden
Tegelijkertijd door hulp folliculaire t helper cellen isotype switch (igm naar iets anders) ->door interactie tb: aantal geheugencellen ontstaan ->later wanneer terug contact getriggert om snel antigeen herkennen ->vroeger naar buiten treden
Anderzijds ook differentieren naar plasmacellen (b cel receptor verloren) ->naar beenmerg begeven en lang levende plasmacellen worden ->antilichamen secreteren ->maken grootste deel uit van immunoglobulines die circuleren
Hoe verder in immuunantwoord, hoe minder antigeen er is
Hierdoor veel antigeen capteren en samenbrengen
Hierdoor ook goede affiniteit nodig van b cel
Immunoglobuline zware keten klasse (=isotype) switch

Wanneer andere IL overhand van Il4 hebben, gaan ze IgG aanmaken

Veranderen isotype
IgM aangemaakt
Wanneer signalen van t helper cellen ->klasse switchen naar andere zware ketens (gamma, epsilon, ….)
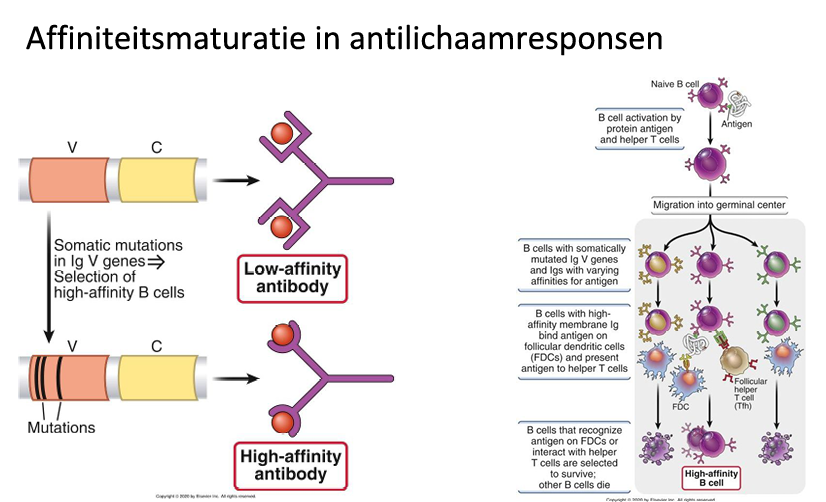
Wanneer b cellen prolifereren, in v regio meer mutaties optreden dan klassieke
In v regios antilichamen hogere frequentie = hypermutatie gevoelig
In immuunantwoord eerder lage affiniteit, na aantal stappen en boost hoge affiniteit krijgen
Mutaties zijn random: lage of hoge affiniteit krijgen
Affiniteits maturatie: verhoging van affiniteit krijgen
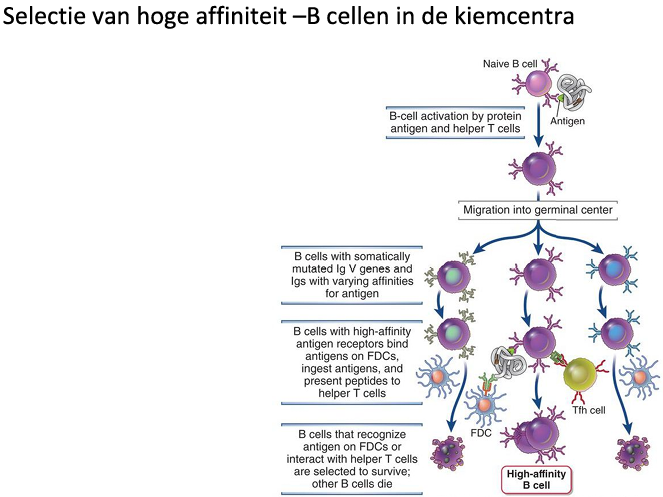
Geactiveerde b cel migreren naar kiemcentrum
Antilichamen met versch affiniteiten
Binnen kiemcentrum concurreren om te kunnen interageren met antilichamen die daar te zien zijn
Hoge affiniteit = hogere kans op binden met aanwezige antigeen (door folliculaire dendritische cel: op membraan antilichaam dragen op fc receptor ->maken geen antilichaam aan maar binden dit enkel, kunnen hierdoor antigeen concentreren en tonen)
B cel kan antigeen opnemen en verwerken ->tonen aan mhc 2 t helper cel in follikels (= folliculaire t helpercellen) ->signalen krijgen om verder prolifereren
Lagere affiniteit krijgen = geen ontmoeting met antigen ->geprogrammeerde celdood
Selectie van v regios met hoge affiniteit voor antigen: na bep booster vaccin hogere affiniteit krijgen

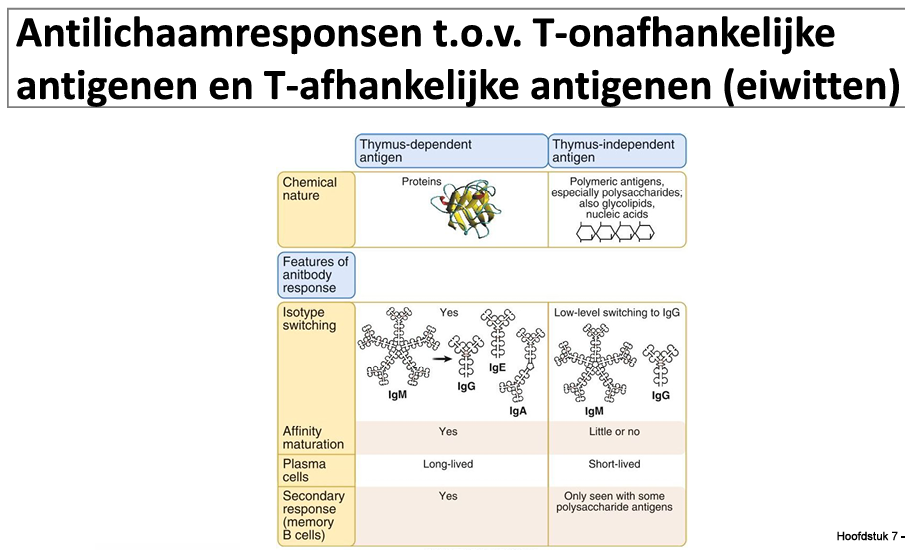
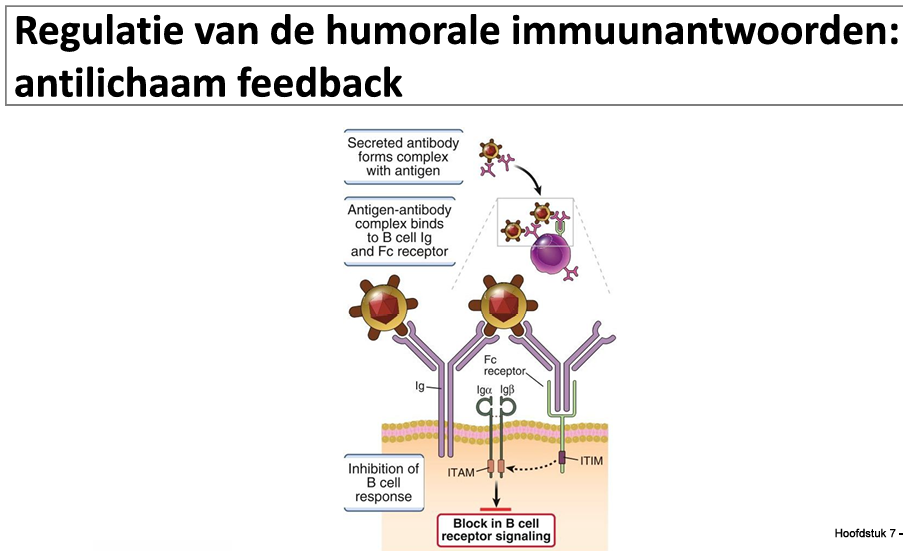
Gesecreteerd antilichaam binden ->antilichaambeklede microbe op bep moment via fc van antilichamen binden met fc receptor op b cel, micro org ook tegelijkertijd gebonden door transmembraan immunoglobuline op b cel (op 2 manieren binden)
Herkenning: mogelijk dat neg signalen krijgen-> binding fc deel inhibine ->afgeremd worden van signaal = neg feedback regulatie
Voorkomen wanneer veel antilichamen circuleren